Infeksi Virus Memodulasi Fungsi Mitokondria
Sep 07, 2023
Abstrak: Mitokondria adalah organel penting yang terlibat dalam metabolisme dan kematian sel terprogram dalam sel eukariotik. Selain itu, mitokondria juga berkaitan erat dengan imunitas bawaan sel inang terhadap virus. Kelainan morfologi dan fungsi mitokondria dapat menimbulkan berbagai penyakit. Sejumlah besar penelitian menemukan bahwa berbagai infeksi virus dapat mengubah dinamika mitokondria, memediasi kematian sel yang disebabkan oleh mitokondria, dan mengubah status metabolisme mitokondria dan respons imun bawaan seluler untuk mempertahankan kelangsungan hidup intraseluler. Sementara itu, mitokondria juga dapat berperan sebagai antivirus selama infeksi virus, sehingga melindungi inangnya. Oleh karena itu, mitokondria berperan penting dalam interaksi antara inang dan virus. Di sini, kami merangkum bagaimana infeksi virus mempengaruhi patogenesis mikroba dengan mengubah morfologi dan fungsi mitokondria dan bagaimana virus lolos dari respon imun inang.
Kata Kunci: fisi dan fusi mitokondria; infeksi virus; apoptosis; tuan rumah imunitas bawaan

tanaman cistanche meningkatkan sistem kekebalan tubuh
1. Morfologi Fisiologis Mitokondria
Mitokondria berasal dari endosimbion bakteri purba, dan merupakan organel penting yang ditemukan di hampir semua sel. Dalam hampir 130 tahun sejak mitokondria pertama kali dilaporkan, fungsi-fungsi baru telah ditemukan. Mitokondria menjaga keseimbangan dinamis jaringan mitokondria melalui fisi dan fusi yang dimediasi oleh seperangkat GTPase terkait dinamin, menyediakan energi untuk sel, dan mengatur proses seperti autophagy, homeostasis kalsium, imunitas bawaan, transduksi sinyal, dan apoptosis [1 ]. Mitokondria berada dalam proses yang sangat dinamis di dalam sel, menjalani siklus fisi dan fusi untuk mengontrol morfologi mitokondria. Bawang Fuzzy (Fzo) adalah protein pertama yang ditemukan untuk memediasi fusi mitokondria selama spermatogenesis Drosophila, dan mutasi pada gen Fzo dapat menyebabkan gangguan fusi mitokondria dan akumulasi abnormal pada sel sperma Drosophila [2]. Pada mamalia, protein yang memediasi fusi mitokondria terutama mencakup Mfn1 (Mitofusin1), Mfn2 (Mitofusin2), dan OPA1 (Optic atrophy 1) [3-5]. Mfns mengandung daerah pengulangan heptad (HR2), dan Mfn1 dan Mfn2, yang terletak di membran mitokondria luar (OMM), berinteraksi untuk membentuk homodimer Mfn1/Mfn2 atau heterodimer Mfn1/Mfn2 melalui oligomerisasi struktur HR2, sehingga mendorong trans-plugging fase dari OMM yang berdekatan [6,7], dan melibatkan hidrolisis GTP, yang akhirnya mengarah pada fusi OMM [8,9]. OPA1, GTPase yang terkait secara dinamis yang dilokalisasi ke IMM, berpartisipasi dalam fusi IMM. Protein OPA1 dihidrolisis menjadi fragmen berbeda di ruang antar membran: satu adalah subtipe panjang L-OPA1 yang terkait dengan fusi mitokondria, dan yang lainnya adalah subtipe pendek S-OPA1 [10,11]. L-OPA1 mencapai fusi mitokondria selektif melalui interaksi heteromorfik antara domain GTPase dan kardiolipid membran mitokondria (CL) yang berdekatan. Hilangnya protein perantara fusi (MFN1, MFN2, dan OPA1) dapat menyebabkan perubahan morfologi mitokondria, yang menyebabkan fragmentasi mitokondria. Fusi mitokondria adalah proses seluler penting yang memfasilitasi penggabungan fragmen mitokondria dan memediasi pertukaran DNA, protein, dan metabolit mitokondria. Protein konsonan mitokondria dihapus dengan teknik knockout gen dan interferensi RNA, yang menyebabkan fragmentasi mitokondria [3,5]. Mitokondria juga dapat memecah mitokondria yang rusak melalui "fisi mitokondria", memecahnya menjadi fragmen yang lebih kecil. Dalam sel mamalia, Drp1 adalah protein penting yang memediasi fisi mitokondria. Setelah Drp1 diaktifkan, ia direkrut dari sitosol ke OMM, tempat terjadinya oligomerisasi. Drp1 membentuk cincin dan spiral dalam diameter OMM dan menghidrolisis GTP tergantung pada aktivitas enzim GTP-nya, menghasilkan penyempitan dan pemotongan membran [12,13]. Transportasi dan fungsi Drp1 diatur dengan cepat oleh efek kebalikan dari fosforilasi pada dua rangkaian utama. Secara umum, fosforilasi serine 616 meningkatkan aktivitas Drp1 dan mendorong penargetan agregasi mitokondria, sementara fosforilasi pada serine 637 mengurangi aktivitas Drp1, menjaganya tetap di sitoplasma [14]. Misalnya, RIP1 memfosforilasi residu Ser616 dari Drp1, sehingga menginduksi fisi mitokondria dan menghilangkan mitokondria yang rusak melalui mitofag, ketika sel berada dalam keadaan stres energi [15]. Fosforilasi pada Ser637 dari Drp1 menghambat interaksi domain pengikatan GTP/domain tengah dengan domain GED, sehingga mengurangi aktivitas GTPase dan mengubah fungsi Drp1 dan morfologi mitokondria [16]. Drp1 membutuhkan protein dari berbagai aksesoris untuk menjalankan fungsinya. Saat ini, faktor fisi mitokondria (faktor fisi mitokondria, Mff), protein fisi mitokondria 1 (protein fisi mitokondria 1, Fis1), dinamin mitokondria 49 (protein dinamika mitokondria 49 kDa, Mi D49), dan dinamin mitokondria 51 (protein dinamika mitokondria dari 51 kDa, MiD51) yang terletak di mitokondria telah ditemukan bertindak sebagai ligan untuk Drp1, yang merekrut Drp1 ke mitokondria dan mengatur fisi mitokondria [17]. Fis1, satu-satunya reseptor Dnm1 dalam sel ragi, kontroversial karena merekrut Drp1 ke mitokondria dalam sel mamalia. Misalnya, Fis1 dan Drp1 berinteraksi dalam sel mamalia, dan peningkatan kadar Fis1 akan mendorong pembelahan mitokondria [18]. Namun, penghapusan Fis1 pada sel kanker usus besar menunjukkan bahwa pembelahan mitokondria tidak diperlukan [19]. Sebuah studi baru-baru ini menemukan bahwa Fis1 manusia memblokir mekanisme fusi mitokondria dengan mengikat Mfn1, Mfn2, dan OPA1, menunjukkan bahwa Drp1 dapat digunakan untuk fungsi Fis1 manusia [20]. Protein Mff juga merupakan molekul reseptor Drp1, berinteraksi dengan Drp1 melalui daerah sitoplasma terminal amino dan didistribusikan secara homogen pada OMM, terutama di tempat yang sama dengan Drp1 [19]. Ekspresi Mff yang berlebihan dapat mendorong perekrutan Drp1 ke mitokondria sementara membungkam ekspresi Mff dapat mendorong fusi mitokondria. Selain itu, protein dinamika mitokondria (MiDs) terlibat dalam fisi mitokondria pada sel yang kekurangan fifis1 dan Drp1. Ketika MiD diekspresikan secara berlebihan, mereka merekrut sejumlah besar Drp1 terfosforilasi S637 yang tidak aktif ke dalam mitokondria untuk memediasi pemanjangan mitokondria [21,22]. Mitokondria terlibat dalam serangkaian aktivitas seluler seperti metabolisme sel, kematian sel terprogram dan kekebalan bawaan, serta respons tubuh terhadap infeksi virus. Selain itu, dalam proses evolusi jangka panjang, virus telah mengembangkan jalur untuk mempengaruhi kelangsungan hidup intraselulernya dengan menargetkan mitokondria, dan dengan memediasi kematian sel yang disebabkan oleh mitokondria, virus dapat menyebarkan atau menghindari kekebalan inang. Dalam ulasan ini, kami mengeksplorasi bagaimana virus memanipulasi mitokondria dan bagaimana manipulasi ini memengaruhi patogenesis mikroba.

Efek Ramuan Cistanche-Antitumor
2. Infeksi Virus Mengganggu Dinamika Mitokondria
Berbagai infeksi virus dapat menyebabkan autophagy mitokondria dengan merusak keseimbangan dinamis mitokondria, yang kondusif bagi infeksi virus sendiri. Sejak awal ditemukannya perubahan morfologi mitokondria pada pasien dengan virus Hepatitis C (HCV), semakin banyak penelitian yang berfokus pada perubahan fungsi mitokondria yang disebabkan oleh infeksi HCV, yaitu virus RNA untai positif (23). Protein inti HCV dapat ditargetkan dan ditempatkan pada OMM, sehingga mengakibatkan penurunan kompleks transpor elektron I, penghambatan transpor elektron mitokondria, dan peningkatan produksi spesies oksigen reaktif (ROS) [24,25]. HCV juga menginduksi produksi ROS melalui protein Core, E1, dan NS3, yang memicu transisi permeabilitas mitokondria, yang menyebabkan kerusakan DNA dan aktivasi STAT3 (26). Mengurangi ambang permeabilitas mitokondria yang disebabkan oleh Ca2+ dan ROS adalah ciri infeksi virus hepatitis C. Ini adalah akibat langsung dari interaksi protein inti HCV dengan mitokondria [27]. Infeksi HCV juga mengganggu dinamika mitokondria dengan mendorong pembelahan mitokondria dan mitofag untuk meningkatkan persistensi virus. HCV menginduksi fosforilasi Drp1 (Ser616) dan mengangkutnya ke mitokondria untuk memediasi fisi mitokondria, sehingga menyebabkan mitofag [28]. Gangguan pembelahan mitokondria dan mitofag yang diinduksi HCV dapat mengurangi glikolisis dan produksi ATP serta meningkatkan sintesis interferon, sehingga menghambat sekresi virus [28]. Studi lain menunjukkan bahwa fisi mitokondria yang diinduksi HCV tidak hanya bergantung pada protein DRP1, tetapi protein HCV NS5A juga dapat berinteraksi dengan fosfatidilinositol 4-kinase III, yang menginduksi fragmentasi mitokondria [29]. HCV menginduksi ekspresi Parkin dan PINK1 dan memicu translokasi Parkin ke mitokondria untuk memediasi mitofag. Penghambatan mitofag dengan membungkam Parkin dan PINK1 sebagian dapat menyelamatkan aktivitas enzim kompleks I mitokondria dan menghambat replikasi HCV [28]. Menariknya, protein inti HCV berinteraksi dengan Parkin, menghambat translokasi Parkin ke mitokondria, yang mengarah pada pembentukan autofagosom mitokondria dan kegagalan degradasi autophagy [30]. Virus demam babi klasik (CSFV) dan virus Dengue (DENV) termasuk dalam keluarga virus yang sama dengan HCV, dan infeksi juga dapat memfasilitasi replikasi diri dengan mempengaruhi fungsi mitokondria [31-35]. Infeksi CSFV menyebabkan MNF2 ada di mana-mana dan terdegradasi serta merangsang ekspresi Parkin dan PINK1 serta translokasi mitokondria, yang menyebabkan fisi mitokondria dan peningkatan mitofag. Membungkam DRP1 dan Parkin mengakibatkan penurunan replikasi CSFV [31]. Protein DENV NS4B dan NS3 memediasi ketidakseimbangan dalam dinamika mitokondria dengan menghambat pembelahan mitokondria yang dipicu oleh Drp1-, yang kondusif bagi replikasi DENV. Selain itu, protein NS4B DENV dapat menonaktifkan DRP1 dan memediasi pemanjangan mitokondria [34]. Perluasan mitokondria membawa mitokondria ke dalam kontak dengan membran berbelit-belit (CMs) dan menghancurkan integritas situs pengikatan retikulum mitokondria-endoplasma pada membran terkait mitokondria (MAM), yang mengakibatkan kegagalan transduksi sinyal RLR dan mengurangi produksi interferon. Namun, penelitian lain menemukan bahwa DENV juga dapat menghambat fusi mitokondria melalui pembelahan protein NS2B3 dari MFN1 dan MFN2, menghalangi transduksi sinyal RLR dan menghancurkan potensi membran mitokondria, sehingga meningkatkan infeksi DENV [35]. Juga telah dilaporkan bahwa virus hepatitis B (HBV), sebagian virus DNA beruntai ganda milik keluarga Hepatoviridae, dapat memediasi kerusakan mitokondria pada sel hati dengan mengubah dinamika mitokondria, sehingga menyebabkan penyakit hati. Banyak penelitian telah melaporkan bahwa protein HBV HBx dapat menargetkan mitokondria dan ditempatkan di OMM, IMM, atau matriks. Penelitian telah menunjukkan bahwa MARET 5, sebuah ligase ubiquitin E3 mitokondria, dapat menurunkan akumulasi HBx di mitokondria melalui poliubiquitinasi dan mengatur dinamika mitokondria melalui ubiquitinasi Drp1, Fis1, dan Mfn1, sehingga secara negatif mengatur HBV [36]. HBx merekrut Parkin untuk menghancurkan mitokondria yang terdepolarisasi/disfungsional dengan meningkatkan regulasi ekspresi PINK1 [37]. Penelitian lain menunjukkan bahwa protein HBV dan HBx mendorong pembelahan mitokondria dengan meningkatkan ekspresi DRP1. Protein HBV dan HBx juga meningkatkan kelangsungan hidup sel dan infeksi virus yang persisten melalui stimulasi mitofag yang dimediasi Parkin [37]. PB1-F2 merupakan faktor virulensi penting untuk patogenisitas virus influenza, yang merupakan virus RNA berselubung dari keluarga thomyxoviridae. PB1-F2 menargetkan mitokondria dan diangkut ke IMM melalui saluran TOMM40, menyebabkan hilangnya potensi membran mitokondria dan mengganggu fungsi mitokondria [38-40]. Sebaliknya, subtipe influenza A PB1-F2 yang patogen rendah, yang tidak memiliki daerah terminal-c, tidak menyebabkan disfungsi mitokondria [41]. PB1-F2 berinteraksi dengan TUFM (faktor pemanjangan terjemahan Tu, mitokondria) pada mitokondria menginduksi mitofag, dan menghambat ekspresi interferon tipe I [42]. Namun, penelitian terbaru menunjukkan bahwa infeksi H1N1 dapat meningkatkan pemanjangan mitokondria dan mengubah lokasi kontak retikulum endoplasma-mitokondria sel inang dengan meningkatkan ekspresi OPA1 dan menurunkan ekspresi DRP1, sehingga mengubah dinamika morfologi mitokondria. Selain itu, pengobatan sel dengan Mito-C (senyawa pro-fisi baru) secara signifikan mengurangi replikasi virus dengan memulihkan sebagian fungsi mitokondria [43]. Severe Acute Respiratory Syndrome Coronavirus (SARS-CoV) adalah virus RNA beruntai positif beruntai tunggal yang termasuk dalam genus Coronavirus. NSP2-nya berinteraksi dengan PHB1 dan PHB2, terlibat dalam beberapa fungsi seluler, sehingga mengganggu sinyal intraseluler dan mempengaruhi biogenesis mitokondria [44,45]. Faktor virulensi SARS-CoV ORF-9B juga menurunkan DRP1 melalui proteasome, menyebabkan fusi mitokondria yang menghindari respon imun bawaan inang [46]. Severe Acute Respiratory Syndrome Coronavirus 2 (SARS-CoV-2), yang merupakan anggota keluarga yang sama dengan SARS-CoV, telah menyebabkan gangguan sosial dan ekonomi global. Penelitian terbaru menunjukkan bahwa SARS-CoV-2 dapat memanipulasi respon imun dan metabolisme sel untuk mendorong replikasi sel dengan mengatur autophagy, meningkatkan proses ROS, dan menurunkan fungsi mitokondria [47]. Pada SARS-CoV-2, ORF9b berinteraksi dengan subunit TOM70 dari mekanisme impor protein OMM [48], yang memiliki potensi efek regulasi pada MAVS. SARS-CoV-2 Nsp4, yang diperlukan untuk pembentukan CM di SARS-CoV, berpotensi berinteraksi dengan kompleks mesin impor mitokondria (TIM) [48]. SARS-CoV-2 Nsp8 juga berinteraksi dengan ribosom mitokondria [48]. Semakin banyak penelitian menunjukkan bahwa virus mempertahankan situs ekologi replikasi virus dengan memanipulasi dinamika mitokondria (Gambar 1). Oleh karena itu, studi tentang dinamika virus dan mitokondria dapat menjadi target obat yang penting untuk pengobatan infeksi virus.

Gambar 1. Infeksi virus mengganggu dinamika mitokondria. Virus yang berbeda mempengaruhi dinamika mitokondria melalui protein fusi mitokondria (MFNs, OPA1) atau protein fisi (DRP1) dan menginduksi mitofag untuk membersihkan mitokondria yang rusak guna meningkatkan kelangsungan hidup sel dan persistensi virus.
3. Infeksi Virus Mengatur Kematian Sel yang Diinduksi Mitokondria

Tanaman cistanche ramuan Cina-Antitumor
Apoptosis adalah proses otonomi sel dan kematian terprogram, dikendalikan oleh gen, untuk menjaga stabilitas lingkungan internal. Saat ini, apoptosis sel dapat dibagi menjadi tiga jalur. Mitokondria mempengaruhi kematian sel melalui jalur apoptosis intrinsik. Ketika apoptosis diinduksi, aktivasi protein membran mitokondria menggunakan saluran protein keluarga Bcl-2 memicu permeabilitas membran luar mitokondria dan melepaskan protein apoptosis (seperti Cyt c, Smac, dll.) ke dalam sitoplasma. Cyt c dan faktor pengaktif protease apoptosis 1 (APAF1) berinteraksi, membentuk apoptosom dan mengaktifkan procaspase-9, yang memecahkan caspase-3 dan caspase-7, sehingga menginduksi apoptosis sel [49]. Banyak virus mendorong penyebaran virus dengan menginduksi kematian sel atau mempertahankan infeksi yang persisten melalui penghambatan kematian sel. HCV menghambat apoptosis sel dengan mengganggu dinamika mitokondria. Infeksi HCV menginduksi fosforilasi DRP1Ser616, yang memicu pembelahan mitokondria dan mitofag, sehingga menghambat apoptosis sel, yang pada akhirnya meningkatkan persistensi virus [28]. Infeksi CSFV mirip dengan infeksi HCV. Infeksi CSFV dan HCV memicu terjadinya mitofag melalui pengaktifan jalur PINK1 dan Parkin untuk membersihkan gangguan mitokondria dan mencegah pelepasan protein pro-apoptosis, sehingga menghambat apoptosis sel dan mempertahankan infeksi virus [28,31]. Pembungkaman Drp1 memblokir fisi mitokondria, mitofag, dan sinyal apoptosis yang diatur oleh HCV dan CSFV, sehingga mengurangi sekresi virion [28,31]. Menariknya, protein virus HCV memainkan peran berbeda dalam menginduksi apoptosis. Misalnya, protein NS4A mengubah distribusi mitokondria intraseluler, menyebabkan kerusakan mitokondria dan pelepasan Cyt c ke dalam sitoplasma, sehingga mengaktifkan apoptosis yang dimediasi Caspase-3-[50]. Protein E2, ditransfusikan dalam sel Huh-7, menurunkan regulasi Bcl-2 dan meningkatkan regulasi Bax, yang dapat menginduksi apoptosis melalui jalur caspase yang bergantung pada mitokondria [51]. Interaksi protein inti dengan protein 14-3-3ε melepaskan Bax untuk mengaktifkan apoptosis [52]. NS4B menyebabkan penurunan potensi membran mitokondria, mengaktifkan caspase 9, dan melepaskan Cyt c, menginduksi apoptosis melalui jalur kematian mitokondria [53]. Protein NS4A dan NS3-4A meningkatkan regulasi Bax dan mentranslokasi ke mitokondria, menurunkan regulasi ekspresi protein anti-apoptosis Bcl-xL dan mengaktifkan caspase-9, sehingga menginduksi kematian yang dimediasi mitokondria melalui Reaksi kaskade Bax dan caspase, yang akhirnya menginduksi kematian sel [54]. Penelitian lebih lanjut mengenai fungsi dan mekanisme protein virus serta zat yang menghambat aktivitas protein virus dapat memberikan ide baru untuk pengobatan dan pengembangan obat hepatitis kronis. Virus HBV juga menginduksi apoptosis. Protein HBx dapat berinteraksi kuat dengan p53 dalam struktur agregat mitokondria, yang menyebabkan kematian sel [55]. Demikian pula, DENV menginduksi apoptosis yang dimediasi mitokondria yang bergantung pada p53-[56]. Dengan berikatan dengan Bax, HBx mengganggu interaksi antara Bax dan 14-3-3epsilon, meningkatkan transmigrasi Bax ke mitokondria, mengatur pembukaan pori transisi permeabilitas mitokondria dan melepaskan Caspase-3 dan sitokrom C, lalu memediasi apoptosis mitokondria endogen [57,58]. HBV juga menghambat apoptosis dan mempertahankan infeksi virus dengan mengubah dinamika mitokondria. HBx dapat menginduksi ubiquitinasi Mfn2, meningkatkan ekspresi DRP1, menyebabkan fisi mitokondria, dan menginduksi mitofag melalui jalur PINK1-Parkin untuk menghambat apoptosis sel dan menjaga kelangsungan hidup sel dan infeksi virus yang persisten [37]. Selain itu, SARS-CoV juga dapat menginduksi apoptosis sel. Protein SARS-CoV 3a dapat mengaktifkan pelepasan protein caspase-9 dan sitokrom c dari mitokondria atau mengaktifkan caspase-8 melalui sinyal ekstrinsik dan menyebabkan aktivasi Bid untuk memodulasi jalur kematian mitokondria [59]. Protein N SARS-CoV menginduksi penurunan potensi membran mitokondria dan peningkatan pelepasan ROS dan sitokrom C, yang memediasi apoptosis [59,60]. Selain itu, protein SARS-CoV M menginduksi pelepasan protein sitokrom c mitokondria, yang memediasi apoptosis sel [61]. Demikian pula, protein SARS-CoV-2 3dapat menginduksi apoptosis [48]. Selain itu, virus dapat mendorong replikasi dan penyebaran dengan mengatur kematian sel. Misalnya, Rotavirus, virus RNA beruntai ganda milik keluarga Reoviridae, dapat menginduksi apoptosis. Studi terbaru menunjukkan bahwa NSP4 mengubah potensi membran mitokondria dan permeabilitas mitokondria melalui interaksi dengan translocator nukleotida adenin protein membran mitokondria dan saluran anion yang bergantung pada tegangan (VDAC), melepaskan sitokrom C, mengaktifkan caspase, dan meningkatkan regulasi sinyal apoptosis untuk memediasi apoptosis sel [62]. Selain itu, infeksi Rotavirus dapat meningkatkan regulasi konsentrasi Bax dan memediasi apoptosis melalui jalur mitokondria [63]. Di sisi lain, pada tahap awal infeksi Rotavirus, NSP1 menghambat apoptosis sel dengan mengaktifkan jalur pensinyalan PI3K/Akt atau menghambat regulasi p53 dan memastikan replikasi awal virus di dalam sel [64]. Infeksi rotavirus juga memediasi apoptosis dengan mengatur dinamika mitokondria. Pada tahap akhir infeksi Rotavirus, NSP4 menginduksi fosforilasi Ser616 Drp1 melalui CDK1 dan berpartisipasi dalam perekrutan DRP1 ke mitokondria, memediasi fragmentasi mitokondria, melepaskan Cyt c, dan mengaktifkan caspase-9 dan caspase-3 untuk menginduksi apoptosis dan memfasilitasi penyebaran virus [65]. Demikian pula, faktor virulensi influenza A PB1-F2 menargetkan IMM yang menyebabkan disfungsi mitokondria, dan menginduksi kematian sel melalui jalur mitokondria endogen [38,66]. Virus Zika adalah virus RNA untai positif beruntai tunggal yang termasuk dalam genus Flavivirus, dan infeksi virus Zika juga dapat mengurangi potensi transmembran mitokondria, mengurangi ekspresi Mfn2, dan mendorong fragmentasi mitokondria, sehingga menginduksi apoptosis sel. Inhibitor pembelahan mitokondria 1 (Mdivi-1), sebuah molekul kecil yang menghambat fisi mitokondria, menghambat fisi mitokondria dan meningkatkan dinamika mitokondria setelah infeksi virus Zika, sehingga meningkatkan kelangsungan hidup sel [67]. Menariknya, berbagai strategi untuk menghindari kekebalan seluler telah dikembangkan pada virus. Misalnya, infeksi virus dapat menginduksi apoptosis sel untuk memfasilitasi pelepasan dan penyebaran. Selain itu, virus dapat menghambat apoptosis sel melalui mitofag, sehingga memastikan replikasinya. Saat ini, mekanisme antara apoptosis dan autophagy belum sepenuhnya dipahami, namun regulasi setiap proses menjaga sel dalam keadaan seimbang [68,69]. Beberapa penelitian menunjukkan bahwa banyak virus dapat mempertahankan infeksi virus dengan memicu mitofag untuk mencegah apoptosis. HCV membersihkan fisi mitokondria melalui mitofag, sehingga menghambat apoptosis sel. Membungkam DRP61 atau Parkin dapat meningkatkan sekresi sitokrom C, secara signifikan meningkatkan sinyal apoptosis dan meningkatkan aktivitas caspase3. Hasil ini menunjukkan bahwa HCV meningkatkan persistensi virus dengan melemahkan apoptosis melalui mitofag [28]. Sindrom reproduksi dan pernapasan babi (PRRSV), virus RNA untai positif tunggal dari keluarga Arteriviridae, dapat mendorong replikasi diri dengan mengganggu dinamika mitokondria, menginduksi mitofag, dan menghambat apoptosis sel (70). HBV menginduksi pembelahan mitokondria dan molekul mitofag, yang memediasi pembelahan mitokondria dan mitofag serta mengurangi apoptosis sel yang diinduksi virus. Mengganggu produksi mitofag meningkatkan sinyal apoptosis dan mengurangi replikasi virus [37]. Demikian pula, virus penyakit Newcastle (NDV), virus RNA negatif beruntai tunggal yang termasuk dalam keluarga Paramyxoviridae, virus reproduksi babi, dan CSFV dapat menghambat apoptosis sel dengan menginduksi mitofag, sehingga mendorong infeksi virus [31,71]. Dalam konteks infeksi virus, bagaimana apoptosis mengatur mitofag dan mekanisme molekuler dari pengaturan timbal balik antara apoptosis dan mitofag memerlukan penelitian lebih lanjut. Kesimpulannya, virus menginduksi apoptosis melalui jalur mitokondria mempertahankan replikasi diri (Gambar 2). Oleh karena itu, penelitian lebih lanjut mengenai mekanisme spesifik apoptosis sel yang diinduksi virus akan memfasilitasi obat antivirus baru untuk virus yang berbeda.
4. Infeksi Virus Mengatur Imunitas Bawaan yang Diinduksi Mitokondria

manfaat cistanche untuk pria-memperkuat sistem kekebalan tubuh
Klik di sini untuk melihat produk Cistanche Meningkatkan Imunitas
【Minta lebih lanjut】 Email:cindy.xue@wecistanche.com / Aplikasi WhatsApp: 0086 18599088692 / Wechat: 18599088692
Ketika virus menginfeksi sel, inang mengaktifkan sistem kekebalan bawaan untuk mengenali virus melalui reseptor pengenalan patogen (PRR), seperti TLR, RLR, dan NLR. Di sini, kami fokus pada infeksi virus yang mengatur jalur pensinyalan RLR yang dimediasi mitokondria. Banyak pola molekuler terkait patogen virus (PAMP) dikenali oleh gen I yang diinduksi asam retinoat (RIG-I) dan gen terkait diferensiasi melanoma 5 (MDA5); RIG-1 dan MDA5 mengalami perubahan konformasi yang mengakibatkan paparan domain CARD membentuk oligomer homolog. RIG-1 dan MDA5 mengenali dan mengikat satu sama lain melalui domain N-terminal CARD dan domain N-terminal CARD MAVS, membentuk polimer mirip prion MAVS dan mengaktifkan jalur sinyal hilir seperti NF-κB dan IRF3/ 7, sehingga menginduksi ekspresi sitokin inflamasi dan interferon yang terlibat dalam tanggapan antivirus bawaan. MAVS terletak di OMM sebagai protein adaptor penting dari jalur RLR. Fungsi MAVS bergantung pada lokalisasi mitokondria, yang menegaskan bahwa mitokondria memainkan peran penting dalam jalur sinyal imun bawaan.

Gambar 2. Infeksi virus mengatur kematian sel yang disebabkan oleh mitokondria. Virus yang berbeda memediasi protein keluarga limfoma sel B 2 (Bcl-2), melepaskan Cyt c, mengaktifkan procaspase-9, dan membentuk apoptosom, sehingga menginduksi apoptosis sel.
Semakin banyak penelitian menunjukkan bahwa virus mengembangkan serangkaian strategi untuk melawan jalur sinyal RLR di mitokondria selama evolusinya untuk melepaskan diri dari sistem kekebalan tubuh inang (Gambar 3). Protein SARS-CoV 3b menghambat produksi IFN tipe I dengan menghalangi aktivitas MAVS [72]. Selain itu, protein Nsp13 dan protein 9C dari SARS-CoV-2 mungkin terlibat dalam regulasi transduksi sinyal MAVS, sehingga memediasi respon imun bawaan [48]. Sebuah penelitian baru-baru ini menunjukkan bahwa infeksi SARS-CoV-2 pada sel kanker epitel usus besar manusia Caco-2 mengakibatkan penurunan ekspresi MAVS [73]. HCV dapat menghindari kekebalan tubuh sehingga menyebabkan infeksi kronis. NS3/4A dapat dilokalisasi di mitokondria dan dikombinasikan dengan MAVS. NS3/4A memotong MAVS di Cys- 508, menyebabkan fragmen N-terminal MAVS terkilir dari mitokondria dan menjadi fragmen tidak aktif, yang mencegah produksi IFN [74,75]. Demikian pula, virus Hepatovirus Kelelawar dan virus Seneca Valley adalah virus RNA, keduanya termasuk dalam famili Picornaviridae, yang juga dapat mengganggu transduksi sinyal imun bawaan dengan berinteraksi dengan protein MAV, sehingga mempertahankan infeksi virus [76,77]. Protease Bat Hepatovirus 3ABC berinteraksi dengan MAVS manusia dan membelah MAVS di Glu463/Gly464 untuk menghambat aktivasi IRF3 dan NF-κB, sehingga menghalangi produksi interferon tipe I dalam sel manusia [76]. Protease 3C virus Seneca Valley bergantung pada aktivitas proteasenya untuk membelah MAVS pada Q148, menghambat interferon tipe I (77). Selain itu, virus juga dapat mendegradasi MAVS melalui jalur proteasome dan memblokir jalur pensinyalan RLR. Misalnya, protein HBV HBx dapat berinteraksi dengan MAVS, mendorong ubiquitinasi dan degradasi MAVS, dan menghambat jalur RIG-I-MDA5, yang bersama-sama mengurangi produksi IFN- [78]. Protein NDV V merekrut E3 ubiquitin ligase RNF5 untuk memediasi degradasi MAVS melalui jalur proteasomal untuk mencegah produksi IFN (79). Protein Rotavirus VP3 menargetkan mitokondria dan memediasi fosforilasi motif SPLTSS di wilayah MAVS yang kaya prolin, menyebabkan MAVS terdegradasi melalui jalur proteasome, menghalangi produksi IFN- selama infeksi Rotavirus pada sel epitel usus [80]. Virus juga menghambat jalur pensinyalan RLR dengan memblokir pengikatan MAVS ke RIG-1 dan MDA5. Dengan mengikat 14-3-3-motif pengikatan, virus Zika NS3 mencegah RIG-1 dan MDA5 diangkut ke mitokondria, sehingga menghalangi produksi interferon yang dimediasi oleh jalur pensinyalan RLR [81]. DENV NS4A berikatan dengan domain N-terminal CARD-like (CL) dan domain C-terminal transmembrane (TM) dari MAVS, yang mencegah MAVS mengikat RIG-I dan menghambat produksi interferon [82]. Virus juga dapat menghindari kekebalan bawaan inang dengan memanipulasi microRNA, mengatur berbagai sistem kekebalan inang melalui regulasi pasca-transkripsi untuk memblokir jalur sinyal RLR. Vesicular Stomatitis Virus (VSV), virus RNA negatif beruntai tunggal (ssRNA) dari famili Rhabviridae, infeksi menginduksi miR-576-3p melalui IRF3 dan mengatur mRNA MAVS dan TRAF3 untuk mengurangi ekspresi interferon tipe I dan menghindari peradangan yang berlebihan [ 83]. Rhabdovirus menginfeksi banyak makrofag croaker, menginduksi ekspresi miR-3570 dan menargetkan serta menekan ekspresi MAVS, sehingga mempromosikan virus [84]. Penelitian telah menunjukkan bahwa miR-302b dan miR-372 yang diinduksi oleh infeksi virus dapat memanipulasi fungsi sel dan metabolisme mitokondria melalui transporter aspartat glutamat SLC25A12, sehingga mengganggu kekebalan bawaan yang dimediasi MAVS terhadap virus antivirus [85]. Menariknya, pengenalan miR-302b dan miR-372 ke dalam sel dapat menurunkan kadar NADH, menghasilkan peningkatan rasio NAD/NADH hingga 50%, dan penurunan konsumsi oksigen mitokondria. , dan pada akhirnya terjadi perubahan jalur metabolisme seluler dari siklus asam sitrat ke pencernaan gula, sekaligus meningkatkan kandungan laktat [85]. Penelitian terbaru menunjukkan bahwa infeksi virus hepatitis B berikatan langsung dengan MAVS melalui asam laktat yang bergantung pada laktat dehidrogenase untuk mencegah MAVS dari agregasi dan lokalisasi mitokondria, sehingga menghalangi jalur pensinyalan RLR [86]. Karena asam laktat memainkan peran regulasi negatif dalam respon imun bawaan yang dimediasi oleh betis [87], kedua miRNA ini dapat mempengaruhi imunitas bawaan melalui regulasi asam laktat.
5. Infeksi Virus Mengatur Metabolisme Mitokondria
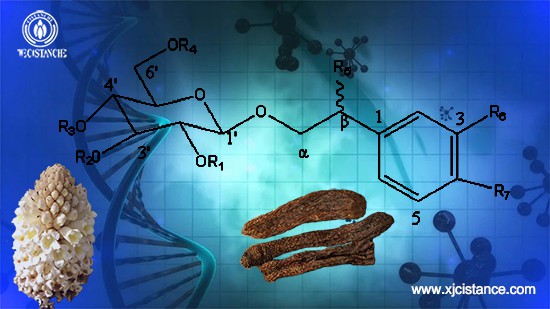
Glikosida feniletanol adalah komponen aktif utama Cistanche deserticola
Mitokondria adalah pusat metabolisme energi sel; mereka menghasilkan ATP dengan mengatur metabolisme makromolekul karbohidrat, asam amino, dan asam lemak. Sumber energi utama sel mengalami defosforilasi oleh molekul ATP menjadi molekul adenosin difosfat (ADP). Agar proses ini dapat berlanjut, sel perlu memecah beberapa metabolit makromolekul melalui jalur seperti glikolisis, siklus asam trikarboksilat, dan fosforilasi oksidatif. Glukosa adalah sumber energi utama bagi sel. Di sitoplasma, dua molekul ATP diproduksi melalui glikolisis dari satu molekul glukosa, menghasilkan dua molekul piruvat. Untuk mengoptimalkan produksi ATP, sel menjalani fosforilasi oksidatif (OXPHOS), yang mengoksidasi piruvat ke dalam matriks mitokondria melalui pembawa piruvat mitokondria (MPC) dengan siklus asam trikarboksilat. Akhirnya, oksidasi lengkap satu molekul glukosa melalui rantai transpor elektron mitokondria menghasilkan 36 molekul ATP. Meskipun fosforilasi oksidatif menghasilkan efisiensi energi yang tinggi, prosesnya lambat dan tidak dapat memenuhi kebutuhan energi sel yang membelah dengan cepat, seperti sel kekebalan yang teraktivasi atau sel kanker. Oleh karena itu, sel-sel ini perlu memulai glikolisis aerobik (juga disebut efek Warburg) untuk menghasilkan energi dengan cepat guna mempertahankan aktivitasnya. Selain itu, selama kelaparan dan keadaan darurat, lipase memecah lipid menjadi asam lemak bebas, yang masuk ke mitokondria untuk oksidasi asam lemak, sehingga menjaga keseimbangan metabolisme energi sel.

Gambar 3. Infeksi virus mengatur imunitas bawaan yang diinduksi mitokondria. Setelah virus menyerang sel, RLR mengenali RNA virus dan berinteraksi dengan sinyal antivirus mitokondria (MAVS) untuk mengaktifkan jalur sinyal antivirus. Virus yang berbeda menghindari imunitas bawaan inang dengan menghalangi jalur sinyal RLR.
Banyak virus dapat secara aktif membentuk kembali metabolisme sel inang untuk meningkatkan kelangsungan hidup intraseluler. Infeksi HCV menyebabkan perubahan metabolisme sel, yang meningkatkan penghabisan karbohidrat selama glikolisis dan menurunkan aktivitas fosforilasi oksidatif aerobik dan siklus asam sitrat, yang dapat mengarahkan sel menuju Efek Warburg dengan cukup cepat, dalam beberapa hari atau minggu setelah infeksi. sel [88–90]. Dalam penelitian baru-baru ini, beberapa komponen penting dari kompleks rantai pernapasan mitokondria ditemukan mengalami penurunan regulasi enam hari setelah infeksi HCV, termasuk MT-ND1, MT-ND3, MT-ND4, MT-ND4L, dan MT-CO2 [91 ]. Selain itu, penurunan regulasi sintase MTND, COX, dan F0/F1ATP ditemukan pada siklus sel T CD8+yang terinfeksi HCV [92,93]. Telah ditunjukkan bahwa HCV secara sistematis membatasi aktivitas fosforilasi oksidatif dengan mengubah ekspresi kompleks rantai pernapasan mitokondria [94]. HIF-1 dan proto-onkogen c-myc diekspresikan secara signifikan dalam sel yang terinfeksi HCV, menginduksi ekspresi beberapa enzim kunci glikolitik, termasuk glukokinase (GK), fosfoglukosa-1 (PFK{{27} }), dan piruvat kinase (PK) [95-97]. Selain itu, infeksi HCV menginduksi peningkatan regulasi ekspresi Hexokinase 2 dan meningkatkan aktivitas Hexokinase melalui interaksi dengan protein HCV NS5a [98]. Infeksi DENV juga menginduksi peningkatan regulasi transporter glukosa 1 dan heksokinase 2 [99]. Penghambatan jalur glikolitik secara signifikan mengurangi sintesis RNA DENV dan produksi virion menular, mengungkapkan bahwa DENV dapat merombak glikolisis seluler untuk mempertahankan replikasinya (99). Menariknya, protein DENV mempunyai efek berbeda pada metabolisme inang. Protein DENV NS1 berinteraksi dengan GAPDH untuk meningkatkan aktivitas glikolitik GADPH [100]. Namun interaksi protein DENV NS3 dengan GAPDH mengakibatkan berkurangnya aktivitas glikolisis GAPDH [101]. Infeksi HCV dan DENV dapat mengubah metabolisme sel, meningkatkan oksidasi asam lemak mitokondria, dan menyediakan energi [102-104]. Sementara itu, penghambatan transpor asam lemak ke mitokondria dan regulasi -oksidasi dapat mempengaruhi replikasi virus [103]. Virus Zika dapat memanfaatkan sumber daya inang dan memprogram ulang metabolisme sel dalam sel yang berbeda untuk mengatur keadaan sel dalam jalur metabolisme yang berbeda, sehingga memfasilitasi replikasi diri [105-108]. HIV bereplikasi dalam sel T CD4+ dan menyebabkan pemrograman ulang metabolik dari fosforilasi oksidatif menjadi glikolisis aerobik [109]. Infeksi HIV menginduksi peningkatan transporter glukosa-1, penyerapan lebih banyak glukosa, dan peningkatan regulasi enzim glikolitik laktat dehidrogenase A (LDHA) heksokinase-1, sehingga mengaktifkan glikolisis aerobik, yang kondusif untuk Transkripsi balik HIV, integrasi, dan produksi virion [110-113]. Selain meningkatkan glikolisis aerobik, sel T CD4+ yang terinfeksi HIV dapat menyebabkan metabolisme glutamin dan menggunakan kembali glutamin selama infeksi HIV produktif [114,115]. Selain glukosa dan glutamin sebagai sumber energi utama, HIV juga menggunakan oksidasi asam lemak sebagai sumber energi untuk menginfeksi sel T CD{59}} [115]. Sebuah penelitian baru-baru ini menunjukkan bahwa infeksi HIV menginduksi glikolisis aerobik, yang membantu mengendalikan kualitas virus dengan mengendalikan faktor-faktor yang dikemas dalam partikel untuk mempertahankan infektivitas [116]. Meskipun metabolisme mitokondria berkaitan erat dengan infeksi virus, mekanisme virus menargetkan metabolisme mitokondria dan bagaimana virus memanfaatkan energi yang dihasilkan oleh metabolisme sel masih belum jelas.
6. Catatan Penutup
Selama beberapa dekade terakhir, mitokondria telah terbukti memainkan peran penting dalam infeksi virus dan menjadi tuan rumah kekebalan bawaan; namun, peran mitokondria dalam interaksi inang-virus perlu dipelajari lebih lanjut. Infeksi virus dapat menciptakan ceruk ekologis yang layak bagi dirinya sendiri dengan memanipulasi fungsi mitokondria. Virus ini menginduksi kematian sel yang disebabkan oleh mitokondria dan sistem kekebalan bawaan yang dimediasi mitokondria untuk memfasilitasi replikasi dan penularannya dengan mengatur dinamika mitokondria. Dalam beberapa tahun terakhir, peran mitokondria sebagai pusat pengaturan metabolisme sel semakin menarik perhatian. Virus dapat memanipulasi metabolisme sel, memprogram ulang jalur metabolisme, dan menggunakan kembali metabolit untuk mempertahankan relung virus dalam sel. Namun, penelitian tentang mitokondria dan metabolismenya masih dalam tahap awal. Menggali mekanisme virus menggunakan metabolisme sel yang dimediasi mitokondria untuk mempertahankan infeksi adalah bidang yang menarik untuk penelitian di masa depan.
Referensi
1. Kiriyama, Y.; Nochi, H. Mekanisme Kontrol Kualitas Intra dan Antar Sel Mitokondria. Sel 2017, 7, 1. [CrossRef] [PubMed]
2. Hales, KG; Lebih lengkap, MT Fusi mitokondria yang diatur secara perkembangan yang dimediasi oleh GTPase yang dilestarikan, baru, dan diprediksi. Sel 1997, 90, 121–129. [Referensi Silang]
3. Chen, H.; Detmer, SA; Ewald, AJ; Griffin, EE; Fraser, SE; Chan, DC Mitofusins Mfn1 dan Mfn2 secara terkoordinasi mengatur fusi mitokondria dan penting untuk perkembangan embrio. J. Biol Sel. 2003, 160, 189–200. [Referensi Silang]
4. Chen, H.; Chomyn, A.; Chan, DC Gangguan fusi menyebabkan heterogenitas dan disfungsi mitokondria. J.Biol. kimia. 2005, 280, 26185–26192. [Referensi Silang]
5. Cipolat, S.; Martins de Brito, O.; Dal Zilio, B.; Scorrano, L. OPA1 membutuhkan mitofusin 1 untuk mendorong fusi mitokondria. Proses. Natal. Akademik. Sains. AS 2004, 101, 15927–15932. [Ref Silang] [PubMed]
6. Koshiba, T.; Detmer, SA; Kaiser, JT; Chen, H.; McCaffery, JM; Chan, DC Dasar struktural penambatan mitokondria oleh kompleks mitofusin. Sains 2004, 305, 858–862. [Referensi Silang]
7. Cao, YL; Meng, S.; Chen, Y.; Feng, JX; Gu, DD; Yu, B.; Li, YJ; Yang, JY; Liao, S.; Chan, DC; dkk. Struktur Mfn1 mengungkapkan dimerisasi yang dipicu nukleotida yang penting untuk fusi mitokondria Alam 2017, 542, 372–376. [Referensi Silang]
8. Otera, H.; Mihara, K. Mekanisme molekuler dan fungsi fisiologis dinamika mitokondria. J. Biokimia. 2011, 149, 241–251. [Referensi Silang]
9. Rojo, M.; Legros, F.; Istana, D.; Lombès, A. Topologi membran dan penargetan mitofusin mitokondria, homolog transmembran mamalia yang ada di mana-mana. J. Ilmu Sel. GTPase Fzo. 2002, 115, 1663–1674.
10. Anand, R.; Tunggu.; Tukang roti, MJ; Kladt, N.; Schauss, AC; Rugarli, E.; Langer, T. Protease i-AAA YME1L dan OMA1 membelah OPA1 untuk menyeimbangkan fusi dan fisi mitokondria. J. Biol Sel. 2014, 204, 919–929. [Ref Silang] [PubMed]
11. Tondera, D.; Grandemange, S.; Jourdain, A.; Karbowski, M.; Mattenberger, Y.; Herzig, S.; Da Cruz, S.; Clerc, P.; Raschke, saya.; Merkwirth, C.; dkk. SLP-2 diperlukan untuk hiperfusi mitokondria yang disebabkan oleh stres. EMBO J.2009, 28, 1589–1600. [Ref Silang] [PubMed]
12. Ingerman, E.; Perkins, EM; Marino, M.; Ya, JA; McCaffery, JM; Hinshaw, JE; Nunnari, J. Dnm1 membentuk spiral yang secara struktural disesuaikan dengan fifit mitokondria. J. Biol Sel. 2005, 170, 1021–1027. [Referensi Silang]
13. Ji, WK; Menetas, AL; Merrill, RA; Strack, S.; Higgs, HN Filamen aktin menargetkan pematangan oligomer dinamin GTPase Drp1 ke lokasi fisi mitokondria. Elife 2015, 4, e11553. [Ref Silang] [PubMed]
14. Taguchi, N.; Ishihara, N.; Jofuku, A.; Oke, T.; Mihara, K. Fosforilasi mitosis GTPase Drp1 terkait dinamin berpartisipasi dalam fifisi mitokondria. J.Biol. kimia. 2007, 282, 11521–11529. [Ref Silang] [PubMed]
15. Saito, T.; Nah, J.; Oke, SI; Mukai, R.; Monden, Y.; Maejima, Y.; Ikeda, Y.; Sciarretta, S.; Liu, T.; Li, H.; dkk. Jalur mitofag alternatif yang dimediasi oleh Rab9 melindungi jantung dari iskemia. J.Klin. Selidiki. 2019, 129, 802–819. [Referensi Silang]
16. Chang, CR; Blackstone, C. Fosforilasi protein kinase yang bergantung pada AMP siklik dari Drp1 mengatur aktivitas GTPase dan morfologi mitokondria. J.Biol. kimia. 2007, 282, 21583–21587. [Ref Silang] [PubMed]
17. Richter, V.; Singh, AP; Kvansakul, M.; Ryan, MT; Osellame, LD Memisahkan pembangkit tenaga listrik: Wawasan struktural terhadap mekanisme fisi mitokondria. sel mol. Ilmu Kehidupan. 2015, 72, 3695–3707. [Referensi Silang]
18. Yoon, Y.; Krueger, Barat; Oswald, BJ; McNiven, MA Protein mitokondria hFis1 mengatur fisi mitokondria dalam sel mamalia melalui interaksi dengan protein mirip dinamin DLP1. mol. Biol Sel. 2003, 23, 5409–5420. [Referensi Silang]
19. Otera, H.; Wang, C.; Cleland, MM; Setoguchi, K.; Yokota, S.; Anda, RJ; Mihara, K. Mff adalah faktor penting untuk rekrutmen Drp1 mitokondria selama pembelahan mitokondria dalam sel mamalia. J. Biol Sel. 2010, 191, 1141–1158. [Referensi Silang]
20. Yu, R.; Jin, SB; Lendahl, U.; Nister, M.; Zhao, J. Human Fis1 mengatur dinamika mitokondria melalui penghambatan mesin fusi. EMBO J.2019, 38, e99748. [Referensi Silang]
21. Palmer, CS; Osellame, LD; Laine, D.; Koutsopoulos, OS; Frazier, AE; Ryan, MT MiD49 dan MiD51, komponen baru dari mesin fifisi mitokondria. Perwakilan EMBO 2011, 12, 565–573. [Referensi Silang]
22. Zhao, J.; Liu, T.; Jin, S.; Wang, X.; Qu, M.; Uhlén, P.; Tomilin, N.; Shupliakov, O.; Lendahl, U.; Nistér, M. Human MIEF1 merekrut Drp1 ke membran luar mitokondria dan mendorong fusi mitokondria daripada fisi. EMBO J.2011, 30, 2762–2778. [Referensi Silang]
23. Barbaro, G.; Di Lorenzo, G.; Asti, A.; Ribersani, M.; Belloni, G.; Gregorio, B.; Filice, G.; Barbarini, G. Perubahan mitokondria hepatoseluler pada pasien dengan hepatitis C kronis: Temuan ultrastruktural dan biokimia. Saya. J.Gastroenterol. 1999, 94, 2198–2205. [Referensi Silang]
24. Schwer, B.; Ren, S.; Pietschmann, T.; Kartenbeck, J.; Kaehlcke, K.; Bartenschlager, R.; Yen, TS; Ott, M. Menargetkan protein inti virus hepatitis C ke mitokondria melalui motif lokalisasi terminal-C yang baru. J.Virol. 2004, 78, 7958–7968. [Ref Silang] [PubMed]
25. Korenaga, M.; Wang, T.; Li, Y.; Showalter, LA; Chan, T.; Matahari, J.; Weinman, SA Protein inti virus hepatitis C menghambat transpor elektron mitokondria dan meningkatkan produksi spesies oksigen reaktif (ROS). J.Biol. kimia. 2005, 280, 37481–37488. [Ref Silang] [PubMed]
26. Machida, K.; Cheng, KT; Lai, CK; Jeng, KS; Dinyanyikan, VM; Lai, MM Virus Hepatitis C memicu transisi permeabilitas mitokondria dengan produksi spesies oksigen reaktif, yang menyebabkan kerusakan DNA dan aktivasi STAT3. J.Virol. 2006, 80, 7199–7207. [Ref Silang] [PubMed]
27. Wang, T.; Campbell, RV; Yi, MK; Lemon, SM; Weinman, SA Peran protein inti virus Hepatitis C dalam disfungsi mitokondria yang disebabkan oleh virus. J.Viral. hati. 2010, 17, 784–793. [Referensi Silang]
28.Kim, SJ; Syed, GH; Khan, M.; Chiu, WW; Sohail, MA; Astaga, RG; Siddiqui, A. Virus Hepatitis C memicu pembelahan mitokondria dan melemahkan apoptosis untuk meningkatkan persistensi virus. Proses. Natal. Akademik. Sains. AS 2014, 111, 6413–6418. [Referensi Silang]
29. Siu, GK; Zhou, F.; Yu, MK; Zhang, L.; Wang, T.; Liang, Y.; Chen, Y.; Chan, HC; Yu, protein NS5A virus Hepatitis C. bekerja sama dengan fosfatidilinositol 4-kinase III untuk menginduksi fragmentasi mitokondria. Sains. Rep.2016, 6, 23464. [CrossRef]
30. Hara, Y.; Yanatori, saya.; Ikeda, M.; Kiyokage, E.; Nishina, S.; Tomiyama, Y.; Toida, K.; Kishi, F.; Kato, N.; Imamura, M.; dkk. Protein inti virus Hepatitis C menekan mitofag melalui interaksi dengan Parkin dalam konteks depolarisasi mitokondria. Saya. J.Patol. 2014, 184, 3026–3039. [Referensi Silang]
31. Gou, H.; Zhao, M.; Xu, H.; Yuan, J.; Dia, W.; Zhu, M.; Ding, H.; Yi, L.; Chen, J. CSFV menginduksi fisi mitokondria dan mitofag untuk menghambat apoptosis. Target Onco 2017, 8, 39382–39400. [Referensi Silang]
32. Penggemar, S.; Wu, K.; Zhao, M.; Yuan, J.; Bu, S.; Zhu, E.; Chen, Y.; Ding, H.; Yi, L.; Penghambatan Chen, J. LDHB menginduksi mitofag dan memfasilitasi perkembangan infeksi CSFV. Autofagi 2020, 16, 1–20. [Ref Silang] [PubMed]
33. Xie, B.; Zhao, M.; Lagu, D.; Wu, K.; Yi, L.; Li, W.; Li, X.; Wang, K.; Chen, J. Induksi autophagy dan penekanan sekresi IFN tipe I oleh CSFV. Autofagi 2020, 16, 1–23. [Referensi Silang]
34. Barbier, V.; Lang, D.; Valois, S.; Rothman, AL; Medin, virus CL Dengue menginduksi pemanjangan mitokondria melalui gangguan Drp1-yang memicu pembelahan mitokondria. Virologi 2017, 500, 149–160. [Referensi Silang]
35. Yu, CY; Liang, JJ; Li, JK; Lee, YL; Chang, BL; Su, CI; Huang, WJ; Lai, MM; Lin, YL Virus Dengue Merusak Fusi Mitokondria dengan Membelah Mitofusin. Patog PLoS. 2015, 11, e1005350. [Referensi Silang]
36. Yoo, YS; Taman, YJ; Lee, HS; Oanh, NTK; Cho, SAYA; Heo, J.; Lee, ES; Cho, H.; Taman, YY; Cho, H. Mitochondria ubiquitin ligase, MARET 5 menyelesaikan agregat protein virus hepatitis B X dalam patogenesis hati. Kematian Sel Dis. 2019, 10, 938. [Ref Silang] [PubMed]
37.Kim, SJ; Khan, M.; Quan, J.; Sampai, A.; Subramani, S.; Siddiqui, A. Virus hepatitis B mengganggu dinamika mitokondria: Menginduksi pembelahan dan mitofag untuk melemahkan apoptosis. Patog PLoS. 2013, 9, e1003722. [Ref Silang] [PubMed]
38. Chen, W.; Calvo, PA; Malide, D.; Gibbs, J.; Schubert, U.; Bacik, I.; Basta, S.; O'Neill, R.; Schickli, J.; Palese, P.; dkk. Protein mitokondria virus influenza A baru yang menginduksi kematian sel. Nat. medis. 2001, 7, 1306–1312. [Referensi Silang]
39. Gibbs, JS; Malide, D.; Hornung, F.; Bennink, JR; Yewdell, JW Protein PB1-F2 virus influenza A menargetkan membran dalam mitokondria melalui heliks amfipatik dasar yang diperkirakan mengganggu fungsi mitokondria. J.Virol. 2003, 77, 7214–7224. [Referensi Silang]
40. Yamada, H.; Chounan, R.; Higashi, Y.; Kurihara, N.; Kido, H. Urutan penargetan mitokondria dari protein PB1-F2 virus influenza A dan fungsinya dalam mitokondria. FEBS Lett. 2004, 578, 331–336. [Ref Silang] [PubMed]
41. Yoshizumi, T.; Ichinohe, T.; Sasaki, O.; Otera, H.; Kawabata, S.; Mihara, K.; Koshiba, T. Inflfluenza A protein virus PB1-F2 mentranslokasi ke mitokondria melalui saluran Tom40 dan merusak kekebalan bawaan. Nat. Komunitas. 2014, 5, 4713. [Referensi Silang]
42. Wang, R.; Zhu, Y.; Ren, C.; Yang, S.; Tian, S.; Chen, H.; Jin, M.; Zhou, H. Protein virus Inflfluenza A PB1-F2 merusak kekebalan bawaan dengan menginduksi mitofag. Autofagi 2021, 17, 496–511. [Referensi Silang]
43. Pila-Castellanos, I.; Molino, D.; McKellar, J.; Garis, L.; Da Graca, J.; Tauziet, M.; Chanteloup, L.; Michaelian, I.; Meyniel-Schicklin, L.; Codogno, P.; dkk. Perubahan morfodinamik mitokondria yang disebabkan oleh infeksi virus influenza sebagai strategi antivirus baru. Patog PLoS. 2021, 17, e1009340.
44. Cornillez-Ty, CT; Liao, L.; Yates, JR, ke-3; Kuhn, P.; Buchmeier, MJ Sindrom pernapasan akut parah protein nonstruktural virus corona 2 berinteraksi dengan kompleks protein inang yang terlibat dalam biogenesis mitokondria dan pensinyalan intraseluler. J.Virol. 2009, 83, 10314–10318. [Referensi Silang]
45. Merkwirth, C.; Langer, T. Prohibitin berfungsi dalam mitokondria: Peran penting untuk proliferasi sel dan morfogenesis krista. Biokimia. Biofisika. Undang-undang 2009, 1793, 27–32. [Referensi Silang]
46. Shi, CS; Qi, HY; Boularan, C.; Huang, NN; Abu-Asab, M.; Shelhamer, JH; Kehrl, JH Kerangka pembacaan terbuka virus corona SARS-9b menekan kekebalan bawaan dengan menargetkan mitokondria dan sinyalosom MAVS/TRAF3/TRAF6. J. Imunol. 2014, 193, 3080–3089. [Ref Silang] [PubMed]
47. Singh, M.; Bansal, V.; Feschotte, C. Peta Ekspresi RNA Sel Tunggal dari Faktor Masuknya Virus Corona Manusia. Perwakilan Sel 2020, 32, 108175. [CrossRef] [PubMed]
48. Gordon, DE; Jang, GM; Bouhaddou, M.; Xu, J.; Obernier, K.; Putih, KM; O'Meara, MJ; Rezelj, VV; Guo, JZ; Swaney, DL; dkk. Peta interaksi protein SARS-CoV-2 mengungkapkan target penggunaan kembali obat. Alam 2020, 583, 459–468. [Ref Silang] [PubMed]
49. Aceh, D.; Jiang, X.; Morgan, Dirjen; Heuser, JE; Wang, X.; Akey, CW Struktur tiga dimensi apoptosom: Implikasi pada perakitan, pengikatan procaspase-9, dan aktivasi. mol. Sel 2002, 9, 423–432. [Referensi Silang]
50. Nomura-Takigawa, Y.; Nagano-Fujii, M.; Deng, L.; Kitazawa, S.; Ishido, S.; Sada, K.; Hotta, H. Protein non-struktural 4A virus Hepatitis C terakumulasi di mitokondria dan membuat sel rentan mengalami apoptosis yang dimediasi mitokondria. J.Jenderal Virol. 2006, 87, 1935–1945. [Ref Silang] [PubMed]
51. Chiou, HL; Hsieh, YS; Hsieh, Bpk; Chen, TY HCV E2 dapat menginduksi apoptosis sel Huh-7 melalui jalur caspase terkait mitokondria. Biokimia. Biofisika. Res. Komunitas. 2006, 345, 453–458. [Referensi Silang]
52. Lee, SK; Taman, JADI; Joe, CO; Kim, YS Interaksi protein inti HCV dengan protein 14-3-3epsilon melepaskan Bax untuk mengaktifkan apoptosis. Biokimia. Biofisika. Res. Komunitas. 2007, 352, 756–762. [Ref Silang] [PubMed]
53. Zhao, P.; Han, T.; Guo, JJ; Zhu, SL; Wang, J.; Ao, F.; Jing, MZ; Dia, YL; Wu, ZH; Ya, LB HCV NS4B menginduksi apoptosis melalui jalur kematian mitokondria. Res Virus. 2012, 169, 1–7. [Ref Silang] [PubMed]
54. Javed, F.; Manzoor, S. HCV protein NS4A non-struktural dari genotipe 3a menginduksi kematian yang dimediasi mitokondria dengan mengaktifkan Bax dan kaskade caspase. Mikroba. Patog. 2018, 124, 346–355. [Ref Silang] [PubMed]
55. Takada, S.; Shirakata, Y.; Kaneniwa, N.; Koike, K. Asosiasi protein X virus hepatitis B dengan mitokondria menyebabkan agregasi mitokondria di pinggiran nuklir, yang menyebabkan kematian sel. Onkogen 1999, 18, 6965–6973. [Ref Silang] [PubMed]
56. Nasirudeen, AM; Wang, L.; Liu, DX Induksi jalur kematian sel yang bergantung pada p53-dan dimediasi mitokondria oleh infeksi virus dengue pada sel manusia dan hewan. Mikroba Menginfeksi. 2008, 10, 1124–1132. [Referensi Silang]
57. Gao, WY; Li, D.; Cai, DE; Huang, XY; Zheng, OLEH; Huang, YH; Chen, ZX; Wang, XZ Protein X virus Hepatitis B menyadarkan sel HL-7702 terhadap apoptosis yang diinduksi stres oksidatif melalui modulasi pori transisi permeabilitas mitokondria. Onkol. Rep.2017, 37, 48–56. [Ref Silang] [PubMed]
58.Kim, HJ; Kim, SY; Kim, J.; Lee, H.; Choi, M.; Kim, JK; Ahn, protein X virus Hepatitis B JK menginduksi apoptosis dengan meningkatkan translokasi Bax ke mitokondria. Kehidupan IUBMB 2008, 60, 473–480. [Referensi Silang]
59. Padhan, K.; Minakshi, R.; Towheed, MAB; Jameel, S. Protein virus corona 3a sindrom pernafasan akut yang parah mengaktifkan jalur kematian mitokondria melalui aktivasi p38 MAP kinase. J.Jenderal Virol. 2008, 89, 1960–1969. [Ref Silang] [PubMed]
60. Zhang, L.; Wei, L.; Jiang, D.; Wang, J.; Kong, X.; Fei, protein nukleokapsid R. SARS-CoV menginduksi apoptosis COS-1 yang dimediasi oleh jalur mitokondria. Artif. Pengganti Darah Sel. Tidak bergerak. Bioteknologi. 2007, 35, 237–253. [Referensi Silang]
61. Chan, CM; Bu, CW; Chan, WY; Chan, HY Protein Membran SARS-Coronavirus menginduksi apoptosis melalui modulasi jalur kelangsungan hidup Akt. Biokimia Lengkungan. Biofisika. 2007, 459, 197–207.
62. Guerrero, R.; Guerrero, C.; Acosta, O. Induksi Kematian Sel pada Garis Sel Leukemia Limfoblastik Akut Manusia Reh akibat Infeksi Rotavirus Isolat Wt1-5. Biomedis 2020, 8, 242. [CrossRef] [PubMed]
63. Martin-Latil, S.; Mousson, L.; Autret, A.; Colbère-Garapin, F.; Blondel, B. Bax diaktifkan selama apoptosis yang diinduksi rotavirus melalui jalur mitokondria. J.Virol. 2007, 81, 4457–4464. [Ref Silang] [PubMed]
64. Bhowmick, R.; Halder, UC; Chattopadhyay, S.; Nayak, MK; Chawla-Sarkar, M. Protein nonstruktural berkode Rotavirus 1 memodulasi mesin apoptosis seluler dengan menargetkan protein penekan tumor p53. J.Virol. 2013, 87, 6840–6850. [Referensi Silang]
65. Mukherjee, A.; Patra, U.; Bhowmick, R.; Chawla-Sarkar, M. Rotaviral protein nonstruktural 4 memicu fragmentasi mitokondria yang bergantung pada protein terkait dinamin 1-selama infeksi. Mikrobiol Sel. 2018, 20, e12831. [Ref Silang] [PubMed]
66. Zamarin, D.; García-Sastre, A.; Xiao, X.; Wang, R.; Palese, virus P. Inflfluenza PB1-Protein F2 menginduksi kematian sel melalui mitokondria ANT3 dan VDAC1. Patog PLoS. 2005, 1, e4. [Referensi Silang]
67. Yang, S.; Gorshkov, K.; Lee, EM; Xu, M.; Cheng, YS; Matahari, N.; Soheilian, F.; de Val, N.; Ming, G.; Lagu, H.; dkk. Apoptosis Neuronal yang Diinduksi Virus Zika melalui Peningkatan Fragmentasi Mitokondria. Depan. Mikrobiol. 2020, 11, 598203. [Referensi Silang]
68. Neumann, S.; El Maadidi, S.; Faletti, L.; Haun, F.; Labib, S.; Schejtman, A.; Maurer, U.; Borner, C. Bagaimana virus mengendalikan apoptosis yang dimediasi mitokondria? Res Virus. 2015, 209, 45–55. [Ref Silang] [PubMed]
69.Mauri, MC; Zalckvar, E.; Kimchi, A.; Kroemer, G. Makan sendiri dan membunuh diri sendiri: Persilangan antara autophagy dan apoptosis. Nat. Pendeta Mol. Biol Sel. 2007, 8, 741–752. [Referensi Silang]
70. Li, S.; Wang, J.; Zhou, A.; Khan, FA; Hu, L.; Zhang, S. Virus sindrom reproduksi dan pernapasan babi memicu pembelahan mitokondria dan mitofag untuk melemahkan apoptosis. Target Onco 2016, 7, 56002–56012.
71. Meng, G.; Xia, M.; Wang, D.; Chen, A.; Wang, Y.; Wang, H.; Yu, D.; Wei, J. Mitophagy mempromosikan replikasi virus penyakit Newcastle oncolytic dengan memblokir apoptosis intrinsik dalam sel kanker paru-paru. Target Onco 2014, 5, 6365–6374.
72. Freundt, EC; Yu, L.; Taman, E.; Lenardo, MJ; Xu, XN Penentu molekul untuk lokalisasi subseluler dari sindrom pernapasan akut parah virus corona membuka bingkai pembacaan protein 3b. J.Virol. 2009, 83, 6631–6640. [Referensi Silang]
73. Bojkova, D.; Klann, K.; Koch, B.; Krause, D.; Cisek, S.; Cinatl, J.; Münch, C. Proteomik sel inang yang terinfeksi SARS-CoV-2-mengungkapkan target terapi. Alam 2020, 583, 469–472. [Ref Silang] [PubMed]
74. Meylan, E.; Curran, J.; Hofmann, K.; Moradpour, D.; Pengikat, M.; Bartenschlager, R.; Tschopp, J. Cardif adalah protein adaptor di jalur antivirus RIG-I dan ditargetkan oleh virus hepatitis C. Alam 2005, 437, 1167–1172. [Ref Silang] [PubMed]
75. Li, XD; Matahari, L.; Seth, RB; Pineda, G.; Chen, ZJ Protease virus Hepatitis C NS3/4A membelah protein pemberi sinyal antivirus mitokondria dari mitokondria untuk menghindari kekebalan bawaan. Proses. Natal. Akademik. Sains. AS 2005, 102, 17717–17722. [Ref Silang] [PubMed]
76. Feng, H.; Sander, AL; Moreira-Soto, A.; Yamane, D.; Drexler, JF; Lemon, protease SM Hepatovirus 3ABC dan evolusi protein pensinyalan antivirus mitokondria (MAVS). J.Hepatol. 2019, 71, 25–34. [Ref Silang] [PubMed]
77. Qian, S.; Penggemar, W.; Liu, T.; Wu, M.; Zhang, H.; Cui, X.; Zhou, Y.; Hu, J.; Kita adalah.; Chen, H.; dkk. Virus Seneca Valley Menekan Produksi Interferon Tipe I Inang dengan Menargetkan Protein Adaptor MAVS, TRIF, dan TANK untuk Pembelahan. J.Virol. 2017, 91, e00823-17. [Ref Silang] [PubMed]
78. Wei, C.; Ni, C.; Lagu, T.; Liu, Y.; Yang, X.; Zheng, Z.; Jia, Y.; Yuan, Y.; Guan, K.; Xu, Y.; dkk. Protein virus hepatitis B X mengganggu kekebalan bawaan dengan menurunkan regulasi protein pemberi sinyal antivirus mitokondria. J. Imunol. 2010, 185, 1158–1168. [Referensi Silang]
79. Matahari, Y.; Zheng, H.; Yu, S.; Ding, Y.; Wu, W.; Mao, X.; Liao, Y.; Meng, C.; Ur Rehman, Z.; Tan, L.; dkk. Protein V Virus Penyakit Newcastle Mendegradasi Protein Sinyal Antiviral Mitokondria untuk Menghambat Produksi Interferon Tipe I Inang melalui E3 Ubiquitin Ligase RNF5. J.Virol. 2019, 93, e00322-19. [Referensi Silang]
80. Ding, S.; Zhu, S.; Ren, L.; Feng, N.; Lagu, Y.; Ge, X.; Li, B.; Flavell, RA; Greenberg, HB Rotavirus VP3 menargetkan MAVS untuk degradasi guna menghambat ekspresi interferon tipe III dalam sel epitel usus. Elife 2018, 7, e39494. [Ref Silang] [PubMed]