

Peran Defensin dalam Biologi Tumor Bagian 2
May 25, 2023
3. Fungsi Terkait Kekebalan Tubuh yang Relevan dalam Lingkungan Mikro Tumor
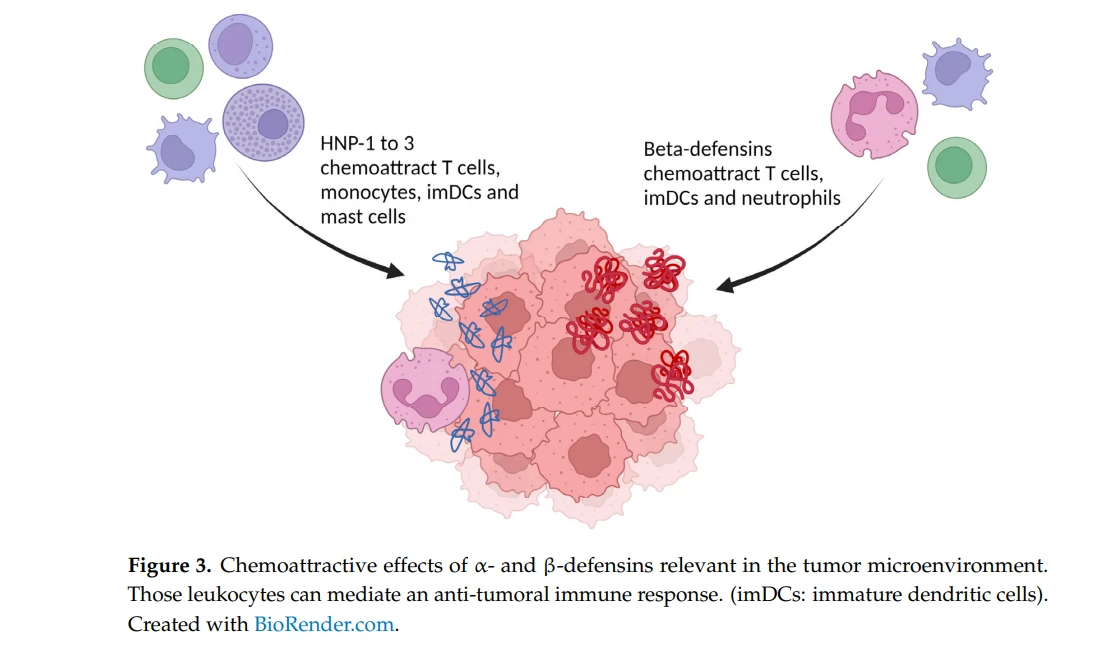
Mendapatkan wawasan tentang lingkungan mikro tumor sangat penting untuk meningkatkan pemahaman tentang interaksi sistem kekebalan kanker, dan efek terapi kekebalan sesudahnya. Untuk memulai, a-defensin memiliki sifat kemotaktik (Gambar 3). A-defensin HNP-1to 3 memiliki efek kemotaktik pada CD4 plus /CD45RA plus sel T naif dan CD8 plus, sel dendritik imatur monosit (gambar), dan sel mast (53-581. Kemoatraksi T sel dan imDC oleh HNP dapat dihambat dengan toksin pertusis, menunjukkan bahwa ini dimediasi oleh reseptor berpasangan protein Gxi (57). 3-defensin juga melakukan kemoattraksi subset sel imun (Gambar 3). hBD-1 ke 3 mampu menarik sel yang ditransfeksi dengan CC chemokine receptor 6 (CCR6), yang menunjukkan bahwa sel Th, Treg, imDC, dan neutrofil dapat direkrut oleh hBD-1 [59-611. Fusi imunoglobulin protein hBD-2 dan hBD-3 juga berinteraksi dengan CC chemokine receptor 2 (CCR2) dan dapat menarik CCR2 plus sel mononuklear darah tepi (PBMC) (621.
Menariknya CCR2 dan CCR6 adalah reseptor penting untuk perekrutan sel penyaji antigen ke jaringan yang meradang, seperti tumor (63hBD sintetik dan turunan kulit-2 chemoattracted subset memori T darah tepi manusia (CD4 plus /CD45RO plus ) sel dan CD34 plus DC turunan progenitor [59]. Selain itu, hBD-2menarik sel mast dengan cara yang dimediasi protein-fosfolipase C (PLC) G (64. Baik hBD-3dan 4 menginduksi migrasi monosit, tetapi bukan neutrofil atau eosinofil (65.661. Menariknya, untuk kedua peptida ini terjadi tanpa mobilisasi Ca'plus intraseluler.
Lingkungan mikro tumor mengacu pada lingkungan khusus dan kompleks termasuk sel tumor, sel di sekitarnya, pembuluh darah, dan matriks ekstraseluler. Sel tumor dan sel serta molekul di sekitarnya dapat berinteraksi untuk membentuk lingkungan mikro yang mendukung pertumbuhan dan penyebaran tumor.
Lingkungan mikro tumor memainkan peran penting dalam pengembangan dan pengobatan tumor. Dalam beberapa tahun terakhir, penelitian telah menunjukkan bahwa ada berbagai sel imun dalam lingkungan mikro tumor, termasuk limfosit T, limfosit B, sel pembunuh alami, dan sel dendritik, yang berpartisipasi dalam proses respon imun tumor.
Namun, sel tumor dan sel imunosupresif lainnya seperti MDSCs dan makrofag M2 dapat menyebabkan toleransi imun melalui mekanisme seperti mengeluarkan molekul imunosupresif dan menghambat fungsi limfosit, sehingga menghindari serangan sistem imun. Oleh karena itu, lingkungan mikro tumor memiliki pengaruh besar terhadap keberhasilan imunoterapi tumor.
Saat ini, imunoterapi tumor telah menjadi sarana penting untuk mengobati tumor, seperti CTLA-4, PD-1, PD-L, dan penghambat pos pemeriksaan imun lainnya banyak digunakan dalam praktik klinis. Dengan menghambat molekul imunosupresif dan faktor penghambat dalam sel, meningkatkan fungsi sel imun, dan meningkatkan respon imun anti tumor, untuk mencapai tujuan pengobatan tumor. Oleh karena itu, pemahaman mendalam tentang regulasi lingkungan mikro tumor pada sistem imun dan hubungannya dengan perkembangan tumor dapat memberikan ide dan arah baru untuk penelitian dan pengembangan imunoterapi tumor. Dari sini, kita bisa melihat pentingnya meningkatkan imunitas. Cistanche memiliki efek meningkatkan kekebalan secara signifikan. Polisakarida dalam daging dapat mengatur respon imun sistem kekebalan tubuh manusia, meningkatkan kemampuan stres sel imun, dan meningkatkan imunitas sel imun. Efek bakterisida.

Klik suplemen cistanche deserticola
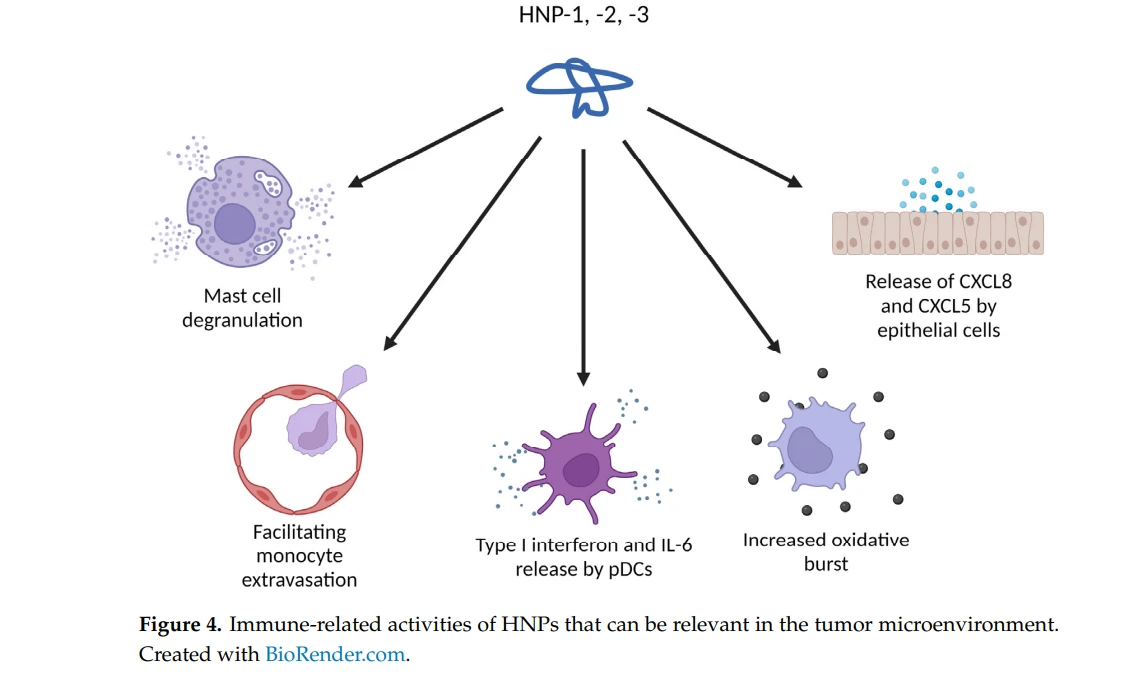
Defensin tidak hanya mampu menarik sel-sel imun, tetapi juga memberikan efek pengaktifan langsung (Gambar 4). HNP memicu degranulasi sel mast, menyebabkan pelepasan histamin, bersama dengan berbagai sitokin dan kemokin [67]. Spektrum besar mediator yang dilepaskan dari sel mast dapat merekrut DC, eosinofil, dan neutrofil sekaligus meningkatkan permeabilitas endotel [68,69]. Selain chemoattracting monosit, HNP juga meningkatkan interaksi monosit-endotel, memfasilitasi ekstravasasi dan masuknya ke dalam jaringan [70].
Ledakan oksidatif monosit juga meningkat ketika HNP hadir. Pengobatan sel epitel saluran napas dengan HNP-1–3 meningkatkan ekspresi dan pelepasan CXCL8 dan CXCL5 [71,72], dan kedua kemokin CXC ini dikenal sebagai kemoattraksi neutrofil [73,74]. Dalam plasmacytoid DCs (pDCs), HNP-1 telah dilaporkan menginduksi interferon tipe I pro-inflamasi (IFNs) dan IL-6, bersamaan dengan peningkatan aktivasi TLR9 [75,76]. IFN tipe I memiliki tugas penting dalam pengawasan imun (kanker), meningkatkan maturasi DC, DC-CD8 plus cross-priming sel T, sitotoksisitas sel T, sitotoksisitas sel natural killer (NK), peradangan makrofag, dan banyak lagi [77]. Selain itu, dalam makrofag berbasis LPS, HNP-1 dapat memicu piroptosis dan meningkatkan pelepasan IL-1 melalui aktivasi peradangan melalui reseptor P2X7 [78]. HNP-1 dilaporkan meningkatkan stres oksidatif dan gen terkait autophagy, dan dengan peningkatan endositosis ini lebih banyak antigen yang dapat diproses dan ditampilkan [79]. Melalui jalur pensinyalan reseptor P2Y6, HNP-1 menekan apoptosis neutrofil, memperpanjang umurnya [80]. Sel T Jurkat, saat terpapar HD-5 dan HNP-1, mengubah bentuk sel dan penataan ulang sitoskeleton aktin.
Kedua peptida juga meningkatkan adhesi sel ke fibronektin, dan akibatnya, sel Caco-2 yang diobati dengan HD-5 atau HNP-1 secara signifikan mempertahankan lebih banyak sel T daripada sel yang tidak diobati [81]. Kultur bersama yang terdiri dari sel non-small cell lung cancer (NSCLC) dan sel mononuklear darah perifer terbukti menghasilkan lebih banyak IFN- ketika HNP-1 ditambahkan [82]. Karena IFN- adalah mediator pengaktifan imun yang penting, peningkatannya dalam lingkungan mikro tumor dapat memainkan peran penting dalam imunitas kanker. IFN- terkait dengan migrasi sel T dan sel NK, hilangnya fungsi dan supresi sel Treg, maturasi sel NK, dan peningkatan priming dan presentasi antigen oleh sel penyaji antigen [83].
Masuknya sel imun yang meningkat, peningkatan presentasi antigen, dan lebih banyak pelepasan antigen karena sel tumor yang sekarat dapat diharapkan menghasilkan kekebalan anti tumor yang lebih kuat. Dengan demikian, pertahanan manusia baik secara langsung maupun tidak langsung meningkatkan aktivitas kekebalan di mana mereka diekspresikan atau dilepaskan, termasuk dalam lingkungan mikro tumor.
Interaksi menarik lainnya yang mungkin relevan dalam lingkungan mikro tumor adalah interaksi antara defensin dan faktor komplemen, meskipun model interaksi yang bertentangan telah diajukan. Pertama, pengikatan HNP-1 ke kompleks faktor komplemen 1 (C1) dan penghambat C1 (C1i) teraktivasi telah dilaporkan. Diperlukan inaktivasi awal C1 oleh C1i, karena C1i kemungkinan mengubah konformasi C1 untuk memungkinkan pengikatan defensin. Kompleks C1-C1i tersebut dapat mengikat dan membersihkan defensin pada konsentrasi fisiologisnya dalam plasma manusia dengan merangsang penyerapan seluler kompleks HNP-C1-C1i, sehingga berfungsi sebagai metode daur ulang defensin. Penyerapan ini dapat mencegah cedera sitotoksik yang tidak diinginkan pada jaringan di sekitarnya [84].
Namun, laporan selanjutnya menjelaskan bahwa HNP-1 secara khusus berikatan dengan tangkai C1q yang mirip kolagen, menghambat aktivitas hemolitiknya. Dalam laporan terakhir hipotesis pengambilan-daur ulang diperdebatkan, dan disarankan bahwa HNP-1 berfungsi sebagai penghambat komplemen dalam lingkungan mikro neutrofil yang melepaskan defensin [85]. Alternatifnya, ketika HNP-1 ke 3 difiksasi ke pelat, C1q dapat berikatan, memicu jalur komplemen klasik dan menyebabkan C4b berikatan dengan pelat [86]. Penelitian tambahan dalam sistem berbasis ELISA mengklaim bahwa HNP-1 dalam larutan mengikat mannose-binding lectin (MBL) dan C1q. Hasil tersebut ditafsirkan sebagai penghambatan jalur klasik dan lektin [87].
Oleh karena itu, tampaknya ada perbedaan dalam mode aksi antara HNP yang terikat permukaan atau fase cair-1. HNP yang terikat permukaan-1 dapat bertindak sebagai opsonin dengan mengikat dan mengaktifkan komplemen, sementara HNP fase cair-1 dapat diadsorpsi oleh protein serum, seperti kompleks C1-C1i, atau dapat bertindak sebagai inhibitor komplemen [84-87]. HNP-1 bukan satu-satunya defensin yang mengikat C1q, karena hBD-2 baru-baru ini dijelaskan untuk menghambat jalur komplemen klasik dengan mengikat kuat ke C1q, melindungi jaringan yang meradang terhadap aktivasi sistem komplemen yang tidak terkontrol [88 ]. Namun, hBD-2 tidak memengaruhi jalur alternatif. Interaksi antara defensin dan faktor komplemen membutuhkan penyelidikan lebih lanjut. Jika defensin akan mengaktifkan sistem komplemen, ini akan menghasilkan lebih banyak peradangan pada jaringan tempat mereka dilepaskan, menyebabkan lebih banyak kerusakan jaringan dan kemungkinan pelepasan antigen dari sel tumor. Namun, jika defensin menghambat sistem komplemen, ini mungkin merupakan cara untuk melindungi jaringan, tetapi hal ini menyiratkan bahwa sel tumor juga dapat memperoleh manfaat dari perlindungan ini.
-defensin memiliki berbagai efek pada sel (kekebalan) juga (Gambar 5). Di samping induksi migrasi, hBD-2 juga dapat memicu pelepasan histamin, mobilisasi Ca2 plus intraseluler, dan siklooksigenase-1 produksi prostaglandin D2 yang dimediasi oleh sel mast [89]. Efek ini dapat dihapuskan oleh toksin pertusis, menunjukkan bahwa hBD-2 memediasi efek ini dengan cara yang bergantung pada G1 [89]. Dalam model tumor berdasarkan makrofag yang dipanen dan sel kanker payudara dari tikus albino Swiss, pengobatan hBD-2 makrofag meningkatkan ekspresi sitokin inflamasi (IFN- , interleukin 1 (IL-1 ) dan nekrosis tumor faktor (TNF- )) dan kemokin (CXCL1, CXCL5, dan CCL5). Dalam kultur makrofag dan sel tumor yang distimulasi hBD-2-, terdeteksi proporsi sel tumor mati yang lebih tinggi dibandingkan dengan kultur bersama dengan makrofag yang tidak distimulasi [90]. Ketika hBD-3 ditambahkan ke sel otot polos jalan napas manusia, peningkatan yang signifikan dari kemokin CXCL8 proinflamasi diukur dalam supernatan kultur. Ini tidak terlihat saat hBD-1 ditambahkan. Selanjutnya, produksi CXCL8 dimediasi oleh CCR6 dan melalui kinase yang diatur sinyal ekstraseluler 1/2 protein kinase teraktivasi mitogen (ERK1 / 2 MAPK), c-Jun N-terminal kinase mitogen-activated protein kinase (JNK MAPK) dan faktor nuklir -κB (NF-κB) jalur pensinyalan.

\Selain itu, hBD-3 secara bersamaan menginduksi apoptosis sel otot polos saluran napas, yang diatur bersama oleh spesies oksigen reaktif mitokondria [91]. hBD-3 juga dilaporkan bekerja pada Toll-like receptor (TLRs) TLR1 dan TLR2 dari antigen-presenting cells, mengaktifkan jalur NF-κB dalam monosit dan DC dewasa, yang pada akhirnya meningkatkan ekspresi gen dari mediator inflamasi [92 ]. Pada sel dendritik yang diinduksi Flt-3-dan sel mononuklear darah perifer manusia, hBD-3 juga dapat berinteraksi dengan jelas dengan TLR9 untuk meningkatkan respons terhadap DNA bakteri [93]. Dalam model dengan DC mirip sel Langerhans manusia (LC-DC), telah ditunjukkan bahwa hBD-3 menginduksi maturasi, meningkatkan ekspresi CCR7, dan fungsi miring T helper tipe 1 (Th1) dalam LC-DC ini. Selain itu, hBD3-merangsang LC-DC menginduksi proliferasi dan pelepasan IFN- oleh sel T manusia yang naif. Efek serupa diamati dengan DC migrasi primer dari eksplan kulit manusia, yang memperkuat hipotesis bahwa hBD-3 berkontribusi pada integrasi imunitas bawaan dan adaptif sebagai adjuvan endogen [94].

4. Bukti Efek Penstimulasi Kekebalan pada Model (Hewan).
Beberapa penelitian membuktikan bahwa HNP adalah imunoadjuvan yang kuat dalam model murine. Pengiriman defensin ini secara intranasal bersama-sama dengan ovalbumin (OVA) meningkatkan respons imunoglobulin G (IgG) sistemik melalui sitokin tipe CD4 plus Th1- dan Th2-dan promosi interaksi sel B dan T [95]. Dalam penelitian lain, ko-injeksi HNP intraperitoneal pada tikus meningkatkan regulasi produksi Ig spesifik antigen, mengkonfirmasikan bahwa defensin yang dilepaskan oleh neutrofil dapat berkontribusi pada respon imun bawaan dan adaptif [96]. Pada model tikus kanker usus besar CT26 dan kanker payudara 4T1, ekspresi intratumoral dari bentuk HNP yang dapat disekresikan-1 menyebabkan efek kemotaktik dan pengaktifan pada imDC, dipasangkan dengan penghambatan pertumbuhan tumor yang signifikan, peningkatan infiltrasi CTL, dan peningkatan imun humoral spesifik tanggapan [97]. Administrasi HNP-2 pada keratinosit manusia papillomavirus-positif (HPV plus) yang ditransplantasikan yang membentuk lesi neoplastik pada tikus mengembalikan perubahan kekebalan yang sering terlihat yang diamati dalam perkembangan kanker dengan merekrut DC manusia yang disuntikkan secara intravena ke tumor [98].
Selain itu, imunisasi DNA dengan konstruksi fusi yang mengandung hBD-2 dapat menimbulkan respons imun humoral yang kuat terhadap antigen limfoma non-imunogenik pada tikus, menghasilkan kekebalan anti-tumor yang protektif dan terapeutik [62]. Ketika HNP atau hBD diberikan bersama secara intranasal dengan OVA pada tikus C57BL/6, HNP-1 dan hBD-2 menginduksi IgG spesifik OVA yang jauh lebih tinggi, IgM yang lebih rendah, dan IFN- yang lebih rendah, sementara HNP{{11 }} menginduksi IgG rendah dan IgM lebih tinggi, dan hBD-1 menginduksi IgG lebih tinggi, IgM lebih tinggi, dan IL lebih tinggi-10 [99]. Pemberian hBD-2 subkutan pada tikus menunjukkan tolerabilitas yang baik dan hBD-2 dengan cepat memasuki aliran darah, memungkinkan efek sistemik jika terapi melalui metode ini pernah menjadi pilihan [100].
Efek defensin yang mengaktifkan kekebalan atau anti tumor ini tidak hanya diamati pada tikus. Di Drosophila, misalnya, ketika gen defensin (def) dihapus dari kedua alel oleh CRISPR/Cas9, pertumbuhan tumor anjing tidak lagi tertahan dan lebih sedikit kematian sel tumor terlihat. Defensin lalat buah ini biasanya diekspresikan dalam jaringan kekebalan tubuh, dan tampaknya membedakan antara sel sehat dan sel tumor dengan ekspresi fosfatidilserin yang menyimpang dalam sel tumor, membenarkan teori yang disebutkan sebelumnya. Homolog faktor TNF Eiger diperlukan untuk paparan fosfatidilserin ini pada sel tumor, memungkinkan pengenalan oleh defensin [101]. Yang dkk. berspekulasi bahwa defensin mungkin berikatan dengan membran mikroba antigenik setelah membunuh mikroba, membentuk kompleks defensin-antigen. Kompleks seperti ini kemudian dapat diinternalisasi oleh imDC, mungkin dengan cara yang dimediasi reseptor defensin, meningkatkan presentasi antigen sel-sel ini. Mempertimbangkan hal ini, kompleks semacam itu juga dapat dibuat dengan antigen lain (terkait tumor), dengan efek positif pada keseluruhan imunogenisitas tumor [102]. Selain itu, -defensin juga telah dilaporkan menghambat angiogenesis, misalnya pada neovaskularisasi retina patologis dan uji angiogenesis yang berbeda seperti uji pembentukan kecambah dan uji membran chorioallantois ayam (CAM) [103,104].
5. Ekspresi Defensin pada Kanker
Ketika melihat secara lebih global pada ekspresi defensin pada kanker, tampaknya terdapat perbedaan ekspresi antara jaringan normal dan jaringan tumor untuk - dan -defensin. Analisis integratif dari profil nomor salinan lebih dari 10 000 pasien pada 31 jenis kanker dari Cancer Genome Atlas mengonfirmasi hubungan antara aktivitas interferon (IFN), gen defensin, dan resistensi imunoterapi. Gen IFN tipe-I dan - dan -defensin dihapus secara homozigot di hampir 20 jenis kanker dengan frekuensi tinggi, dan penghapusan IFN yang homozigot dikaitkan dengan waktu kelangsungan hidup keseluruhan dan bebas penyakit yang dipersingkat secara signifikan pada jenis kanker tertentu. Terutama rasio penghapusan homozigot IFNs (HDI) dan defensin (HDD) yang menarik, karena pada jenis kanker yang paling umum, rasio HDI/HDD secara signifikan lebih tinggi dibandingkan dengan jenis kanker langka, menunjukkan bahwa HDI/HDD adalah molekuler. mekanisme yang terlibat dalam karsinogenesis kanker ini. Rasio HDI/HDD ini adalah yang tertinggi pada glioma tingkat rendah otak, glioblastoma, adenokarsinoma pankreas, dan mesothelioma.
Sebaliknya, kanker dengan rasio HDD/HDI tinggi adalah adenokarsinoma prostat, adenokarsinoma kolon, adenokarsinoma rektum, karsinoma hepatoseluler hati, dan karsinosarcoma urin. Di antara kedua kelompok ini adalah kanker dengan jumlah HDI dan HDD yang lebih sama, dan ini termasuk karsinoma urothelial kandung kemih, adenokarsinoma paru, karsinoma sel skuamosa paru, karsinoma invasif payudara, kistadenokarsinoma serosa ovarium, karsinoma sel skuamosa kepala dan leher, melanoma kulit kulit. , karsinoma esofagus, sarkoma dan adenokarsinoma lambung [105]. Analisis ekspresi gen menunjukkan tanda-tanda aktivasi jalur onkogenik dan siklus sel dan represi gen yang terlibat dalam jalur respons imun ketika ada penghapusan gen IFN dan defensin homozigot, menunjukkan efek penekan tumor tertentu dari defensin yang dihilangkan ketika penghapusan terjadi. [105]. Efek stimulasi kekebalan ini bervariasi antara keluarga defensin ( dan ), tetapi perbedaan juga terlihat di dalam keluarga.
Karena HNP-1 hingga 3 meningkat pada berbagai jenis tumor (kanker paru-paru, sel skuamosa oral, banyak epidermoid, kandung kemih, kolorektal ginjal, kanker payudara, kepala, dan leher) [106], menarik untuk diurai fungsi imunologi mereka di lingkungan ini. Dalam biopsi tumor pretreatment pasien kanker paru-paru non-sel kecil, pencitraan spektrometri massa mengungkapkan bahwa HNP-1 hingga 3 dapat berperan sebagai biomarker prospektif tambahan untuk respons imunoterapi anti-PD-(L)1, sebagai tambahan dari biomarker ini memprediksi respon terapi lebih baik daripada ekspresi PD-L1 saja [82].
Namun, -defensin lain juga relevan pada kanker. Tingkat ekspresi -defensin 5 (DEFA5) diturunkan secara drastis pada kanker lambung manusia. Saat mengekspresikan DEFA5 secara berlebihan lagi di garis sel kanker lambung, proliferasi sel ini sangat berkurang dan kemampuan untuk membentuk koloni. Penekanan pertumbuhan tumor ini dapat dikonfirmasi dalam model tumor in vivo dengan tikus telanjang. Secara mekanis, DEFA5 secara langsung mengikat BMI1, mengurangi pengikatannya pada lokus CDKN2a, selanjutnya meningkatkan ekspresi p16 dan p19, dua inhibitor kinase yang bergantung pada siklin [107]. Berbeda dengan ini, ekspresi DEFA5 dan DEFA6 meningkat secara signifikan pada kanker kolorektal dibandingkan dengan jaringan sehat. Selain itu, DEFA5 dapat dikaitkan dengan prognosis kanker kolorektal yang lebih baik, sedangkan DEFA6 dapat dikaitkan dengan prognosis yang lebih buruk. Ekspresi DEFA6 juga tampaknya meningkat secara signifikan pada adenoma dibandingkan dengan mukosa normal dan sedikit meningkat pada karsinoma. Diperlukan lebih banyak data, tetapi DEFA5 dan DEFA6 tampaknya memiliki tingkat spesifisitas dan sensitivitas yang menjanjikan untuk memprediksi prognosis kanker kolorektal [108].
Untuk -defensin, secara umum, hBD-1 tampaknya diturunkan regulasinya di sebagian besar jaringan tumor, menunjukkan bahwa ia memiliki beberapa bentuk aktivitas anti-tumor. Kumpulan data dari kelompok pasien menunjukkan bahwa transkripsi hBD-1 menurun pada kanker kolorektal [109]. Dalam garis sel kanker usus besar manusia dan organoid sel primer kolon manusia normal, menghambat reseptor faktor pertumbuhan epidermal (EGFR) meningkatkan ekspresi hBD-1, sambil mengaktifkan EGFR melalui MAPK kinase 1/2 (MEKK1/2)- Jalur ERK1/2 memiliki efek sebaliknya [109]. Demikian pula, ketika kumpulan data kanker hati diselidiki untuk ekspresi -defensin, hBD-1 diturunkan regulasinya secara signifikan, dengan E-cadherin sebagai gen berkorelasi positif teratas dan substrat tirosin kinase yang diatur oleh faktor pertumbuhan hepatosit sebagai gen berkorelasi negatif teratas, menunjukkan peran protektif peptida ini dalam perkembangan kanker hati [110]. kadar hBD-1 juga lebih rendah dibandingkan dengan jaringan sehat pada karsinoma sel basal, karsinoma sel skuamosa, karsinoma sel ginjal (meningkatkan apoptosis), kanker usus besar, dan karsinoma prostat [111–117].
Hal ini menimbulkan spekulasi bahwa hBD-1 adalah gen supresor tumor, dan induksi ekspresinya dalam garis sel kanker prostat memang menghasilkan penurunan pertumbuhan sel [118]. Pada karsinoma sel skuamosa oral, hBD-1 dapat menekan migrasi dan invasi tumor dan mungkin bertindak sebagai biomarker prognostik potensial [119]. Penurunan regulasi ekspresi gen DEFB1 pada karsinoma sel skuamosa oral berkorelasi dengan prognosis yang lebih buruk, dan menurut analisis pengayaan kumpulan gen, aktivitas antitumornya dikaitkan dengan jalur yang memengaruhi remodeling matriks ekstraseluler, reseptor tirosin kinase (RTK)/fosfoinositida {{6} }kinase (PI3K)/Akt/target mekanistik pensinyalan rapamycin (mTOR), keratinisasi, dan pensinyalan sitokin [120]. Menariknya, sifat anti-tumor seperti itu tidak dapat ditunjuk untuk hBD-3, karena ekspresinya diregulasi dalam karsinoma serviks dan hBD-3 bahkan tampaknya mendorong pertumbuhan sel kanker serviks melalui pensinyalan NF-κB [121]. hBD-3 juga dikaitkan dengan pengembangan lingkungan pemicu tumor pada kanker kepala dan leher terkait papilomavirus manusia [122].

Untuk hBD{{0}}, kapasitasnya untuk memprediksi keberadaan adenokarsinoma prostat pada kelenjar prostat yang normal secara morfologis diselidiki, dalam upaya untuk menurunkan kasus biopsi negatif palsu. Pada 95,6 persen dan 90,0 persen kasus adenokarsinoma prostat dengan, masing-masing Pola Gleason 3 dan 4, diamati hilangnya ekspresi hBD-1. Dalam kelompok negatif palsu, hilangnya ekspresi hBD-1 dalam sel basal adalah biomarker yang baik untuk mengidentifikasi pasien berisiko tinggi dengan biopsi yang awalnya negatif [123]. Ekspresi hBD-1 ke 4 juga diubah oleh agen sitostatik. Secara umum, ketika ditambahkan ke lini sel kanker yang berbeda, agen sitostatik yang diuji secara signifikan menekan ekspresinya, kecuali vincristine yang menyebabkan peningkatan signifikan hBD-1 dan hBD-4 dalam lini sel kanker payudara (MCF7) dan doxorubicin yang secara signifikan meningkatkan regulasi ekspresi hBD-3 dan hBD-4 dalam garis sel karsinoma epidermoid (A431) [124].
Akhirnya, ketika preparat dari kedua /-defensin diberikan kepada pasien kanker mulut dan orofaringeal yang menerima terapi radiasi atau kemoterapi, defensin memiliki efek tambahan, dengan efek yang lebih nyata pada radioterapi. Para peneliti mengklaim bahwa penggunaan defensin sebagai agen kekebalan memungkinkan mereka mencapai profil tolerabilitas yang lebih baik dari terapi anti tumor standar ini [125]. Mengenai imunoterapi, latihan fisik diketahui bermanfaat untuk kesehatan umum dan sistem kekebalan tubuh Anda, dan bukti awal mendukung hipotesis bahwa olahraga akan meningkatkan kebugaran imunologis pasien yang menerima rejimen imunoterapi [126]. Mempertimbangkan hal ini, menarik untuk dicatat bahwa pada atlet bola basket elit, HNP-1 dan HBD-1 meningkat secara progresif dengan intensifikasi latihan, sementara peningkatan latihan ini tidak mengubah level sel imun [127 ].
6. Kesimpulan
Kesimpulannya, defensin lebih dari sekedar peptida antimikroba. Mereka dapat memiliki peran penting dalam lingkungan mikro tumor dengan dua cara berbeda. Pertama, mereka memiliki efek sitotoksik langsung pada sel tumor, yang disertai dengan pelepasan antigen tumor. Kedua, peran mereka sebagai mediator kekebalan tidak boleh diabaikan, karena mereka kemoattraksi beberapa jenis sel kekebalan, menyebabkan pelepasan kemokin dan sitokin dalam lingkungan mikro tumor, dan mungkin memediasi berbagai proses kekebalan anti-tumor melalui produksi IFN-, membentuk jembatan. antara imunitas bawaan dan imunitas adaptif.
Kontribusi Penulis:
Menulis—persiapan draf asli, ulasan, dan penyuntingan, LA; konseptualisasi dan pengawasan, SS dan PP Semua penulis telah membaca dan menyetujui versi naskah yang diterbitkan.
Pendanaan:
Penelitian ini didukung oleh pendanaan C1 (Hibah C16/17/010) dari KU Leuven. Selain itu, LA didukung oleh SB Ph.D. persekutuan FWO-Vlaanderen (Grant nr. 1S40823N).
Pernyataan Dewan Peninjau Kelembagaan:
Tidak dapat diterima.
Pernyataan Persetujuan yang Diinformasikan:
Tidak dapat diterima.
Pernyataan Ketersediaan Data:
Tidak ada data baru yang dibuat atau dianalisis dalam penelitian ini. Berbagi data tidak berlaku untuk artikel ini.
Konflik kepentingan:
Para penulis menyatakan tidak ada konflik kepentingan.
Referensi
1. Pazgier, M.; Li, X.; Lu, W.; Lubkowski, J. Pertahanan Manusia: Sintesis dan Sifat Struktural. Kur. Farmasi. Des. 2007, 13, 3096–3118. [Referensi Silang] [PubMed]
2. Selsted, AKU; Ouellette, AJ Mammalian defensins dalam respon imun antimikroba. Nat. Imunol. 2005, 6, 551–557. [Referensi Silang] [PubMed]
3. Selsted, AKU; Szklarek, D.; Lehrer, RI Pemurnian dan Aktivitas Antibakteri Peptida Antimikroba Granulosit Kelinci. Menulari. Imun. 1984, 45, 150–154. [Referensi Silang]
4. Ganz, T.; Selsted, AKU; Szklarek, D.; Hartwig, SS; Daher, K.; Bainton, DF; Lehrer, Pertahanan RI. Antibiotik peptida alami dari neutrofil manusia. J.Clin. Menginvestasikan. 1985, 76, 1427–1435. [Referensi Silang] [PubMed]
5. Wilde, CG; Griffith, JE; Marra, MN; Snable, JL; Scott, RW Pemurnian dan Karakterisasi Peptida Neutrofil Manusia 4, Anggota Novel Keluarga Defensin. J.Biol. kimia 1989, 264, 11200–11203. [Referensi Silang]
6. Harwig, S.; Taman, A.; Lehrer, R. Karakterisasi prekursor defensin pada neutrofil manusia dewasa. Darah 1992, 79, 1532–1537. [Referensi Silang]
7. Eisenhauer, PB; Lehrer, neutrofil tikus RI kekurangan defensin. Menulari. Imun. 1992, 60, 3446–3447. [Referensi Silang] [PubMed]
8. Selsted, AKU; Miller, SI; Henchen, AH; Ouellette, AJ Enteric defensins: Komponen peptida antibiotik pertahanan inang usus. J. Sel Biol. 1992, 118, 929–936. [Referensi Silang]
9. Huttner, KM; Selsted, AKU; Ouellette, Struktur AJ dan Keanekaragaman Keluarga Gen Murine Cryptidin. Genomics 1994, 19, 448–453. [Referensi Silang]
10. Mastroianni, JR; Ouellette, AJ -Defensin dalam Enteric Innate Immunity. J.Biol. kimia 2009, 284, 27848–27856. [Referensi Silang]
11. Jones, DE; Bevins, sel CL Paneth dari usus kecil manusia mengekspresikan gen peptida antimikroba. J.Biol. kimia 1992, 267, 23216–23225. [Referensi Silang]
12. Jones, DE; Bevins, mRNA CL Defensin-6 dalam sel Paneth manusia: Implikasi untuk peptida antimikroba dalam pertahanan inang usus manusia. FEB Lett. 1993, 315, 187–192. [Referensi Silang] [PubMed]
13. Lehrer, RI; Lu, W. -Defensin dalam kekebalan bawaan manusia. Imunol. Wahyu 2012, 245, 84–112. [Referensi Silang]
14. Liu, L.; Zhao, C.; Heng, HQ; Ganz, T. Manusia -Defensin-1 dan -Defensin Dikodekan oleh Gen yang Berdekatan: Dua Keluarga Peptida dengan Topologi Disulfida yang Berbeda Berbagi Keturunan yang Sama. Genomics 1997, 43, 316–320. [Referensi Silang] [PubMed]
15. Schutte, BC; Mitros, JP; Bartlett, JA; Walters, JD; Jia, HP; Wales, MJ; Casavant, TL; McCray, PB, Jr. Penemuan lima kelompok gen beta-defensin yang dilestarikan menggunakan strategi pencarian komputasi. Proses Natl. Acad. Sains. AS 2002, 99, 2129–2133. [Referensi Silang]
16. Pazgier, M.; Hoover, DM; Yang, D.; Lu, W.; Lubkowski, J. Manusia-defensin. Sel Mol. Sains Kehidupan. 2006, 63, 1294–1313. [Referensi Silang] [PubMed]
17. Intan, G.; Zasloff, M.; Eck, H.; Brasseur, M.; Maloy, WL; Bevins, CL Trakea antimikroba peptida, peptida kaya sistein dari mukosa trakea mamalia: Isolasi peptida dan kloning cDNA. Proses Natl. Acad. Sains. 1991, 88, 3952–3956. [Referensi Silang]
For more information:1950477648nn@gmail.com


