Quercetin Meningkatkan Status Redoks Miokard pada Tikus Dengan Diabetes Tipe 2
Mar 26, 2022
Untuk informasi lebih lanjut hubungi{0}}
Objektif. Data yang muncul menunjukkan bahwastres oksidatifberhubungan erat dengan patogenesis penyakit kardiovaskuler pada diabetes melitus tipe 2 (DMT2). Penelitian ini bertujuan untuk menilai efek dari flavonoid yang paling melimpah dalam makanan manusiakuersetin(Q) pada status redoks miokard pada tikus dengan DMT2.
Metode. DMT2 diinduksi pada tikus Wistar jantan dengan diet tinggi kalori (selama 14 minggu) dan dua suntikan streptozotocin (25 mg/kg bb) diterapkan dalam empat minggu diet, seminggu sekali selama dua minggu. Q diberikan secara intragastrik dengan gavage dalam dosis 10 atau 50 mg/kg berat badan selama 8 minggu mulai dari hari ke-8 setelah injeksi streptozotocin terakhir. Tikus kontrol menerima buffer sitrat dan tujuh hari setelah injeksi STZ terakhir, kadar glukosa basal diukur pada semua hewan.
Hasil. Pemberian Q meningkatkan sensitivitas insulin pada tikus diabetes dengan efek yang lebih nyata pada dosis 50 mg/kg bb Q juga menurunkan oksidasi radikal bebas di mitokondria jantung hewan diabetes, sehingga membatasi pembentukan produk protein oksidasi lanjutan dalam dosis- cara tergantung dan menormalkan aktivitas enzim antioksidan (superoksida dismutase, glutathione peroksidase, glutathione reduktase) di mitokondria jantung terlepas dari dosis yang digunakan. Selain itu, Q dalam kedua dosis mencegah perkembangan stres oksidatif pada tikus T2DMkardiomiositdengan mengurangi aktivitas NADPH oksidase dan xanthine oksidase.
Kesimpulan. Temuan menunjukkan bahwa Q dalam kedua dosis 10 mg/kg dan 50 mg/kg dapat melindungi dari perkembangan stres oksidatif pada kardiomiosit pada tikus diabetes. Data saat ini menunjukkan bahwa penggunaan Q dapat berkontribusi pada perbaikan risiko kardiovaskular pada pasien dengan DMT2.
Kata kunci: quercetin, diabetes mellitus tipe 2, kardiomiosit, stres oksidatif

Diabetesmellitus (DM) adalah salah satu kedaruratan kesehatan global yang tumbuh paling cepat di abad 21*. Menurut Federasi Diabetes Internasional, 463 juta orang di seluruh dunia menderita diabetes pada 2019, dan jumlah ini diasumsikan mencapai 700 juta pada tahun 2045. DM dikaitkan dengan berbagai kondisi kardiovaskular yang secara kolektif meningkatkan risiko kematian kardiovaskular sebesar 132 persen pada penderita diabetes dibandingkan dengan individu tanpa DM (IDF Diabetes Atlas 2019).
DM diketahui menyebabkan perubahan spesifik pada struktur dan fungsi miokardium terlepas dari penyakit arteri koroner atau hipertensi yang biasa didefinisikan sebagai kardiomiopati diabetik (DCM). DCM dimanifestasikan oleh disfungsi diastolik diikuti oleh kelainan fungsi sistolik, yang dapat menyebabkan gagal jantung (Liu dkk.2014). Diketahui juga bahwa gangguan metabolisme pada kardiomiosit di DCM (hipertrofi, inflamasi, apoptosis, fibrosis) terkait erat dengan perkembangan stres oksidatif (Kayama et al.2015).
Spesies oksigen reaktif (ROS), termasuk anion superoksida, radikal hidroksil, dan hidrogen peroksida adalah molekul pensinyalan penting dengan peran penting dalam fisiologi dan penyakit jantung. Kedua sumber sitosol, termasuk NADPH oksidase (NOX), xanthine oxidase (XO), siklooksigenase, dan enzim sitokrom P450, dan sumber mitokondria, seperti rantai pernapasan dan monoamine oksidase, berkontribusi pada kumpulan ROS intraseluler. Dalam kondisi fisiologis, pensinyalan ROS jantung mengatur perkembangan jantung dan pematangan kardio-miosit, penanganan kalsium jantung, kopling eksitasi-kontraksi, dan tonus vaskular. Namun, kondisi patologis produksi ROS yang tidak diatur menyebabkan peningkatan kadar ROS, yang dapat mengakibatkanstres oksidatifmelalui kerusakan oksidatif DNA, protein, dan lipid, serta disfungsi mitokondria dan kematian sel (Peoples et al. 2019). Memang, produksi ROS yang tidak diatur dan stres oksidatif telah terlibat dalam banyak penyakit jantung, termasuk kardiomiopati diabetik (Ritchie dan Abel 2020).
Produksi ROS yang berlebihan oleh mitokondria dapat secara langsung mempengaruhi fungsi kontraktil miokardium melalui modifikasi oksidatif enzim dan saluran ion yang berpartisipasi dalam regulasi siklus eksitasi-relaksasi (Brown dan Griendling 2015; Bai et al. 2016). ROS merangsang proliferasi kardiomiosit dan mengaktifkan fibroblas dan matriks metaloproteinase, yang menyebabkan hipertrofi dan remodeling miokardium yang mengakibatkan pembentukan gagal jantung (DOria et al.2020). Oleh karena itu, disarankan bahwa tindakan farmakologis yang ditujukan untuk mengurangi produksi berlebih ROS mungkin efektif untuk pencegahan dan koreksi komplikasi kardiovaskular diabetik.
Saat ini, telah ditetapkan bahwa asupan diet polifenol alami, khususnya flavonoid, dapat mengurangi risiko diabetes dan penyakit kardiovaskular dan mekanisme perlindungan mungkin tidak hanya bergantung pada efek antioksidan dan anti-inflamasi dari flavonoid, tetapi juga termasuk mereka. sifat yang mempengaruhi glikemia, pemanfaatan glukosa, dan sekresi insulin (Ghorbaniet al.2019; Lutz et al.2019).
kuersetin(Q;3,5,7,34-pentahidroksi flavon) adalah flavonoid yang paling melimpah dalam makanan manusia. Ada berbagai fungsi biologis Q termasuk efek pada jalur yang terlibat dalam peradangan, diabetes, dan penyakit kardiovaskular (Zahedi et al. 2013). Beberapa penelitian telah menunjukkan mekanisme efek antidiabetes dari Q, termasuk:
penurunan peroksidasi lipid, peningkatan aktivitas enzim antioksidan (misalnya, superoksida dismutase, SOD; glutathione peroksidase, GPX; katalase, CAT), penurunan penyerapan glukosa di usus karena inaktivasi transporter GLUT2 dan lainnya (Shi et al.2019; Salehi dkk.2020). Efek kardioprotektif Q pada diferensiasikardiomiosit, karena inaktivasi mitogen-activated protein kinase dan jalur pensinyalan protein kinase B, juga telah ditunjukkan (Daubney et al.2015).
Penelitian masa depan yang ditujukan untuk memahami mekanisme tindakan kardioprotektif pada diabetes dapat berkontribusi pada peningkatan perawatan diabetes.
Tujuan dari penelitian ini adalah untuk mempelajari pengaruh kuersetin pada status redoks kardiomiosit pada tikus dengan diabetes mellitus tipe2 (DMT2).
Bahan dan metode
Bahan kimia. Semua bahan kimia yang digunakan adalah kualitas kelas reagen analitis dan dibeli dari Sigma Chemical Co.(St.Louis, MO, USA). Quercetin disediakan oleh PJSCSICBorshchahivskiy Chemical-Pharmaceutical Plant (Kyiv, Ukraina), dan mengandung minimal 96,5 persen zat aktif.
Desain eksperimental. Penelitian ini telah disetujui oleh komite bioetika dari "V. Dani-levsky Institute for Endocrine Pathology Problems of National Academy of Medical Sciences of Ukraine" (Kharkiv, Ukraina) dan dilakukan sesuai dengan Konvensi Eropa untuk Perlindungan Hewan Vertebrata Digunakan untuk Eksperimental dan Tujuan Ilmiah Lainnya (Strasbourg, 1986).
Percobaan dilakukan pada 32 ekor tikus Wistar jantan (12-minggu, berat badan 200-230 g, bw), yang ditempatkan di kandang Plexiglas (3 ekor per kandang) pada suhu 22±1 derajat C dalam 12-jam siklus terang/gelap yang konstan.
Model hewan DMT2 yang diinduksi oleh diet tinggi kalori yang dikombinasikan dengan beberapa suntikan streptozotocin (STZ) dosis rendah digunakan. Model tersebut memberikan pengembangan dua fitur utama DMT2: diet tinggi kalori memicu resistensi insulin dan STZ dosis rendah menginduksi gangguan ringan sekresi insulin. Dengan demikian, model tersebut meniru riwayat alami dari peristiwa penyakit (dari resistensi insulin hingga disfungsi sel) serta karakteristik metabolisme DMT2 manusia (Skovso 2014).
Tikus utuh kontrol (n=8) diberi makan diet standar selama 14 minggu. Tikus percobaan (n=24) diberi makan diet tinggi kalori yang mengandung 15 persen lemak babi, 25 persen sukrosa, 1 persen garam empedu, dan 59 persen pakan standar selama 14 minggu. Hewan-hewan memiliki akses gratis ke air. Dalam empat minggu, tikus percobaan secara intraperitoneal (.p.disuntik dengan STZ (25 mg/kg bb) sekali seminggu selama dua minggu (Lin et al. 2010).Tikus kontrol menerima buffer sitrat mengikuti skema yang sama.Tujuh hari setelah injeksi STZ terakhir, glukosa basal diukur pada semua hewan, dan tikus percobaan dibagi menjadi tiga kelompok: tikus diabetes yang tidak diobati (Diabetes, n=8) dan tikus diabetes yang diobati dengan Qin dosis 10 mg/kg bb (Diabetes ditambah Q10,n=8)atau 50 mg/kg bb (Diabetes plus Q50, n=8)sekali per hari secara intragastrik dengan gavage selama 8 minggu setelah induksi diabetes Tikus diabetes yang tidak diobati menerima kendaraan bersama dengan skema yang sama .
Hewan dikorbankan sesuai dengan protokol komite etik.
Pengukuran homeostasis glukosa. Tes toleransi insulin intraperitoneal (IPITT) dilakukan pada tikus puasa semalam. Konsentrasi glukosa darah awalnya diukur pada kondisi basal ({{0}} menit), kemudian hewan diberi ani. p. injeksi insulin 0,25 U/kg bb (Actrapid, Novo Nordisk, Agsvaerd, Denmark) diikuti dengan injeksi ip glukosa (2 g/kg) (Bowe et al.2014). Selanjutnya, kadar glukosa darah ekor diukur menggunakan alat analisa glukosa Eksan-G (Analita Firm Joint Stock Company Ltd., Vilnius, Republik Lithuania) pada 15, 30,60,90, dan 120 menit setelah beban glukosa.
Isolasi mitokondria. Mitokondria diisolasi dengan prosedur konvensional. Jantung tikus yang baru dipotong dihomogenisasi dalam media yang mengandung {{0}}.18 M KCl, 10 mM EDTA, 0,5 persen bovine serum albumin (BSA), 10mM HEPES, pH7.4. Homogenat dibersihkan dari kotoran dan inti dengan dua kali sentrifugasi pada 500 g (10 menit pada 4 derajat). Mitokondria dipelet dari supernatan pada 10000g (15 menit pada 4 derajat) dan disuspensikan kembali dalam buffer isolasi.
Fraksi supernatan pasca mitokondria digunakan untuk penentuan aktivitas XO dan NOX. Untuk menghilangkan EDTA dan albumin, pelet mitokondria disentrifugasi pada 10000g (15 menit,4 derajat) dan disuspensikan kembali dalam buffer pencuci yang mengandung 0,18 M KCl dan 10mM HEPES(pH7.4) dua kali (DiLisa et al.1994) .
Spektrofotometri. Semua spektrofotometri dilakukan menggunakan spektrofotometer sinar ganda UV-VIS Shimadzu UV-1800 (Shimadzu Corporation, Kyoto, Jepang).
Pengukuran produk protein oksidasi lanjutan (AOPP). Penentuan kadar AOPP dilakukan dengan metode modifikasi dari Witko-Sarsat dkk (Sagor et al.2015). Mitokondria jantung (0.2 mg protein) diperlakukan dengan 0,1 persen Triton-X100 dan diencerkan dalam larutan PBS(pH7.4).KI (1,16 M) ditambahkan ke media uji, diikuti 2 menit kemudian dengan penambahan asam asetat glasial. Absorbansi campuran reaksi segera dibaca pada 340 nm terhadap blanko. Konsentrasi AOPP dinyatakan sebagai nmol-ekuivalen kloramin T/mg protein.
Pengukuran aktivitas enzim. Aktivitas NOX diperiksa sebagai produksi O2 yang bergantung pada NADPH oleh fraksi supernatan pasca mitokondria menggunakan reduksi ferricytochrome c yang dapat dihambat SOD (Li et al. 2002). Fraksi postmitokondria dari homogenat jantung (1 mg protein) dilengkapi dengan 10mM Tris-HCl(pH7.8),500μMcytochrome c,100μM NADPH, diinkubasi pada 37 derajat C selama 30 menit dengan atau tanpa 200 U/ml SOD. Reduksi sitokrom diukur dengan membaca absorbansi pada 550 nm (8=21 mM-1 cm-).
Aktivitas XO diuji dalam larutan PBS (pH7.4) setimbang udara yang mengandung fraksi postmitokondria dari homogenat jantung (1 mg protein) pada 37 derajat setelah penambahan xantin (konsentrasi akhir 360μM)dengan pengukuran produksi asam urat dari perubahan dalam absorbansi pada 295nm (e=9500M-'cm-') (Lee et al.2014).
Aktivitas Mn-SOD dalam suspensi mitokondria dideteksi dengan penghambatan reduksi nitroblue tetrazolium (NBT) yang disebabkan oleh sistem xanthine-XO sebagai generator O2 dan absorbansi akhirnya ditentukan pada 560 nm. Campuran reaksi mengandung mitokondria jantung (0.02 mg protein),0.05M buffer karbonat (pH10.2),0.1 mM EDTA,0.1 mM xanthine,25μM NBT,1 mU/ml XO. Hasilnya dinyatakan dalam unit arbitrer (au) aktivitas SOD per mg protein. Salah satunya adalah jumlah enzim yang menyebabkan 50 persen penghambatan laju pengurangan NBT (Wang et al. 2018).
Aktivitas glutathione reduktase (GR) diukur dengan melacak oksidasi NADPH pada 340 nm dalam reaksi reduksi glutathione teroksidasi (GSSG). Untuk melakukan reaksi, mitokondria dari jantung (0.1 mg protein) diinkubasi selama 10 menit pada suhu 37 derajat dalam buffer uji yang mengandung 20 mM Tris-HCl pH7.4),0.25 mM EDTA,10 M FAD,3 mM GSSG dan 0,1 mM NADPH (Raza dan John 2004).
Pendugaan aktivitas GPX dilakukan berdasarkan kemampuan enzim dalam mengkatalisis degradasi tertbutil hidroperoksida menggunakan substrat glutation (GSH) tereduksi. Campuran reaksi (pH7.0) mengandung mitokondria jantung (0.1 mg protein), 0.56mM NADPH,1.0 U/ml GR,7,5 mM natrium azida,5 mM GSH,5 mM EDTA dan 0.05 M buffer fosfat. Tert-butil hidroperoksida (23 mM) ditambahkan untuk memulai reaksi. Laju pembentukan GSSG ditentukan oleh reaksi GR dari penurunan absorbansi probe pada 340 nm (Antunes et al.2002).
Pengukuran kandungan protein dalam sampel. Protein mitokondria ditentukan dengan metode Lowry yang dimodifikasi oleh Miller, dengan BSA sebagai standar (Lowry et al.1951; Miller 1959).
Analisis statistik. Data disajikan sebagai mean±standard error of mean (SEM). Uji Shapiro-Wilk digunakan untuk menguji normalitas distribusi data. Untuk beberapa perbandingan data dengan distribusi normal, analisis varians satu arah parametrik (ANOVA) dilakukan dan metode Student-Newman-Keuls digunakan untuk menguji perbedaan rata-rata. Nilai dianggap signifikan secara statistik pada p<>

Hasil
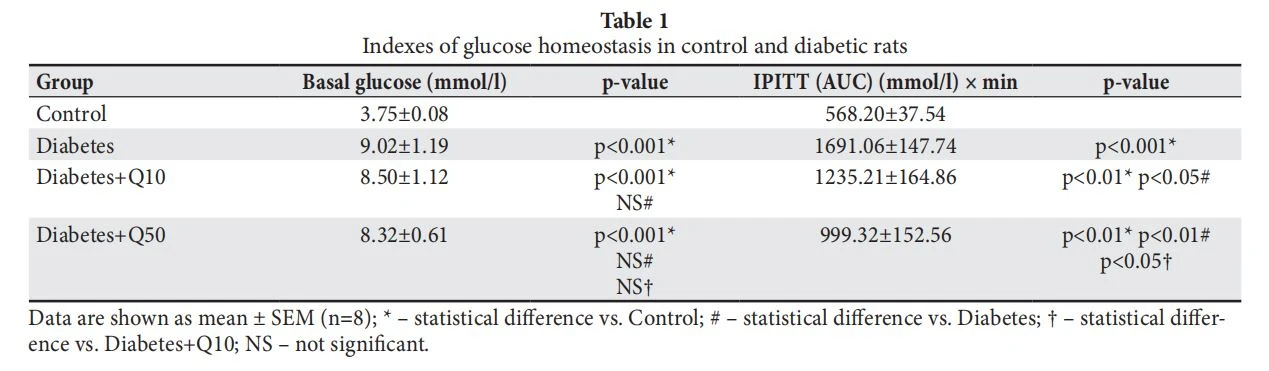
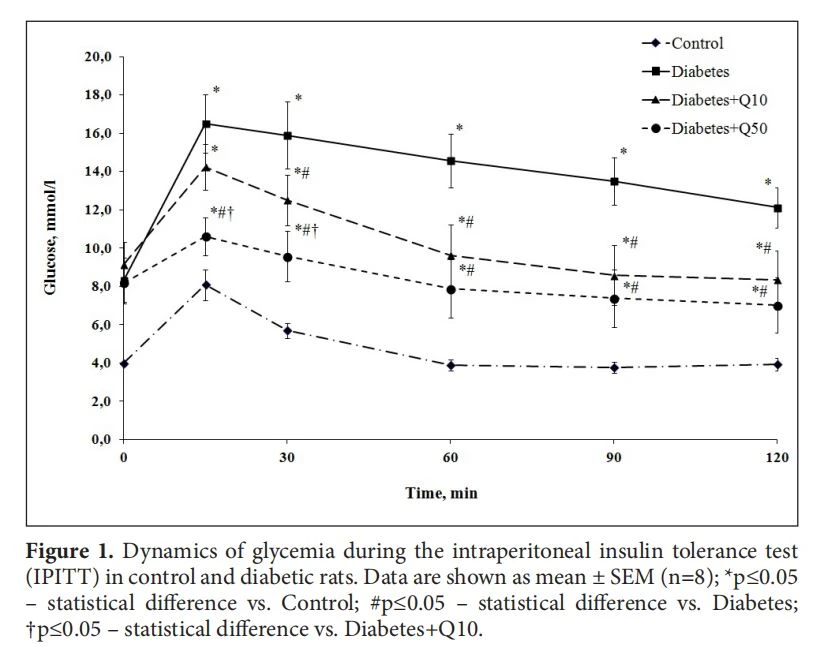
Kami mengungkapkan bahwa tingkat glukosa basal pada tikus yang diberi diet tinggi kalori dan disuntik dengan STZ secara signifikan lebih tinggi daripada pada kelompok kontrol (Tabel 1). Selain itu, area di bawah kurva glikemik (AUC) yang diperoleh selama IPITT hampir tiga kali lebih besar pada hewan diabetes dibandingkan dengan kontrol (Tabel 1, Gambar 1) Data ini mengkonfirmasi perkembangan defisiensi insulin relatif dan resistensi insulin pada tikus percobaan.
Pemberian Q tidak berdampak signifikan pada hiperglikemia basal hewan diabetes. Namun, Q mempengaruhi sensitivitas insulin pada tikus dengan DMT2 dengan cara yang bergantung pada dosis, menurunkan AUC IPITT sebesar 27 persen pada kelompok eksperimen yang menerima 10 mg/kg obat, dan sebesar 41 persen pada kelompok yang menerima 50 mg/kg Q dibandingkan untuk hewan penerima kendaraan (Tabel 1, Gambar 1).
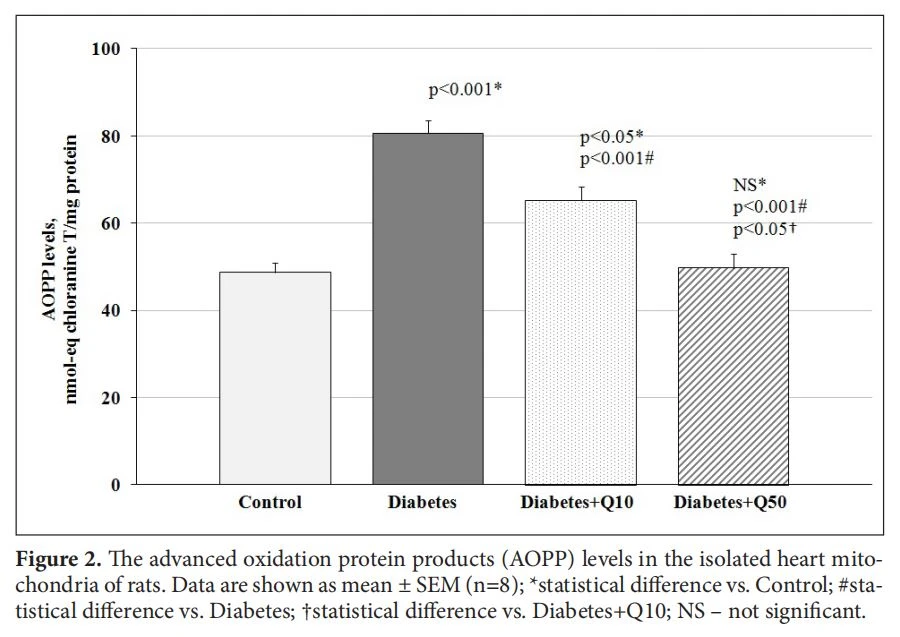
Tingkat AOPP di mitokondria jantung tikus percobaan meningkat sebesar 66 persen yang mengkonfirmasi perkembangan stres oksidatif pada DMT2 (Gambar 2). Administrasi mengakibatkan penurunan akumulasi AOPP di jantung hewan diabetes tergantungpada dosis obat. Pada kelompok eksperimen yang menerima 50 mg/kg Q, konsentrasi AOPP menurun ke tingkat kelompok kontrol, menunjukkan sifat antioksidan Q (Gambar 2).
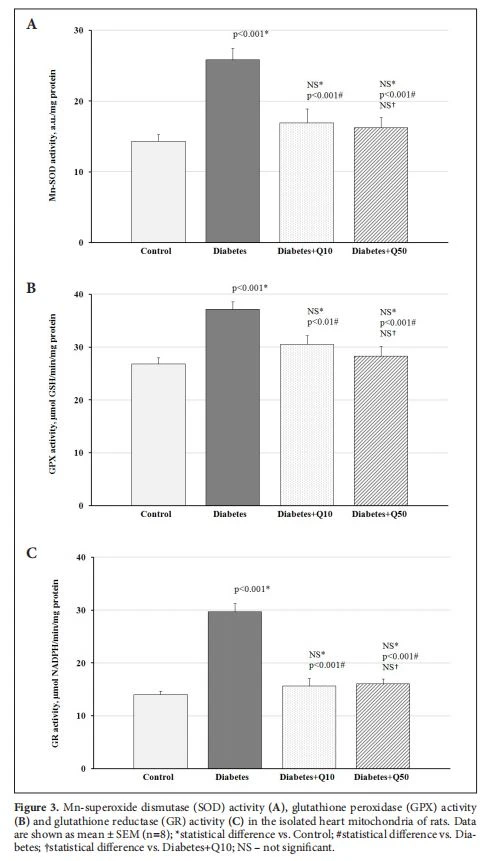
Seperti dapat dilihat pada Gambar 3, stres oksidatif di mitokondria jantung tikus dengan DMT2 disertai dengan aktivitas enzim antioksidan -Mn-SOD, GPO, dan GR yang diinduksi. Pemberian Q dalam kedua dosis menormalkan aktivitas enzim anti-oksidan yang dipelajari pada hewan diabetes ke tingkat kelompok kontrol (Gambar 3).
Ditemukan bahwa T2DM dikaitkan dengan 65 persen dan 52 persen peningkatan aktivitas NOX dan XO, dua sumber sitosolik utama O2 dalam kardiomiosit, masing-masing, di fraksi postmitokondria dari homogenat jantung tikus percobaan (Gambar 4). Penggunaan Q menyebabkan normalisasi aktivitas NOX dan XO di jantung hewan diabetes terlepas dari dosis (Gambar 4).

Diskusi
Saat ini, stres oksidatif didefinisikan sebagai peningkatan berkelanjutan radikal bebas karena ketidakseimbangan dalam produksi dan pemanfaatannya dianggap sebagai mekanisme universal yang menggabungkan berbagai jalur patogenetik komplikasi kardiovaskular diabetes (Huynh et al.2014).
Stres oksidatif yang disebabkan oleh hiperglikemia memainkan peran utama dalam patogenesis DMT2 (Shah dan Brownlee 2016). Gambaran patologis utama DMT2 adalah penurunan sekresi insulin dan penurunan sensitivitas terhadap hormon di jaringan perifer. Pada tahap pertama penelitian kami, resistensi insulin dimodelkan pada tikus yang menggunakan diet berkalori tinggi. Selama empat minggu, tikus menerima diet tinggi kalori. p. disuntik dengan STZ untuk menghasilkan defisiensi insulin relatif. Peningkatan kadar glikemia basal dan peningkatan AUC di IPITT menunjukkan perkembangan defisiensi insulin dan resistensi insulin pada hewan model.
Pemberian Q tidak mempengaruhi tingkat hiperglikemia basal pada tikus diabetes, tetapi meningkatkan sensitivitas insulin dengan cara yang bergantung pada dosis. Hasilnya konsisten dengan data dari penelitian lain tentang kemampuan Q untuk menurunkan resistensi insulin (Shi et al. 2019). Q meningkatkan pemanfaatan glukosa di jaringan perifer dan mengurangi produksi glukosa hati. Flavonoid dilaporkan mengaktifkan mekanisme insulin-independen yang melibatkan protein kinase yang bergantung pada AMP, yang merangsang translokasi transporter glukosa GLUT4 ke dalam membran plasma di otot rangka dan menurunkan regulasi enzim kunci glukoneogenesis di hati (fosfoenol-piruvat karboksikinase dan glukosa {{ 6}}fosfatase) (Idul Fitri dan Haddad 2017). Peningkatan sensitivitas insulin oleh Q mungkin juga karena kemampuannya untuk meningkatkan ekspresi adiponektin dalam jaringan adiposa putih secara independen dari ekspresi reseptor yang diaktifkan proliferator peroksisom (Wein et al. 2010).
Efek antidiabetes Q juga dapat diwujudkan dengan mengurangi penyerapan glukosa di usus melalui inaktivasi transporter glukosa GLUT2 (Gaueret al.2018) dan penghambatan aktivitas -glukosidase usus (Pereira et al. 2011). Selain itu, Q telah terbukti menghambat enzim 1l-hidroksisteroid dehidrogenase-1, yang memainkan peran kunci dalam pengembangan obesitas dan DMT2 dengan mempengaruhi aksi hormon glukokortikoid di hati, jaringan adiposa, dan pankreas. -sel (Torres-Piedra et al.2010).
Diasumsikan bahwa perkembangan dan progresi komplikasi diabetes disebabkan oleh peningkatan produksi ROS (Kayama et al. 2015). Pada kardiomiosit, ROS dihasilkan oleh rantai transpor elektron mitokondria (ETC), NOX, dan XO (Tsutsui). dkk.2011). Dapat dikatakan bahwa mitokondria adalah kontributor stres oksidatif utama untuk DMT2 (Shah dan Brownlee 2016). Perkembangan stres oksidatif di mitokondria disertai dengan gangguan jalur pensinyalan sensitif redoks, penurunan fosforilasi oksidatif dan produksi ATP, kerusakan DNA mitokondria, dan, akibatnya, peningkatan lebih lanjut dalam produksi ROS. Akibatnya, kaskade patogen dari peristiwa molekuler, yang memperkuat dirinya sendiri, mengarah pada peluncuran jalur pensinyalan proapoptosis dan kematian sel. Mengingat pentingnya mitokondria dalam metabolisme sel, disfungsi mereka dapat menyebabkan berbagai penyakit termasuk patologi kardiovaskular. Disfungsi mitokondria terjadi pada pasien penyakit jantung koroner, kardiomiopati, gagal jantung, stroke, dan DMT2 (Bai et al.2016).
Dalam penelitian kami, perkembangan stres oksidatif di mitokondria jantung tikus diabetes dibuktikan dengan akumulasi AOPP. Konsentrasi AOPP adalah penanda stres oksidatif yang relatif baru, yang mencerminkan status redoks protein secara keseluruhan dalam sel dan jaringan. AOPP dilaporkan meningkat pada pasien DM, penyakit kardiovaskular, hipertensi, aterosklerosis (Conti et al.2019), dan tingkat tersebut berkorelasi dengan resistensi insulin dan adanya komplikasi diabetes yang parah (Gradinaru et al. 2013; Taylor et al. 2015). Modifikasi protein oksidatif memainkan peran kunci dalam pengembangan disfungsi miokard diabetik. Perubahan redoks struktur protein dapat mengakibatkan disosiasi subunit katalitik enzim, pembukaan, agregasi, atau fragmentasi protein yang terlibat dalam kontraktilitas, kopling eksitasi-kontraksi, pelipatan protein, pertahanan antioksidan, metabolisme, dan penanganan Ca2* di jantung diabetes (Varga dkk.2015). Juga telah ditemukan bahwa AOPP menginduksi pensinyalan proapoptosis dalam kardiomiosit yang mengarah pada perkembangan DCM (Zhang et al.2016).
Pada hewan yang diobati dengan Q dalam dosis 10 mg/kg, penurunan signifikan AOPP di mitokondria jantung diamati, sedangkan dosis 50 mg/kg Q sepenuhnya menormalkan penanda ini dibandingkan dengan tikus yang menerima pembawa.
Efek antioksidan Q dalam mitokondria dapat mencakup beberapa mekanisme utama. Flavonoid memiliki kemampuan untuk mengais ROS karena konfigurasi hidroksil dari cincin-B dalam struktur (Kumar dan Pandey 2013). Pemulungan langsung O, yang dihasilkan dalam kompleks mitokondria II ETC dalam mitokondria jantung tikus yang terisolasi telah ditunjukkan untuk Q (Dudy-lina et al. 2019). Selain itu, flavonoid dapat melemahkan pembentukan ROS di mitokondria melalui penghambatan kompleks I dan III dari ETC. Penghambatan Q aktivitas kompleks I secara signifikan menurunkan H2O2, produksi di mitokondria jantung tikus yang terisolasi (Lagoa et al.2011). Selain itu, pengurangan generasi ROS mitokondria oleh flavonoid ditemukan terkait dengan sifat parsial uncoupling, khususnya, di mitokondria jantung (Bernatoniene et al.2014). Selanjutnya, flavonoid telah terbukti merangsang biogenesis mitokondria melalui induksi ko-aktivator transkripsi PGC-la dan regulator hulu SIRT1. Yang terakhir mengarah pada stimulasi serangkaian faktor transkripsi (NRF1, NRF2, dan terkait estrogen-a), yang terlibat dalam regulasi metabolisme energi dan pelestarian homeostasis di mitokondria (Kicinska dan Jarmuszkiewicz 2020).

Sebagai hasil dari percobaan kami, peningkatan stres oksidatif di mitokondria jantung tikus diabetes disertai dengan induksi aktivitas enzim antioksidan-Mn-SOD, GPO, dan GR. Telah diketahui dengan baik, bahwa mekanisme utama dalam pertahanan seluler terhadap stres oksidatif adalah aktivasi jalur pensinyalan yang bergantung pada Keapl/Nrf-2-, yang mengontrol ekspresi gen yang produk proteinnya terlibat dalam detoksifikasi dan eliminasi oksidan reaktif (Nguyen et al. 2009). Dalam hal ini, induksi enzim antioksidan yang diamati di jantung hewan percobaan adalah implementasi umpan balik negatif yang bertujuan untuk mempertahankan homeostasis redoks.
Pemberian Q dalam kedua dosis menyebabkan penurunan aktivitas Mn-SOD, GPO, dan GR di mitokondria jantung hewan percobaan ke nilai statistik yang berbeda dari kelompok kontrol. Meskipun Q diketahui menginduksi aktivitas enzim di atas (Shi et al.2019), hasil kami menunjukkan bahwa efek antioksidan Q dalam kardiomiosit pada DMT2 diwujudkan lebih dengan kemampuannya untuk mencegah hiperproduksi ROS dan oleh karena itu perkembangan disfungsi mitokondria, dibandingkan dengan stimulasi sistem pertahanan antioksidan. Sebelumnya, ditunjukkan bahwa penggunaan Q meningkatkan kapasitas oksidatif mitokondria dan aktivitas beberapa enzim siklus Krebs di jantung tikus dengan DMT2(Gorbenko et al.2019).
Seperti disebutkan di atas, mitokondria adalah yang utama, tetapi bukan satu-satunya sumber ROS dalam kardiomiosit. Faktor penting kedua dalam perkembangan stres oksidatif pada jantung diabetes adalah NOX, dengan NOX2 dan NOX4 sebagai isoform miokard utama. Fungsi utama NOX adalah untuk menghasilkan ROS. NOX2 terlokalisasi dalam membran plasma dan berpartisipasi dalam sinyal redoks intraseluler dari reseptor angiotensin II dan lainnya, sementara NOX4 secara khusus memiliki sinyal lokalisasi mitokondria dan menunjukkan aktivitas konstitutif (Cave et al. 2005). Telah ditunjukkan bahwa inkubasi kardiomiosit tikus dengan protein terglikasi awal merangsang produksi ROS melalui aktivasi NOX2 yang bergantung pada protein kinase C (PKC) (Zhang et al. 2006). Lebih lanjut, hipertrofi jantung, fibrosis, dan apoptosis ditemukan terkait dengan peningkatan regulasi NOX2 di jantung tikus dengan DM tipe 1 dan tipe 2 (Ritchie et al.2007; Huynh et al.2013). Sumber tambahan ROS dalam kardiomiosit adalah XO, yang mengkatalisis oksidasi hipoksantin dan xantin menjadi asam urat menggunakan O, sebagai reseptor elektron dan memproduksi O, dan H2O2, dalam prosesnya. Meskipun kontribusi reaksi XO terhadap perkembangan stres oksidatif pada diabetes belum cukup dipelajari, inhibitor XO terbukti memperbaiki disfungsi kardiovaskular dalam model gagal jantung yang diinduksi mondar-mandir (Amado et al. 2005). Dalam penelitian kami, T2DM menyebabkan peningkatan yang signifikan dalam aktivitas NOX dan XO di jantung tikus percobaan. Pada saat yang sama, pemberian Q secara independen dari dosis menormalkan aktivitas enzim. Sampai saat ini, beberapa penelitian telah menunjukkan kemampuan Q untuk menghambat aktivitas NOX dengan mengurangi ekspresi subunitnya dan mencegah aktivasinya melalui rangsangan ekstraseluler. Mekanisme kedua dapat diwujudkan dengan mengurangi fosforilasi subunit pengatur p47phox karena efek penghambatan flavonoid pada PKC (Redondo et al.2012; Jimenez et al. 2015). Selain itu, O dan metabolitnya diketahui menghambat aktivitas XO secara selektif, membentuk struktur tiga cincin terkonjugasi dengan situs aktif dan interaksi ikatan hidrogen spesifik dengan residu enzim yang relevan secara katalitik (Taka-Hama et al. 201l; Cao dkk.2014).
Singkatnya, penelitian kami menunjukkan bahwa Q dengan cara yang bergantung pada dosis menurunkan oksidasi radikal bebas di mitokondria miokard tikus dengan DMT2, sehingga membatasi pembentukan AOPP. Selain itu, Q dalam dosis 10 mg/kg dan 50 mg/kg mencegah perkembangan stres oksidatif di jantung tikus diabetes yang mengurangi aktivitas NOX dan XO. Data yang diperoleh menunjukkan bahwa penggunaan Q dapat berkontribusi pada perbaikan risiko kardiovaskular pada DMT2.