Bagian Ⅰ:Hyaluronan, pedang bermata dua pada penyakit ginjal
Apr 06, 2023
Abstrak
Selama bertahun-tahun, asam hialuronat (HA) telah menjadi molekul penting dalam studi nefrologi dan urologi yang melibatkan organisasi matriks ekstraseluler (ECM), peradangan, regenerasi jaringan, dan persepsi virus. Selama waktu ini, banyak yang telah mencatat sifat molekul bermata dua yang kompleks, kadang-kadang mempromosikan peristiwa pro-fibrotik dan kadang-kadang mempromosikan peristiwa anti-fibrotik. Bobot molekul HA yang berbeda dapat dikaitkan dengan perbedaan ini, meskipun sebagian besar penelitian belum berfokus pada kehalusan ini. Dalam kasus ginjal, HA diinduksi selama fase respons awal cedera dan selanjutnya menurun selama perkembangan penyakit pada AKI, CKD, dan nefropati diabetik. Ini dan penyakit ginjal lainnya memaksa pasien, terutama pasien anak-anak, untuk menghadapi dialisis, pembedahan, dan akhirnya transplantasi organ. Untuk meringkas literatur terkini bagi para peneliti dan ahli nefrologi pediatrik, artikel ini bertujuan untuk menjelaskan peran paradoks HA dalam berbagai penyakit ginjal dengan menyoroti berat molekul HA.
Kata kunci
Cedera ginjal akut (AKI); penyakit ginjal kronis (CKD); nefropati diabetik; asam hialuronat (HA); nefropati IgA; Kanker ginjal; Fibrosis ginjal; Uropati obstruktif; Refluks Vesicoureteral (VUR);manfaat cistanche.
Perkenalan
Meskipun asal cedera ginjal beragam, sebagian besar menyebabkan gagal ginjal, terutama bermanifestasi sebagai fibrosis [1]. antara tahun 1995 dan 2010, kejadian penyakit ginjal kronis tahap 5 anak (CKD5) meningkat dari 14,6 menjadi 15,7 kasus per juta penduduk dan prevalensi dari 71 menjadi 89 kasus per juta penduduk di Amerika Serikat saja. Secara kolektif, angka-angka ini mewakili beban perawatan kesehatan dan psikososial yang signifikan bagi pasien muda dan keluarga mereka. Menguraikan bagaimana cedera ginjal mendorong fibrogenesis sangat penting untuk pengembangan terapi inovatif untuk mencegah gagal ginjal.
Asam hialuronat (HA), suatu glikosaminoglikan yang umumnya diekspresikan pada sebagian besar vertebrata, memiliki banyak struktur dan fungsi dan semakin terlibat dalam patogenesis fibrosis. Di satu sisi, HA telah terbukti memediasi respons inflamasi dan pro-fibrotik [3]; di sisi lain, varian ha berat molekul tinggi (HMW-HA) memiliki efek anti-inflamasi dan anti-fibrotik [4,5]. Oleh karena itu, memahami bagaimana varian berat molekul (MW) yang berbeda dari sinyal transduksi HA yang mengarah ke respons regeneratif atau fibrotik dapat membantu memerangi beban klinis dan ekonomi penyakit ginjal.
Bagian berikut akan membahas pemahaman terkini tentang HA pada penyakit terkait ginjal sambil membahas peran patofisiologisnya sebagai mediator atau pelindung sitop pada penyakit ini.
Cistanche meningkatkan fungsi ginjal
Salah satu efek Cistanche yang paling signifikan pada ginjal adalah kemampuannya untuk meningkatkan fungsi ginjal. Hal ini telah dibuktikan dalam beberapa penelitian dimana pasien penyakit ginjal diberikan suplemen Cistanche. Hasilnya menunjukkan bahwaCistanchemembantu mengurangi peradangan, meningkatkan aliran darah ke ginjal, dan meningkatkan ekskresi produk limbah dari tubuh.
Klik di sini untuk membeliSuplemen cistanche
Asam hialuronat dan sifat biologis dan fisiologisnya
Asam hialuronat (HA) adalah glikosaminoglikan (GAG) non-sulfat yang terdiri dari residu [glukoronida- 1,3- n-asetilglukosamin- 1,4-] berulang secara linear tanpa inti protein [6]. Setiap unit disakarida dari rantai HA mengandung gugus karboksil, memberikan polisakarida muatan negatif keseluruhan dan memungkinkan untuk bertindak sebagai reservoir dalam matriks ekstraseluler (ECM) untuk memberikan hidrasi dan dukungan struktural dan mekanik [7]. Meskipun sebagian besar penelitian telah menekankan korelasi antara jumlah HA dan temuan patologis, hanya sedikit yang mempertimbangkan pentingnya massa dan struktur molekul HA [8].
Sintesis, degradasi, dan penghambatan Hyaluronan
Meskipun struktur inti HA sederhana, proses biologis sintesis dan degradasinya dikontrol secara ketat untuk mengatur struktur dan fungsi biologisnya. HA sintase (HAS) menghasilkan HA dan hyaluronidase (HYAL) mendegradasi HA, yang bersama-sama mengatur tingkat dasar HA dan berat molekul HA. Secara historis, berat molekul tinggi (HMW) - HA (> 2000 kDa) dianggap disintesis secara eksklusif oleh HAS1 dan 2, dan berat molekul rendah (LMW) - HA terutama disintesis oleh HAS3 [9]. Namun, Itano dkk. melaporkan bahwa ketiga enzim Has berkontribusi pada sintesis HMW-HA, dengan Has2, khususnya, menghasilkan varian HA yang lebih besar dari 2000 kDa [10].
Secara fungsional, protein HAS 1-3 menunjukkan profil ekspresi unik selama pengembangan. Sebuah kelompok mempelajari ekspresi ketiga sintase HA pada tahap embriogenesis tikus dan menunjukkan bahwa setiap sintase diekspresikan secara berbeda dalam hal organ, titik waktu, dan konsentrasi (Tabel 1) [11]. Seperti yang diamati di sini, Has1-3 diekspresikan pada embrionik (E) hari ke-9, tetapi tikus knockout Has2 menunjukkan kematian embrionik. Sebaliknya, KO Has1 dan Has3 dan KO ganda Has1/3 tidak menunjukkan kelainan seperti itu [12]. Studi-studi ini menunjukkan bahwa HAS2 memainkan peran kunci dalam embriogenesis.
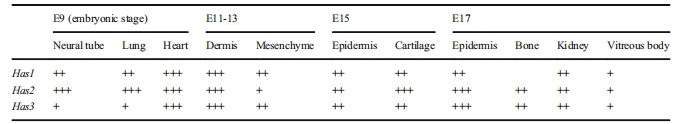
Tabel 1: Profil ekspresi gen HAS 1 - 3 selama perkembangan embrio tikus. Tanda ("Plus" menunjukkan konsentrasi relatif dari setiap molekul.) Ketiga sintase Has hadir di organ yang ditunjukkan pada titik waktu yang berbeda selama perkembangan embrionik. Temuan utama termasuk ekspresi tertinggi dari ketiga Has synthases di jantung pada E9 dan ekspresi tertinggi di kulit relatif terhadap organ lain dari E11 hingga setidaknya E17. Pada E17, pengamatan pertama HAS1-3 di ginjal dan vitreous.
HAS1 mensintesis lebih sedikit HA secara fisiologis daripada HAS2 dan HAS3, tetapi aktivitasnya melonjak selama peristiwa patologis. Untuk mendukung pengamatan ini, fungsi HAS1 dirangkum sebagai berikut: (1) HA yang disintesis oleh HAS1 menarik lebih banyak leukosit; (2) Aktivasi Has1 lebih disukai diinduksi oleh respon inflamasi; dan (3) isoform protein HAS1 full-length dan alternatif disambung diamati pada kanker [13]. Studi lebih lanjut diperlukan untuk menentukan fungsi unik HA sintase, terutama dalam konteks cedera atau penyakit.
Enzim HA katabolik, khususnya HYALs 1 dan HYALs 2, membelah HMW-HA menjadi LMW-HA dan oligosakarida [14,15], kekurangannya menyebabkan disfungsi organ di ginjal [16], jantung [17], dan paru-paru [ 18]. Sebaliknya, tidak ada akumulasi HA yang diamati pada tikus KO Hyal3 [15], menunjukkan bahwa Hyal1 dan Hyal2 dapat mengkompensasi hilangnya Hyal3. Pada bagian selanjutnya, kita akan membahas fungsi paradoks HA karena variasi MW dan mekanisme pengikatannya yang kompleks.

Manfaat ekstrak Cistanche
Bagaimana berat molekul berhubungan dengan fungsi HA
Pendekatan bermata dua dari ulasan ini berasal dari fakta bahwa HA dapat memengaruhi respons pro-inflamasi dan anti-inflamasi/fibrotik. Studi telah mendamaikan paradoks ini dengan mengklasifikasikan HA sebagai LMW-HA pro-inflamasi/fibrotik atau HMW-HA anti-inflamasi/fibrotik [10,19,20]. Menurut literatur, ukuran oligosakarida adalah 1.7-6.1 kDa [21], dengan ukuran LMW-HA <120 kDa [22] dan HMW-HA >900 kDa [23].
HMW-HA (lebih dari; 900 kDa) adalah varian dominan yang diamati pada jaringan padat yang sehat dari spesies [24], dan HMW-HA meningkat dengan kerusakan tubuh. Kami telah menunjukkan bahwa sintesis HMW-HA dapat diregulasi oleh IL-10 dan meningkatkan perbaikan regeneratif di beberapa organ [19,22]. Pada model hewan [25], HMW-HA juga telah terbukti meningkatkan penyembuhan luka diabetes dan mengembalikan integritas kulit yang biasanya hilang akibat fibrosis. Sebaliknya, LMW-HA biasanya menghasilkan keadaan pro-inflamasi, yang pada awalnya mungkin bermanfaat karena mengaktifkan respon imun untuk membersihkan patogen dan mencegah infeksi setelah cedera [26]. Namun, persistensi LMW-HA dalam keadaan penyakit menyebabkan kerusakan jaringan dan remodeling yang buruk.
Berdasarkan studi pada organ lain, kami menduga bahwa perubahan distribusi HA dari berat molekul tinggi ke rendah akan berhubungan dengan penyakit ginjal. Model tikus kami dari obstruksi ureter unilateral (UUO) secara konsisten menunjukkan peningkatan HMW-HA pada titik waktu awal setelah cedera ginjal, diikuti oleh kerusakan fraksi LMW-HA, seperti yang ditunjukkan pada Gambar 1 [22]. Transisi ini menunjukkan respons alami tubuh terhadap cedera, di mana lingkungan pro-inflamasi merupakan langkah penting untuk infeksi dan penyembuhan cepat [27,28]. Namun, dalam kasus cedera kronis, HMW-HA diperlukan untuk mendorong regenerasi daripada penyembuhan fibrotik [22].
reseptor Hyaluronan
HA mempromosikan interaksi multifaset dalam jaringan yang rusak dengan secara khusus menargetkan reseptor untuk pensinyalan. dikotomi antara aksi LMW-HA dan HMW-HA sebagian bergantung pada reseptor yang mereka ikat secara istimewa. lMW-HA cenderung untuk mengikat TLRs 2/4 [29], yang diaktifkan oleh produk bakteri dan selanjutnya diinduksi oleh pensinyalan ke makrofag hilir dan sel dendritik [30]. kekebalan bawaan. Makrofag yang berlebihan dan aktivasi sel dendritik menyebabkan penyembuhan luka kronis yang lambat [31]. Sebaliknya, HMW-HA biasanya mengikat CD44 dan menyebabkan respon anti-inflamasi untuk mengurangi infiltrasi makrofag dan fibrosis [29].
Khususnya, meskipun CD44 adalah reseptor utama untuk HMW-HA, pengikatannya tidak eksklusif, sehingga pensinyalan LMW-HA dari jalur inflamasi dapat ditransduksi secara berkala melalui reseptor yang sama. Ini menjelaskan keragaman respon seluler terhadap cedera, mulai dari menginduksi lingkungan anti-inflamasi dan mempromosikan inaktivasi sel imun [32,33] hingga menyebabkan remodeling jaringan yang tidak menguntungkan [34,35]. Selain itu, penyambungan RNA selektif dan pemrosesan molekul reseptor CD44 pasca-translasi dapat menghasilkan varian berbeda yang mengubah transduksi pensinyalan HA dan ligan lainnya.
Reseptor pengikat HA lainnya termasuk HA-mediated motor receptor (RHAMM), reseptor hyaluronan sel endotel limfatik 1 (LYVE1), dan reseptor endositosis hyaluronan (HARE). Reseptor ini ada di berbagai organ dan pada banyak tipe sel, dan HA dapat bekerja secara berbeda tergantung pada reseptor dan sel tempat ia dilokalisasi. Misalnya, pengikatan HA ke LYVE1 mendorong proliferasi jaringan limfoid [37], sementara pengikatan HA ke HARE menginternalisasi dan membersihkan HA di kelenjar getah bening [38].
Ekstrak cistanche
Protein pengikat Hyaluronan
HA diketahui berikatan silang dengan berbagai protein, termasuk alpha-trypsin inter inhibitor (II), tending, TSG-6, pentraxin, dan TSP-1 [9]. II mempromosikan pembentukan matriks periseluler di sekitar fibroblas dan mendukung stabilitas HMWHA [39], keduanya terkait dengan penyembuhan luka tanpa bekas luka [19]. Proteoglikan, termasuk biglycan, versican, aggrecan, dan neurocan, mewakili molekul ECM unik yang berinteraksi dengan HA untuk mengarahkan perkembangan dan respons terhadap penyakit [40].
Seperti disebutkan sebelumnya, peran HA berlipat ganda, karena varian MW dan interaksi auksin menentukan jalur pensinyalan hilir dan perkembangan penyakit. Mekanisme dimana HA mempromosikan peradangan ginjal dan fibrosis dibahas secara khusus pada bagian berikut
Hyaluronan di ginjal
Selama 15 tahun terakhir, HA telah diamati untuk menginduksi efek yang berbeda pada cedera dan penyakit ginjal, sebagian besar bergantung pada model yang dipelajari, tetapi sebagian besar dipengaruhi oleh MW-nya. Misalnya Ito et al. menunjukkan bahwa pengikatan HMW-HA ke CD44 mendorong migrasi sel tubulus proksimal (PTC) in vitro melalui aktivasi MAPK [41]. Meskipun data mereka mendukung anggapan bahwa respons seluler terhadap cedera didorong oleh perubahan varian HA MW [42-44], mekanisme bagaimana HA MW memengaruhi cedera ginjal masih belum jelas. Kami akan mengatasi kesenjangan pengetahuan ini dengan mengeksplorasi fungsi multifaset HA dalam patogenesis penyakit ginjal yang paling umum di bagian berikut.
Mekanisme Potensial HA pada Cedera Ginjal dan Penyakit
Sebagai reseptor HA utama, CD44 telah ditiru secara luas dalam berbagai studi penyakit di mana interaksi reseptor-ligan homolog menyebabkan peningkatan jaringan parut. Salah satu studi tersebut menunjukkan bahwa ekspresi CD44 meningkat pada ginjal tikus normal yang terluka dan tikus CD44 KO mengalami peningkatan cedera tubular dan apoptosis tetapi mengurangi fibrosis ginjal setelah UUO [59]. Perkembangan penyakit glomerulus fibrotik telah lama dikaitkan dengan CD44 plus sel glomerulus [60], karena sel yang mendorong penyembuhan setelah cedera dapat direkrut, seperti makrofag. Studi lain menemukan bahwa Hyal2 dalam kombinasi dengan isoform CD44 CD44v7/8 memediasi protein morfogenetik tulang-7 (BMP7), mengatur diferensiasi myofibroblast dan kemampuannya untuk menggerakkan fibrosis [61].
Demikian pula, TLR2 memediasi respons inflamasi yang signifikan setelah cedera ginjal, dan pada model tikus knockout TLR2, cedera iskemia / reperfusi (I / R) menyebabkan penurunan leukosit, kemokin, dan sitokin di lokasi cedera. Cedera ginjal berkurang pada tikus knockout TLR2 dibandingkan dengan kontrol. protein pengikat HA Biglycan menginduksi peradangan melalui TLR2/4, merekrut subpopulasi Th1 dan Th17 pro-inflamasi dan akhirnya menyebabkan fibrosis ginjal [62-65]. Sebaliknya, sebuah studi hyaluronidase menunjukkan bahwa kekurangan Hyals 1 dan 2 meningkatkan peradangan dan aktin otot polos (a-SMA) dalam model tikus cedera I/R. Ini menekankan peran Hyals 1 dan 2 dalam mencegah akumulasi HA yang berlebihan untuk mengurangi peradangan dan fibrosis [66].
Herbal Cistanche
REFERENSI
1. Tecklenborg J, Clayton D, Siebert S, Coley SM (2018) Peran sistem kekebalan pada penyakit ginjal. Klinik Exp Immunol 192:142– 150
2. (2013) Pengantar Volume Satu: Laporan Data Tahunan USRDS 2012 Atlas Penyakit Ginjal Kronis di Amerika Serikat. Am J Kidney Dis 61(Suppl 1):e1-e22
3. Inokoshi Y, Tanino Y, Wang X, Sato S, Fukuhara N, Nikaido T, Fukuhara A, Saito J, Frevert CW, Munakata M (2013) Signifikansi klinis serum hyaluronan pada pneumonia interstisial fibrotik kronis. Respirologi 18:1236–1243
4. Litwiniuk M, Krejner A, Speyrer MS, Gauto AR, Grzela T (2016) Asam hialuronat pada inflamasi dan regenerasi jaringan. Luka 28:78–88
5. Wang CT, Lin YT, Chiang BL, Lin YH, Hou SM (2006) Asam hialuronat dengan berat molekul tinggi menurunkan regulasi ekspresi gen sitokin dan enzim terkait osteoarthritis dalam sinoviosit mirip fibroblast dari pasien dengan osteoartritis dini. Tulang Rawan Osteoarthr 14:1237–1247
6. Nagy N, Sunkari VG, Kaber G, Hasbun S, Lam DN, Speake C, Sanda S, McLaughlin TL, Wight TN, Long SR, Bollykya PL (2019) Tingkat Hyaluronan meningkat secara sistemik pada manusia tipe 2 tetapi bukan tipe 1 diabetes secara independen dari kontrol glikemik. Matriks Biol 80:46–58
7. Cowman MK, Lee HG, Schwertfeger KL, McCarthy JB, Turley EA (2015) Kandungan dan ukuran hyaluronan dalam cairan dan jaringan biologis. Immunol depan 6:261
8. Cyphert JM, Trempus CS, Garantziotis S (2015) Masalah ukuran: spesifisitas berat molekul dari efek hyaluronan dalam biologi sel. Biol Sel Int J 2015:563818
9. Evanko SP, Tammi MI, Tammi RH, Wight TN (2007) matriks periseluler bergantung Hyaluronan. Adv Drug Deliv Wahyu 59:1351–1365
10. Itano N, Sawai T, Yoshida M, Lenas P, Yamada Y, Imagawa M, Shinomura T, Hamaguchi M, Yoshida Y, Ohnuki Y, Miyauchi S, Spicer AP, McDonald JA, Kimata K (1999) Tiga isoform mamalia sintase hyaluronan memiliki sifat enzimatik yang berbeda. J Biol Chem 274:25085–25092
11. Törrönen K, Nikunen K, Kärnä R, Tammi M, Tammi R, Rilla K (2014) Distribusi jaringan dan lokalisasi subselular dari isoenzim sintase hyaluronan. Histochem Cell Biol 141:17–31
12. Camenisch TD, Spicer AP, Brehm-Gibson T, Biesterfeldt J, Augustine ML, Calabro A Jr, Kubalak S, Klewer SE, McDonald JA (2000) Gangguan sintase hyaluronan-2 membatalkan morfogenesis jantung normal dan hyaluronan- dimediasi transformasi epitel menjadi mesenkim. J Clin Investasikan 106:349–360
13. Siiskonen H, Oikari S, Pasonen-Seppänen S, Rilla K (2015) Hyaluronan synthase 1: enzim misterius dengan fungsi tak terduga. Immunol depan 6:43
14. Liang J, Jiang D, Noble PW (2016) Hyaluronan sebagai target terapi pada penyakit manusia. Adv Drug Deliv Wahyu 97:186–203
15. Csoka AB, Frost GI, Stern R (2001) Enam gen mirip hyaluronidase dalam genom manusia dan tikus. Biola Matriks 20:499–508
16. Colombaro V, Jadot I, Decleves AE, Voisin V, Giordano L, Habsch I, Flamion B, Caron N (2015) Hyaluronidase 1 dan hyaluronidase 2 diperlukan untuk pergantian hyaluronan ginjal. Acta Histochem 117: 83–91
17. Chowdhury B, Xiang B, Liu M, Hemming R, Dolinsky VW, Triggs-Raine B (2017) Defisiensi Hyaluronidase 2 menyebabkan peningkatan sel mesenkim, kelainan jantung bawaan, dan gagal jantung. Circ Cardiovasc Genet 10:e001598
18. Chowdhury B, Hemming R, Hombach-Klonisch S, Flamion B, Triggs-Raine B (2013) Defisiensi murine hyaluronidase 2 menyebabkan akumulasi hyaluronan ekstraseluler dan disfungsi kardiopulmoner yang parah. J Biol Chem 288:520–528
19. Balaji S, Wang X, King A, Le LD, Bhattacharya SS, Moles CM, Butte MJ, de Jesus Perez VA, Liechty KW, Wight TN, Crombleholme TM, Bollyky PL, Keswani SG (2017) Interleukin{{2} }perbaikan jaringan postnatal regeneratif yang dimediasi tergantung pada regulasi metabolisme hyaluronan melalui pensinyalan STAT3 spesifik fibroblast. FASEB J 31:868–881
20. Bollyky PL, Bogdani M, Bollyky JB, Hull RL, Wight TN (2012) Peran hyaluronan dan matriks ekstraseluler dalam inflamasi pulau dan regulasi imun. Curr Diab Rep 12:471–480
21. Finke B, Stahl B, Pfenninger A, Karas M, Daniel H, Sawatzki G (1999) Analisis oligosakarida dengan berat molekul tinggi dari ASI dengan kromatografi cair dan MALDI-MS. Kimia Anal 71:3755–3762
22. Wang X, Balaji S, Steen EH, Blum AJ, Li H, Chan CK, Manson SR, Lu TC, Rae MM, Austin PF, Wight TN, Bollyky PL, Cheng J, Keswani SG (2020) Hyaluronan dengan berat molekul tinggi melemahkan jaringan parut tubulointerstitial pada cedera ginjal. Wawasan JCI 5:e136345
23. Nagy N, Kuipers HF, Frymoyer AR, Ishak HD, Bollyky JB, Wight TN, Bollyky PL (2015) 4-perawatan methylumbelliferone dan penghambatan hyaluronan sebagai strategi terapi dalam peradangan, autoimunitas, dan kanker. Immunol depan 6:123
24. Armstrong SE, Bell DR (2002) Pengukuran hyaluronan dengan berat molekul tinggi dalam jaringan padat menggunakan elektroforesis gel agarosa. Anal Biochem 308:255–264
25. Galeano M, Polito F, Bitto A, Irrera N, Campo GM, Avenoso A, Calò M, Lo Cascio P, Minutoli L, Barone M, Squadrito F, Altavilla D (2011) Pemberian hyaluronan dengan berat molekul tinggi secara sistemik merangsang penyembuhan luka pada tikus diabetes genetik. Biochim Biophys Acta 1812:752–759
26. Vistejnova L, Safrankova B, Nesporova K, Slavkovsky R, Hermannova M, Hosek P, Velebny V, Kubala L (2014) Hyaluronan dengan berat molekul rendah yang dimediasi CD44 tergantung induksi IL-6 dan kemokin pada fibroblas kulit manusia mempotensiasi respon imun bawaan. Sitokin 70:97–103
27. Gariboldi S, Palazzo M, Zanobbio L, Selleri S, Sommariva M, Sfondrini L, Cavicchini S, Balsari A, Rumio C (2008) Asam hialuronat dengan berat molekul rendah meningkatkan pertahanan diri epitel kulit dengan induksi beta-defensin 2 melalui TLR2 dan TLR4. J Immunol 181:2103–2110
28. Gao Y, Sun Y, Yang H, Qiu P, Cong Z, Zou Y, Song L, Guo J, Anastassiades TP (2019) Turunan asam hialuronat dengan berat molekul rendah mempercepat penyembuhan luka eksisi dengan memodulasi pro-inflamasi, mendorong epitelisasi dan neovaskularisasi, dan remodeling kolagen. Int J Mol Sci 20:3722
29. Liu M, Tolg C, Turley E (2019) Membedah sifat ganda hyaluronan dalam lingkungan mikro tumor. Imunol depan 10:947
30. Avenoso A, Bruschetta G, D'Ascola A, Scuruchi M, Mandraffino G, Gullace R, Saitta A, Campo S, Campo GM (2019) Fragmen Hyaluronan diproduksi selama cedera jaringan: sinyal yang memperkuat respons peradangan. Arch Biochem Biophys 663:228–238
31. Dasu MR, Thangappan RK, Bourgette A, DiPietro LA, Isseroff R, Jialal I (2010) Ekspresi TLR2 dan peradangan yang bergantung pada pensinyalan mengganggu penyembuhan luka pada tikus diabetes. Penyelidikan Lab 90: 1628–1636
32. Qadri M, Almadani S, Jay GD, Elsaid KA (2018) Peran CD44 dalam mengatur aktivasi TLR2 makrofag manusia dan ekspresi hilir sitokin proinflamasi. J Immunol 200: 758–767
33. Ruffell B, Johnson P (2008) Hyaluronan menginduksi kematian sel dalam sel T teraktivasi melalui CD44. J Immunol 181:7044–7054
34. Suleiman M, Abdulrahman N, Yalcin H, Mraiche F (2018) Peran CD44, hyaluronan, dan NHE1 dalam remodeling jantung. Sains Kehidupan 209:197–201
35. Govindaraju P, Todd L, Shetye S, Monslow J, Puré E (2019) CD44-peradangan yang bergantung, fibrogenesis, dan kolagenolitik mengatur remodeling matriks ekstraseluler dan kekuatan tarik selama penyembuhan luka kulit. Matriks Biol 75-76:314–330
36. Nagy N, Kuipers HF, Marshall PL, Wang E, Kaber G, Bollyky PL (2019) Hyaluronan pada disregulasi imun dan penyakit autoimun. Biola Matriks 78-79:292–313
37. Jackson DG (2019) Hyaluronan di limfatik: peran kunci reseptor hyaluronan LYVE-1 dalam perdagangan leukosit. Matriks Biol 78-79:219–235
38. .Garantziotis S, Savani RC (2019) Biologi Hyaluronan: tindakan penyeimbangan struktur, fungsi, lokasi, dan konteks yang kompleks. Matriks Biol 78-79:1–10
39. He H, Li W, Tseng DY, Zhang S, Chen SY, Day AJ, Tseng SC (2009) Karakterisasi biokimia dan fungsi kompleks yang dibentuk oleh hyaluronan dan rantai berat inter-alpha inhibitor (HC*HA) yang dimurnikan dari ekstrak selaput ketuban manusia. J Biol Chem 284:20136–42016
40. Abaskharoun M, Bellemare M, Lau E, Margolis RU (2010) Ekspresi hyaluronan dan proteoglikan pengikat hyaluronan neurocan, aggrecan, dan versican oleh sel induk saraf dan sel saraf yang berasal dari sel induk embrionik. Brain Res 1327: 6–15
41. Ito T, Williams JD, Al-Assaf S, Phillips GO, Phillips AO (2004) Hyaluronan dan migrasi sel tubulus proksimal. Ginjal Int 65: 823–833
42. Zeisberg M, Neilson EG (2010) Mekanisme fibrosis tubulointerstitial. J Am Soc Nephrol 21:1819–1834
43. Levey AS, Coresh J (2012) Penyakit ginjal kronis. Lancet 379: 165–180
44. Albeiroti S, Soroosh A, de la Motte CA (2015) Peran Hyaluronan dalam fibrosis: faktor patogen atau pemain pasif? Biomed Res Int 2015:790203
45. Tampe B, Steinle U, Tampe D, Carstens JL, Korsten P, Zeisberg EM, Müller GA, Kalluri R, Zeisberg M (2017) Hidralazin dosis rendah mencegah fibrosis pada model murine dari cedera ginjal akut hingga penyakit ginjal kronis kemajuan. Ginjal Int 91:157–176
46. Decleves AE, Caron N, Voisin V, Legrand A, Bouby N, Kultti A, Tammi MI, Flamion B (2012) Sintesis dan fragmentasi hyaluronan pada iskemia ginjal. Transplantasi Nephrol Dial 27:3771– 3781
47. Colombaro V, Declèves AE, Jadot I, Voisin V, Giordano L, Habsch I, Nonclercq D, Flamion B, Caron N (2013) Penghambatan hyaluronan melindungi terhadap cedera iskemia-reperfusi ginjal. Transplantasi Nephrol Dial 28:2484–2493
48. van den Berg BM, Wang G, Boels MGS, Avramut MC, Jansen E, Sol WMPJ, Lebrun F, van Zonneveld AJ, de Koning EJP, Vink H, Gröne HJ, Carmeliet P, van der Vlag J, Rabelink TJ ( 2019) Fungsi glomerulus dan integritas struktural tergantung pada sintesis hyaluronan oleh endotelium glomerulus. J Am Soc Nephrol 30:1886– 1897
49. Campo GM, Avenoso A, Micali A, Nastasi G, Squadrito F, Altavilla D, Bitto A, Polito F, Rinaldi MG, Calatroni A, D'Ascola A, Campo S (2010) Hyaluronan dengan berat molekul tinggi mengurangi PKC ginjal aktivasi pada tikus diabetes genetik. Biochim Biophys Acta 1802:1118–1130
50. Jones S, Jones S, Phillips AO (2001) Regulasi generasi hyaluronan sel epitel tubulus proksimal ginjal: implikasi untuk nefropati diabetik. Ginjal Int 59:1739–1749
51. Sano N, Kitazawa K, Sugisaki T (2001) Lokalisasi dan peran CD44, asam hialuronat dan osteopontin pada nefropati IgA. Nefron 89:416–421
52. Nakamura H, Kitazawa K, Honda H, Sugisaki T (2005) Peran dan korelasi antara aktin otot alfa-halus, CD44, asam hialuronat dan osteopontin dalam pembentukan bulan sabit pada glomerulonefritis manusia. Klinik Nephrol 64:401–411
53. Verhulst A, Asselman M, De Naeyer S, Vervaet BA, Mengel M, Gwinner W, D'Haese PC, Verkoelen CF, De Broe ME (2005) Prakondisi epitel tubulus distal ginjal manusia mendahului nefrokalsinosis. Ginjal Int 68:1643–1647
54. Asselman M, Verhulst A, De Broe ME, Verkoelen CF (2003) Kepatuhan kristal kalsium oksalat pada hyaluronan-, osteopontin-, dan CD44-mengekspresikan cedera/regenerasi sel epitel tubular pada ginjal tikus. J Am Soc Nephrol 14:3155–3166
55. Asselman M, Verhulst A, Van Ballegooijen ES, Bangma CH, Verkoelen CF, De Broe ME (2005) Hyaluronan disekresikan secara apikal dan diekspresikan dengan proliferasi atau regenerasi sel tubulus ginjal. Ginjal Int 68:71–83
56. Rostved AA, Ostrowski SR, Peters L, Lundgren JD, Hillingsø J, Johansson PI, Rasmussen A (2018) Asam hialuronat adalah biomarker untuk disfungsi allograft dan memprediksi hilangnya cangkok 1-tahun setelah transplantasi hati. Prosedur Transplantasi 50:3635–3643
57. Wells A, Larsson E, Hanás E, Laurent T, Hällgren R, Tufveson G (1993) Peningkatan hyaluronan dalam menolak cangkok ginjal manusia secara akut. Transplantasi 55:1346–1349
58. Pichler R, Buttazzoni A, Rehder P, Bartsch G, Steiner H, Oswald J (2011) Aplikasi endoskopi kopolimer dekstranomer/asam hialuronat dalam pengobatan refluks vesikoureter setelah transplantasi ginjal. BJU Int 107:1967–1972
59. Rouschop KM, Sewnath ME, Claessen N, Roelofs JJ, Hoedemaeker I, van der Neut R, Aten J, Pals ST, Weening JJ, Florquin S (2004) Defisiensi CD44 meningkatkan kerusakan tubular tetapi mengurangi fibrosis ginjal pada nefropati obstruktif. J Am Soc Nephrol 15:674–686
60. Eymael J, Sharma S, Loeven MA, Wetzels JF, Mooren F, Florquin S, Deegens JK, Willemsen BK, Sharma V, van Kuppevelt TH, Bakker MA, Ostendorf T, Moeller MJ, Dijkman HB, Smeets B, van der Vlag J (2018) CD44 diperlukan untuk patogenesis glomerulonefritis bulan sabit eksperimental dan glomerulosklerosis segmental fokus yang kolaps. Ginjal Int 93:626–642
61. Midgley AC, Duggal L, Jenkins R, Hascall V, Steadman R, Phillips AO, Meran S (2015) Hyaluronan mengatur protein morfogenetik tulang-7-pencegahan yang bergantung dan pembalikan fenotipe myofibroblast. J Biol Chem 290:11218–11234
62. Leemans JC, Stokman G, Claessen N, Rouschop KM, Teske GJ, Kirschning CJ, Akira S, van der Poll T, Weening JJ, Florquin S (2005) TLR2 terkait ginjal memediasi cedera iskemia/reperfusi pada ginjal. J Clin Investasikan 115:2894–2903
63. Nastase MV, Zeng-Brouwers J, Beckmann J, Tredup C, Christen U, Radeke HH, Wygrecka M, Schaefer L (2018) Biglycan, pemicu baru perekrutan sel Th1 dan Th17 ke dalam ginjal. Matriks Biol 68-69:293–317
64. Göransson V, Johnsson C, Jacobson A, Heldin P, Hällgren R, Hansell P (2004) Akumulasi hyaluronan ginjal dan ekspresi sintase hyaluronan setelah cedera iskemia-reperfusi pada tikus. Transplantasi Nephrol Dial 19:823–830
65. Michael DR, Phillips AO, Krupa A, Martin J, Redman JE, Altaher A, Neville RD, Webber J, Kim MY, Bowen T (2011) Gen manusia hyaluronan synthase 2 (HAS2) dan antisense alami RNA menunjukkan terkoordinasi ekspresi dalam sel epitel tubulus proksimal ginjal. J Biol Chem 286:19523–19532
66. Colombaro V, Jadot I, Declèves AE, Voisin V, Giordano L, Habsch I, Malaisse J, Flamion B, Caron N (2015) Kurangnya hyaluronidases memperburuk cedera pasca-iskemik ginjal, pembengkakan, dan fibrosis. Ginjal Int 88:61–71
Aditya Kaul1, Kavya L. Singampalli1,2,3, Umang M. Parikh1, Lingyu1, Sundeep G.Keswani1, Xinyi Wang1
1. Laboratorium Perbaikan Jaringan Regeneratif, Divisi Bedah Anak, Departemen Bedah, Texas Children's Hospital/Baylor College of Medicine, Houston, TX 77030, USA
2. Program Pelatihan Ilmuwan Medis, Fakultas Kedokteran Baylor, Houston 77030, TX, AS
3. Departemen Bioengineering, Rice University, Houston 77030, TX, USAgram, Baylor College of Medicine, Houston 77030, TX, USA