Inaktivasi RPX1 di Arabidopsis Memberikan Resistensi Terhadap Plutella Xylostella Melalui Akumulasi Homoterpen DMNT
Dec 12, 2023
Abstrak
Hama tanaman lepidopteran Plutella xylostella menyebabkan kendala berat pada budidaya Brassica. Di sini, kami melaporkan peran baru RPX1 (resistensi terhadap P. xylostella) dalam resistensi terhadap hama ini di Arabidopsis thaliana. Mutan rpx1‐1 mengusir larva P. xylostella, dan memakan mutan rpx1‐1 sangat merusak struktur matriks peritrofik di usus tengah larva, sehingga berdampak negatif terhadap pertumbuhan dan kepompong larva. Resistensi ini dihasilkan dari akumulasi senyawa pertahanan, termasuk monoterpen (3E)−4,8‐dimetil‐1,3,7‐nonatriene (DMNT), akibat peningkatan regulasi PENTACYCLIC TRITERPENE SYNTHASE 1 (PEN1), yang mengkode a enzim biosintetik DMNT kunci. Infestasi dan luka P. xylostella menginduksi degradasi protein RPX1, yang dapat memberikan respons cepat terhadap infestasi serangga. Inaktivasi RPX1 dan ekspresi berlebih PEN1 tidak terkait dengan dampak negatif terhadap pertumbuhan tanaman tetapi memiliki produksi benih yang jauh lebih tinggi dibandingkan tipe liar dengan adanya infestasi P. xylostella. Studi ini menawarkan strategi baru untuk pemuliaan molekuler tanaman terhadap P. xylostella.

cistanche tubulosa-meningkatkan sistem kekebalan tubuh
KATA KUNCI
resistensi hama, metabolisme sekunder, emisi yang mudah menguap
1|PERKENALAN
Hama serangga tidak hanya mengurangi hasil panen tetapi juga mempengaruhi kualitas produk tanaman (Johnson & Züst, 2018; Wu et al., 2016; Zhao et al., 2016). Diantaranya, ngengat punggung berlian Plutella xylostella adalah hama lepidopteran berbahaya yang tersebar luas dan memakan tanaman silangan seperti kembang kol dan kubis, sehingga menyebabkan kerugian ekonomi yang sangat besar. Saat ini, dalam pengelolaan pertanian, pengendalian hama dengan menggunakan bahan kimia pertanian (misalnya pestisida) telah sangat berhasil dan banyak diterapkan, namun pendekatan ini menjadi bermasalah karena potensi pencemaran lingkungan dan ancaman terhadap kesehatan manusia (Shakeel dkk., 2017). Pendekatan alternatif terhadap produksi tanaman adalah penggunaan tanaman hasil rekayasa genetika yang memiliki ketahanan yang lebih baik terhadap hama, misalnya ekspresi Bacillus thuringiensis pada tanaman (Jouzani dkk., 2017) atau protein entomotoksik heterolog lainnya (Douglas, 2018). Upaya ekstensif telah dilakukan untuk mengidentifikasi pendekatan baru untuk mengendalikan P. xylostella di bidang pertanian; namun, gen yang efektif, pestisida alami, dan plasma nutfah yang resisten masih terbatas (Zhou & Jander, 2021). Melalui perlombaan senjata yang terus-menerus melawan serangga hama, tanaman telah mengembangkan berbagai kemampuan untuk memerangi serangan serangga. Oleh karena itu, tanaman mensintesis serangkaian metabolit pertahanan seperti benzoxazinoid (Handrick et al., 2016; Varsani et al., 2019), metil benzoat (Feng & Zhang, 2017), dan serotonin (Lu et al., 2018) sebagai respons terhadap cedera hama. Asam jasmonic (JA), juga disebut 'hormon luka', memainkan peran penting dalam berbagai respons kerusakan terkait luka yang dipicu oleh infestasi serangga (Lortzing & Steppuhn, 2016). Semakin banyak bukti menunjukkan bahwa JA berfungsi secara sinergis dan/atau antagonis dengan fitohormon lain, seperti asam salisilat (SA) dan etilen (Costarelli et al., 2020; Ma et al., 2019). Selain pertahanan langsung, tanaman yang rusak akibat serangan serangga melepaskan berbagai senyawa mudah menguap yang menarik musuh alami herbivora (Gols, 2014). Dari campuran kompleks yang mudah menguap ini, senyawa homoterpen (3E)−4,8‐dimetil‐1,3,7‐nonatriena (DMNT) dan (E, E) −4,8,12‐trimetil‐1,3,7, 11-tridecatetraene (TMTT) telah dilaporkan pada beberapa spesies tanaman seperti Arabidopsis (Lee et al., 2010; Sohrabi et al., 2015), padi (Li et al., 2018), jagung (Gouinguené et al., 2005 ; Richter et al., 2016) dan kapas (Liu et al., 2018). Beberapa penelitian juga menunjukkan bahwa DMNT bertindak sebagai molekul sinyal yang menginduksi pertahanan antiherbivora selama komunikasi tanaman-tanaman (Arimura et al., 2000; Meents et al., 2019). Misalnya, setelah mengalami kerusakan akibat mengunyah serangga, beberapa ubi jalar mengeluarkan DMNT, yang mengakibatkan induksi sistemik dari protease inhibitor (PI) pada tanaman ubi jalar di sekitarnya dan membuatnya tidak dapat dicerna oleh serangga (Meents et al., 2019). Hasil serupa juga diamati pada tanaman teh (Jing et al., 2020). Baru-baru ini, kami menemukan bahwa DMNT berperan dalam membunuh larva P. xylostella dengan mengganggu penghalang matriks peritrofik (PM) pada usus tengah serangga (Chen et al., 2021).
Pada tumbuhan tingkat tinggi, jalur biosintesis DMNT dan TMTT telah dikarakterisasi dengan baik melalui genetika terbalik dan analisis biokimia. Pada jagung, DMNT dan TMTT dihasilkan dari degradasi oksidatif (E)-nerolidol dan (E, E)-geranyl linalool oleh dua monooksigenase P450, CYP92C5 dan CYP92C6 (Richter et al., 2016). Pada kapas, dua gen CYP (GhCYP82L1 dan GhCYP82L2) bertanggung jawab atas konversi (E)-nerolidol menjadi DMNT dan (E, E)-geranyl linalool menjadi TMTT (Liu et al., 2018). Pada akar Arabidopsis, DMNT dikatalisis dari prekursor triterpen diol C30, cannabidiol, oleh sitokrom P450 monooksigenase yang dikodekan oleh gen spesifik akar CYP705A1 (Sohrabi et al., 2015). Sebuah penelitian yang menggunakan ragi sebagai organisme model telah menyajikan bukti bahwa cannabidiol diproduksi dari 2,3-oksidosqualene oleh cannabidiol synthase PEN1 (Xiang et al., 2006), dan ekspresi cannabidiol tersebut secara sinergis terkait dengan CYP705A1 (Sohrabi et al. ., 2015). Meskipun demikian, regulasi gen kunci dalam biosintesis DMNT sebagian besar masih belum diketahui. Gen RPX1 yang dijelaskan dalam penelitian ini mengkode protein pengikat tutup baru (CBP), yang merupakan anggota keluarga gen faktor inisiasi eukariotik 4E (eIF4E). Pada tumbuhan, keluarga eIF4E terdiri dari eIF4E1, eIF4E2, eIF(iso)4E, dan nCBP, yang memainkan peran penting dalam inisiasi terjemahan mRNA yang bergantung pada topi (Rhoads, 2009). Anggota keluarga eIF4E adalah sumber utama resistensi resesif terhadap virus kentang Y (PVY) – patogen paling berbahaya yang mempengaruhi hasil dan kualitas kentang, dan pemanfaatan teknologi CRISPR-Cas9 yang menargetkan gen eIF4E1 memperluas spektrum resistensi virus kentang Y dari Solanum tuberosum (Lucioli dkk., 2022). Demikian pula, pengeditan isoform eIF4E singkong nCBP-1 dan nCBP-2 yang dimediasi CRISPR/Cas9 mengurangi keparahan dan kejadian gejala yang disebabkan oleh penyakit corengan coklat singkong (Gomez et al., 2019). Selain itu, penelitian di Arabidopsis menunjukkan bahwa defisiensi nCBP berperan dalam membatasi pergerakan virus tanaman dari sel ke sel (Keima et al., 2017). Namun demikian, fungsi nCBP dalam pertahanan herbivora belum dilaporkan. Di sini, kami menggunakan pendekatan integratif untuk mengkarakterisasi secara fungsional gen Arabidopsis RPX1, yang memainkan peran penting dalam ketahanan tanaman terhadap P. xylostella. Hasil kami menunjukkan bahwa penghancuran RPX1 menghasilkan gen yang diekspresikan secara berbeda (DEG) dan akumulasi senyawa. Salah satu gen yang diregulasi adalah PEN1, yang merupakan kunci biosintesis DMNT. Infestasi mutan rpx1 dan akumulasi DMNT mempengaruhi struktur PM P. xylostella dan menyebabkan cacat perkembangan larva dan kematian. Bukti lebih lanjut menunjukkan bahwa infestasi dan luka P. xylostella menyebabkan degradasi protein RPX1, yang pada gilirannya dapat menyebabkan resistensi tanaman terhadap serangga.
2|BAHAN DAN METODE
2.1|Bahan tanaman dan kondisi pertumbuhan
Benih Arabidopsis dipesan dari Nottingham Arabidopsis Stock Center (NASC, http://Arabidopsis.info/). Benih disterilkan permukaannya, disemai pada media Murashige dan Skoog (MS), dan distratifikasi pada suhu 5 derajat dalam ruang pertumbuhan di bawah fotoperiode hari pendek (8 jam terang, 16 jam gelap) selama 3 hari. Mereka kemudian dipindahkan ke suhu 22 derajat di rumah kaca di bawah fotoperiode hari panjang (16 jam terang, 8 jam gelap) dengan pemeliharaan tanaman normal.
2.2|Eksperimen dan bioassay pilihan (preferensi) dan tanpa pilihan
Telur P. xylostella dibeli dari Perusahaan Henan Jiyuan Baiyun (Kucing: HJB004, dikembangkan pada tahun 2009, diperbanyak untuk penelitian ilmiah dalam lingkungan terkendali) dan diinkubasi dalam ruang pertumbuhan yang diatur pada suhu 26 derajat, 16 jam terang/8 jam gelap. Untuk percobaan pilihan, kami memindahkan tanaman Arabidopsis berumur 3 minggu (masing-masing delapan tanaman tipe liar dan tanaman mutan) ke dalam tangki uji yang dihubungkan ke setiap ujung tabung reaksi kaca, dan langkah percobaan selanjutnya dilakukan seperti yang dijelaskan sebelumnya ( Chen dkk., 2021). Larva instar keempat digunakan dan 15 larva dimasukkan dalam setiap ulangan percobaan.
Untuk percobaan tanpa pilihan, tanaman tipe liar dan mutan berumur 3 minggu dipindahkan ke cawan Petri terpisah dan semi terbuka yang berisi larva P. xylostella 15 s-instar dalam jumlah yang sama. Langkah selanjutnya dilakukan seperti yang dijelaskan sebelumnya (Chen et al., 2021).

manfaat cistanche untuk pria-memperkuat sistem kekebalan tubuh
2.3|Skrining mutan Arabidopsis yang resisten terhadap P. xylostella
Kami mengumpulkan 179 mutan penyisipan T-DNA Arabidopsis untuk skrining resistensi P. xilostalle. Mutan ditanam pada media MS dan ditransplantasikan ke dalam pot P7 (ukuran: 7 × 7 cm) dalam kondisi pertumbuhan hari panjang (22 derajat, 16 jam terang/8 jam gelap). Untuk menghindari potensi pengaruh lingkungan, kami memindahkan dan memutar pot setiap hari. Untuk penyaringan mutan awal, kami membuat dua ulangan dengan menumbuhkan masing-masing mutan dalam dua pot, dengan tanaman Col‐0 sebagai kontrol. Setelah pertumbuhan 2 minggu pasca tanam, semua mutan dilakukan uji preferensi larva P. xylostella instar ketiga dengan membandingkannya dengan Col‐0, seperti dijelaskan di atas. Mutan yang menunjukkan preferensi larva berbeda dari Col‐0 dianggap sebagai mutan yang resisten atau sensitif terhadap kandidat dan dipilih untuk validasi eksperimental dan studi fungsional lebih lanjut.
2.4|Konstruksi plasmid dan transformasi gen
Untuk konstruksi RPX1pro: RPX1, wilayah pengkodean genom RPX1 dengan urutan hulu 1,6 kb dan urutan hilir 1 kb diamplifikasi dengan PCR dari DNA genom yang diekstraksi dari Col‐0. Fragmen DNA yang telah dirakit diklon ke dalam vektor pGreenII‐0179 dan diubah menjadi mutan rpx1‐1 menggunakan metode floral dip (Clough & Bent, 1998). Untuk membuat RPX1pro: RPX1‐GFP, promotor RPX1 (1,6 kb), wilayah pengkodean, dan 1 kb 3′ sekuens yang tidak diterjemahkan diamplifikasi dengan PCR dari DNA genom Col‐0. Fragmen GFP diamplifikasi dari plasmid yang mengandung sekuens GFP. Fragmen DNA ini dirangkai menjadi vektor pGreenII‐0179 menggunakan metode potong-dan-ligasi dan kemudian diubah menjadi mutan rpx1-1. Untuk konstruksi 35Spro: RPX1‐FLAG, urutan pengkodean RPX1 diamplifikasi dengan PCR dari cDNA yang ditranskripsi terbalik dari Col‐0 mRNA. Fragmen PCR diklon menjadi vektor pCambia1300-FLAG menggunakan metode infus (Clontech) dan diubah menjadi Col-0. 35Spro: PEN1, 35Spro: MRN1 (MARNERAL SYNTHASE 1) dan 35Spro: THAS (THALIANA THALIANOL SYNTHASE 1): Urutan pengkodean gen-gen ini diamplifikasi dengan PCR dari cDNA Col-0, dan diikat ke dalam vektor pLGNL-35S. MicroRNA buatan (amiR) yang menargetkan PEN1 dirancang seperti dijelaskan sebelumnya (Schwab et al., 2006), diamplifikasi menggunakan plasmid pRS300 sebagai templat, dan diikat ke dalam versi modifikasi dari vektor pCambia1300m. Semua urutan primer tercantum dalam Informasi Pendukung: Tabel S1.
2.5|Uji aktivitas glutathione s-transferase (GST) dan sitokrom P450 (CYP450) pada larva P. xylostella
Setelah larva P. xylostella instar kedua diberi pakan bibit Col‐0 atau rpx1‐1 selama 72 jam, larva tersebut dikumpulkan dan digiling menjadi bubuk halus dalam nitrogen cair. Pengujian dilakukan dengan menggunakan GST (Perusahaan Biologi Nanjing Jiancheng, kucing: A004) dan kit analisis aktivitas CYP450 (Perusahaan Biologi Huabaitai Beijing, kucing: P450), sesuai dengan instruksi pabrik. Setiap pengujian memiliki tiga ulangan biologis, dan setiap ulangan terdiri dari 30 larva P. xylostella.
2.6|Tes Smurf
Bibit Col‐0 atau rpx1‐1 berumur tiga minggu digunakan untuk memberi makan larva P. xylostella instar kedua. Pengujian dilakukan seperti yang dijelaskan sebelumnya dengan sedikit modifikasi (Chen et al., 2021). Enam ulangan biologis digunakan, dan setiap ulangan berisi 15 larva P. xylostella.
2.7|Pengamatan mikroskopis struktur PM larva
Analisis anatomi struktur PM larva dan analisis penampang parafin usus larva dilakukan seperti yang telah dijelaskan sebelumnya (Chen et al., 2021).
2.8|Analisis ekspresi gen dan sekuensing transkriptome (RNA-seq)
Bibit Col‐{{0}} dan rpx1‐1 ditanam dalam kondisi pertumbuhan hari panjang (16 jam terang, 8 jam gelap) pada suhu 22 derajat. Bibit Col‐0 dan rpx1‐1 berumur dua minggu digunakan untuk pengurutan transkriptome. Setiap sampel berisi tiga ulangan biologis. Total RNA diekstraksi menggunakan RNAprep Pure Plant Kit (TIANGEN, nomor katalog: DP441). CDNA untai pertama disintesis melalui transkripsi terbalik menggunakan sistem One-Step RT (Takara Bio) sesuai dengan instruksi pabrik. qRT‐PCR dilakukan dengan primer spesifik gen yang tercantum dalam Informasi Pendukung: Tabel S1 pada instrumen Roche Light Cycler 480. Konstruksi dan pengurutan perpustakaan RNA-seq dilakukan menggunakan Biomarker (Beijing, Cina) pada platform Illumina HiSeq. Terakhir, kami menggunakan edgeR untuk melakukan analisis ekspresi diferensial (ambang batas perbedaan signifikan ditetapkan:|log2foldchange|Lebih besar dari atau sama dengan 1, p <0,05). Tiga ulangan biologis dilakukan untuk Col-0 dan rpx1-1, dan gen yang diekspresikan secara berbeda tercantum dalam Kumpulan Data S1.
2.9|Analisis ekstraksi dan kromatografi gas dan spektrometri massa (GC‐MS) DMNT dan DMNT‐ 2 H di Arabidopsis
Ekstraksi dan analisis DMNT dilakukan seperti yang dijelaskan sebelumnya dengan sedikit modifikasi (Sohrabi et al., 2015). Dalam pengujian, 2 g bibit Arabidopsis berumur 3 minggu digunakan untuk ekstraksi dan pengukuran DMNT.

cistanche tubulosa-meningkatkan sistem kekebalan tubuh
Klik di sini untuk melihat produk Cistanche Meningkatkan Imunitas
【Minta lebih lanjut】 Email:cindy.xue@wecistanche.com / Aplikasi WhatsApp: 0086 18599088692 / Wechat: 18599088692
2.10|Persiapan dan karakterisasi DMNT
DMNT disintesis seperti dijelaskan sebelumnya, dengan sedikit modifikasi (HJ Huang & Yang, 2007). Secara singkat, labu alas bulat 500 ml yang dilengkapi dengan batang pengaduk magnet berlapis Teflon diisi dengan 1 g (6,48 mmol) alkohol alilik dan 50 ml diklorometana. Larutan diaduk kuat-kuat dan diolah dengan 3,6 g mangan dioksida aktif, diikuti dengan penambahan 1−2 g oksidan setiap 2−3 jam hingga reaksi selesai. Produk tersebut kemudian digunakan untuk menghasilkan senyawa yang diinginkan melalui reaksi cerdas. Struktur dan kemurnian DMNT dikonfirmasi oleh pendekatan spektroskopi resonansi magnetik nuklir (NMR) 1 H dan 13C NMR.
2.11|Pengobatan DMNT terhadap P. xylostella
Pengujian dilakukan dalam cawan Petri yang dilapisi film plastik bening dengan banyak lubang. DMNT diencerkan dalam minyak parafin (Sigma-Aldrich) hingga dosis yang diinginkan (2,5 nmol/L−25 mol/L) dan disuntikkan ke dalam hijauan seperti dijelaskan dalam teks. Semua pengujian dilakukan dalam enam ulangan biologis, dengan masing-masing ulangan terdiri dari 15 larva. Pertumbuhan larva dicatat dengan dokumentasi fotografi. Hijauan yang diinjeksi dengan volume pelarut minyak parafin yang sama digunakan sebagai kontrol.
2.12|Pengukuran kandungan JA dan SA pada bibit Arabidopsis
Pengujian dilakukan oleh Perusahaan Teknologi Uji Yakin Nanjing. Bibit Col‐{{0}} dan rpx1‐1 berumur dua minggu diinfestasi dengan 15 larva s-instar P. xylostella, dengan bibit yang tidak terinfestasi sebagai kontrol. Kami menempatkan dua larva pada setiap tanaman dari kelompok infestasi untuk memastikan bahwa semua tanaman terinfestasi. Setelah 24 jam, sampel tanaman dikumpulkan dan segera dibekukan dalam nitrogen cair untuk penentuan JA dan SA. Sampel ditumbuk hingga menjadi bubuk halus dalam nitrogen cair dan diekstraksi dengan larutan ekstraksi isopropanol-air-asam klorida, diikuti dengan penambahan 8 ul asam salisilat deuterasi (D-SA) dan asam dihydro jasmonic (2HJA) (1 ug /ml masing-masing) sebagai standar internal. Diklorometana kemudian ditambahkan, dan larutan diaduk rata pada rotator selama 30 menit. Setelah fase organik bawah diperoleh dengan sentrifugasi pada 13,{{1{{20}}}} rpm selama 5 menit, dikeringkan dengan nitrogen, dilarutkan kembali dalam metanol (0 ,1% asam format), lalu disentrifugasi pada 13,000 g selama 10 menit. Terakhir, supernatan disaring melalui membran filter organik berukuran 0,22 μm dan dianalisis dengan kromatografi cair kinerja tinggi ditambah dengan spektrometri massa (HPLC-MS/MS). Semua langkah ekstraksi dilakukan pada suhu 4 derajat. Identitas JA dan SA ditentukan berdasarkan waktu puncak zat target dan rasio massa terhadap muatan (m/z) ion terkait. Kuantifikasi JA dan SA dilengkapi dengan menggunakan persamaan regresi linier yang diperoleh dari kurva standar internal. Untuk memperoleh kurva standar internal, larutan standar SA dan JA dengan gradien 0,1, 0,2, 0,5, 2, 5, 20, 50, dan 200 ng/ml dibuat menggunakan metanol (asam format 0,1%) sebagai pelarut, dan larutan standar internal dengan konsentrasi akhir 20 ng/ml ditambahkan ke plot sebenarnya. Anomali linearitas telah dihapus dari persamaan kurva standar. JA: y=0.853 x + 0.00152 (r=0.9958); SA: y=1,76 x + 0,0403 (r=0,9936).
2.13|Analisis transportasi DMNT di Arabidopsis
DMNT dilarutkan dalam DMSO dan ditambahkan ke media MS tanpa glukosa. Tanaman Arabidopsis berumur tiga minggu dipindahkan ke tabung reaksi dan akarnya direndam dalam media MS dengan DMNT atau DMSO (kontrol). Untuk mencegah kontaminasi, tabung reaksi ditutup dengan dua lapis parafilm, dan dibuat lubang kecil pada film tersebut, dimana akar tanaman ditempatkan dalam media MS untuk pertumbuhan lebih lanjut. Setelah 24 jam, akar tanaman yang diberi perlakuan dicabut dan daunnya digunakan untuk memberi makan P. xylostella, kemudian kelangsungan hidup larva dan tingkat kepompong dianalisis. Percobaan yang sama diulangi dengan media pertumbuhan yang mengandung DMNT berlabel 2 H atau DMSO sebagai kontrol. Setelah 24 jam inkubasi, daun dikumpulkan dan diproses untuk analisis GC-MS. Untuk mengesampingkan kemungkinan bahwa DMNT dapat menguap dari media DMNT ke bagian udara dan menyebabkan kontaminasi jejak, kelompok kontrol dibentuk dengan cara yang sama, tetapi akar tanaman dikubur dengan kapas lembab dan tidak direndam dalam media DMNT. Setelah 24 jam, bagian udara dipanen untuk bioassay lebih lanjut atau deteksi DMNT menggunakan GC-MS.

Manfaat cistanche tubulosa-memperkuat sistem kekebalan tubuh
2.14|Ekstraksi protein dan analisis imunobloting RPX1 di Arabidopsis setelah infestasi P. xylostella dan perawatan luka
Kami menyiapkan dua jenis perawatan pada RPX1pro transgenik: RPX1‐GFP dan 35Spro: RPX1‐FLAG Bibit Arabidopsis: infestasi dan luka P. xylostella. Untuk serangan larva, kami menanam bibit Arabidopsis selama 2 minggu dan memberikannya kepada larva instar kedua (tempatkan setidaknya satu larva pada setiap bibit), setelah 15−120 menit, larva dikeluarkan, dan bibit yang terinfestasi dipilih dan dipanen. percobaan lebih lanjut. Untuk meniru luka, kami menggunakan jarum suntik 1 ml untuk membuat lubang di setiap daun Arabidopsis. Setelah 15−120 menit pertumbuhan, bibit dikumpulkan.
Untuk menentukan apakah tanaman yang dipenuhi P. xylostella dapat menginduksi degradasi RPX1, kami menginfestasi bibit Col‐0 dengan P. xylostella selama 15−120 menit dan menguji pengaruhnya terhadap RPX1‐GFP pada tanaman transgenik. Semua sampel digiling menjadi bubuk dalam nitrogen cair, dan kemudian Kol‐0 yang terinfestasi dan tidak terinfestasi dalam jumlah yang sama dicampur secara terpisah dengan jaringan RPX1‐GFP dalam jumlah yang sama dan diinkubasi dalam larutan pada suhu 4 derajat selama 15 menit. Akhirnya, campuran disentrifugasi, dan supernatannya dilakukan analisis imunoblotting. Untuk analisis western blot, total protein diekstraksi dengan buffer ekstraksi protein [50 mmol/L Tris‐HCl pH8.0, 2,5 mmol/L EDTA pH8.0, 150 mmol/L NaCl, 1/1000 IGPAL ( v/v), 10% gliserol (v/v), 7% 2-merkaptoetanol (v/v), 1 mmol/L PMSF dan 1×proteinase inhibitor cocktail (Roche)]. Ekstrak protein kemudian digunakan untuk pemisahan PAGE dan analisis imunobloting dengan antibodi terhadap GFP (Roche, pengenceran: 1/1000) dan FLAG (Abcam, pengenceran: 1/2000). Gambar diambil menggunakan sistem analisis chemiluminescence Tanon 5200.
3|HASIL
3.1|Mutan Arabidopsis rpx1 telah meningkatkan ketahanan terhadap P. xylostella
Untuk mengidentifikasi gen yang terlibat dalam resistensi P. xylostella, kami mengumpulkan 179 mutan Arabidopsis dan menanamnya di rumah kaca yang terkendali. Dua minggu pasca-transplantasi, kami melakukan uji preferensi larva P. xylostella instar ketiga, sebagai respons terhadap setiap Col‐0 mutan dan tipe liar. Dalam percobaan penyaringan ini, 15 mutan menunjukkan pengaruh berbeda terhadap preferensi larva (data tidak ditampilkan), dan salah satunya dipilih untuk penelitian ini dan ditetapkan sebagai rpx1-1 (resistensi terhadap P. xylostella). RPX1 mengkodekan protein pengikat tutup baru (nCBP) (Ruud et al., 1998). Mutan penyisipan T-DNA adalah SALK_131503, dan ekspresi gen RPX1 menurun secara signifikan dibandingkan dengan tipe liar Col‐0 (Gambar 1a, Informasi Pendukung: Gambar S1a, Informasi Pendukung: Tabel S1). Ketika ditanam berdekatan, tanaman rpx1‐1 menunjukkan tingkat kerusakan yang jauh lebih rendah oleh larva P.xylostella dibandingkan dengan tanaman liar (Informasi Pendukung: Gambar S1b).
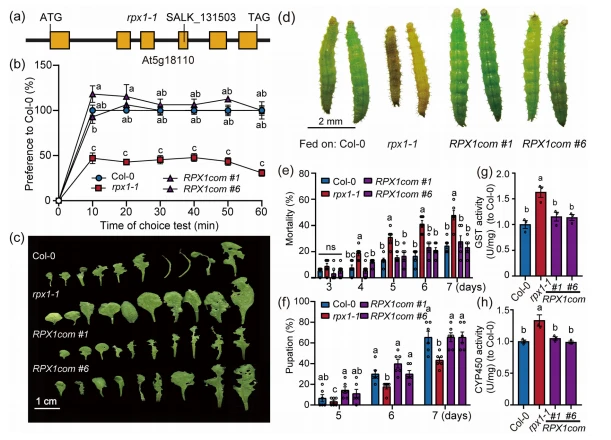
GAMBAR 1 Menonaktifkan RPX1 memberikan resistensi terhadap Plutella xylostella di Arabidopsis. (a) Struktur gen RPX1 (At5g18110). Kotak oranye menunjukkan ekson dan garis padat mewakili intron dan daerah yang belum diterjemahkan. Penyisipan T-DNA di SALK_131503, diberi nama rpx1‐1, berada pada ekson keempat. (b) Larva P. xylostella lebih suka bergerak menuju garis komplementasi Col‐0 dan RPX1 tipe liar (RPX1pro:RPX1/rpx1‐1, RPX1com), dibandingkan dengan rpx1‐ 1. (c) Perbandingan Kol‐ Daun 0, rpx1‐1, dan RPX1com dipenuhi P. xylostella. (d) Larva P. xylostella sangat terpengaruh oleh rpx1-1, dibandingkan dengan larva tipe liar Col-0 dan galur RPX1com, dalam hal perawakan, ukuran, dan warna larva. (e, f) Larva P. xylostella yang diberi pakan rpx1‐1 menunjukkan tingkat mortalitas (e) dan pupasi (f) yang lebih tinggi dibandingkan dengan galur tipe liar Col‐0 dan RPX1com. (g, h) Larva P. xylostella yang diberi pakan tanaman rpx1‐1 mengalami peningkatan aktivitas glutathione S-transferase (GST, g) dan sitokrom P450 (CYP450, h), sedangkan pada larva yang diberi pakan RPX1, aktivitasnya tidak menunjukkan perbedaan dengan aktivitas yang dilakukan. pada Kol‐0. Pada (b, e–h), data disajikan sebagai mean ± sem. Huruf yang berbeda pada setiap perlakuan menunjukkan perbedaan yang nyata (analisis varians satu arah, n=3 untuk b, g, h, n {{ 36}} untuk e, f).
Untuk menentukan mekanisme yang mendasari resistensi rpx1-1 terhadap infestasi P. xylostella, kami melakukan uji preferensi dan tanpa pilihan. Dalam percobaan preferensi, larva P. xylostella ditempatkan di tengah tabung reaksi kaca pada jarak yang sama dari bibit Col‐0 dan rpx1‐1, setelah 10–6{{11} } menit, secara signifikan lebih banyak larva yang berkumpul di sisi Col‐0 dibandingkan dengan sisi rpx1‐1 (Gambar 1b). Dalam percobaan tanpa pilihan, kami memberi makan bibit Col-0 dan rpx1-1 secara terpisah ke larva P. xylostella dan mengamati bahwa Col-0 kehilangan lebih banyak jaringan daun dibandingkan mutan rpx1-1 (Gambar 1c). Untuk memastikan bahwa RPX1 adalah gen penyebab resistensi yang diamati, kami memperkenalkan konstruksi komplementasi RPX1 ke dalam mutan rpx1-1. Garis pelengkap RPX1 ini (RPX1pro: RPX1/rpx1‐1, RPX1com) rentan terhadap infestasi P. xylostella, sebagaimana ditentukan oleh tes preferensi dan tanpa pilihan (Gambar 1b,c), yang menunjukkan bahwa RPX1 terlibat dalam resistensi Arabidopsis terhadap P. xylostella.
3.2|Pertumbuhan larva P. xylostella dipengaruhi secara negatif oleh mutasi rpx1-1
Untuk menyelidiki respon fisiologis P. xylostella terhadap pemberian pakan dengan mutan rpx1‐1, kami memeriksa perkembangan larva setelah pemberian pakan dengan tanaman Col‐0, rpx1‐1, dan RPX1com yang berumur 3 minggu. Larva yang diberi tanaman rpx1‐1 menunjukkan perkembangan yang sangat terganggu dalam hal ukuran tubuh. Warna tubuh larva juga berbeda dengan larva yang diberi tanaman Col‐0. Namun, kami tidak mengamati perubahan seperti itu pada larva yang diberi pakan bibit RPX1com (Gambar 1d). Analisis fenotipik lebih lanjut menunjukkan bahwa larva P. xylostella yang diberi pakan rpx1‐1 memiliki angka kematian yang jauh lebih tinggi dan tingkat kepompong yang lebih rendah dibandingkan larva yang diberi pakan Col‐0 atau RPX1com (Gambar 1e,f). Selain itu, larva yang diberi rpx1-1 menunjukkan aktivitas enzimatik GST dan CYP450 yang lebih tinggi, yang merupakan biomarker kerusakan organ atau jaringan (Cheng et al., 2018; Mikstacki et al., 2015), dibandingkan larva yang diberi pakan rpx1-1 Col-0 dan RPX1com (Gambar 1g,h), menunjukkan bahwa jaringan larva mungkin terluka karena pemberian rpx1-1.
3.3|Usus tengah larva P. xylostella rusak setelah diberi makan tanaman rpx1‐1
Kami mengamati bahwa larva yang diberi pakan rpx1‐1‐ memakan lebih sedikit jaringan tanaman dan menghasilkan kotoran yang jauh lebih sedikit dibandingkan larva yang diberi pakan Col‐0 tipe liar; oleh karena itu, kami berhipotesis bahwa pencernaan larva yang diberi rpx1-1 mungkin terpengaruh. Untuk memeriksa apakah terjadi kebocoran pada usus larva yang diberi rpx1‐1, kami melakukan 'uji Smurf'. Larva yang diberi pakan dengan galur Col‐0 dan RPX1com tipe liar membuang zat pewarna, dan secara visual tidak ada pewarna yang tersisa di tubuh larva, sedangkan larva yang diberi makan rpx1‐1‐ tetap mempertahankan sejumlah besar pewarna di dalam tubuh larva. usus tengah dan jaringan sekitarnya, dan larva membiru (Gambar 2a). Analisis kuantitatif terhadap larva biru ('Smurf') dan normal ('tidak ada Smurf') menunjukkan bahwa pemberian pakan pada tanaman rpx1‐1 menghasilkan lebih dari tiga kali lipat individu yang menunjukkan 'Smurf' dibandingkan dengan mereka yang diberi pakan Col‐{{ tipe liar 14}} atau RPX1com (Gambar 2b). Hasil ini menunjukkan bahwa pemberian rpx1-1 dapat menyebabkan lesi dan permeabilitas yang lebih tinggi pada usus tengah larva.
3.4|Matriks peritrofik P. xylostella dirusak oleh pemberian bibit rpx1-1
Kami selanjutnya membedah dan mengisolasi matriks peritrofik (PM) dari larva yang diberi bibit Col‐{{0}}, rpx1‐1, dan RPX1com untuk analisis struktural di bawah mikroskop stereo. Dibandingkan dengan PM utuh dan tegak lurus dari larva yang diberi pakan Col‐0 dan RPX1com, larva yang diberi pakan rpx1‐1 menunjukkan karakteristik kerusakan dan berbentuk tipis, longgar, dan terputus-putus (Gambar 2c–f). Untuk mengkonfirmasi lebih lanjut karakteristik kerusakan PM, kami memperoleh potongan melintang sampel larva. Hasil pewarnaan hematoxylin-eosin (HE) menunjukkan bahwa PM larva yang diberi Col-0 tebal dan utuh serta terdapat ruang ektoperitrofik (ES) antara PM dan sel epidermis usus tengah (Gambar 2g). Sebaliknya, PM di usus tengah larva yang diberi rpx1-1 sangat terganggu, dan isi usus dekat dengan dinding usus (tidak ada, Gambar 2h). Ketika larva diberi makan dengan bibit RPX1com, PM dan ES mereka tidak berubah secara signifikan (Gambar 2i,j). Hasil ini mengkonfirmasi bahwa knockdown RPX1 melukai PM larva P. xylostella.
3,5|Akumulasi kandungan DMNT pada rpx1‐1 menyebabkan resistensi terhadap larva P. xylostella
Untuk menyelidiki apakah knockdown RPX1 membentuk kembali metabolit Arabidopsis dan menyebabkan resistensi terhadap larva P. xylostella, kami membandingkan senyawa organik volatil (VOC) yang dilepaskan dari rpx1‐ 1 dan tanaman Col‐0 tipe liar. Empat VOC (Hexanol,3-ethyl-5methyl, Octance,2,6-dimethyl, Nonane,2,6-dimethyl, dan DMNT) diakumulasikan secara berbeda antara rpx1-1 dan Col-0 (Gambar 3a). Untuk membedah lebih lanjut mekanisme molekuler rpx1-1 pada resistensi P. xylostella, kami melakukan analisis RNA-seq. Dibandingkan dengan Col‐0, mutan rpx1‐1 menunjukkan 211 gen yang diekspresikan secara berbeda (DEG) (Informasi Pendukung: Kumpulan Data S1). Analisis pengayaan KEGG menunjukkan bahwa DEG ini memiliki lebih dari 2{57}} jalur metabolisme yang berbeda, termasuk biosintesis seskuiterpenoid dan triterpenoid, metabolisme asam alfa-linolenat, dan jalur metabolisme tirosin (Gambar 3b, Informasi Pendukung: Tabel S2). Khususnya, jalur yang diperkaya paling signifikan adalah biosintesis seskuiterpenoid dan triterpenoid, yang terdiri dari tiga DEG: At4g15340, At5g42600, dan At5g48010 (Gambar 3b, Informasi Pendukung: Gambar S2a – c). At4g15340 telah dilaporkan mengkode PEN1, suatu oksidosqualene siklase yang mengubah 2,3-oksidosqualena menjadi arabidiol dan mengarah pada sintesis DMNT bioaktif melalui CYP705A1 (Field & Osbourn, 2008; Sohrabi et al., 2015). At5g42600 mengkode mineral sintase 1 (MRN1), yang merupakan komponen kunci dalam biosintesis mineral. At5g48010 mengkodekan thalianol synthase (THAS), suatu enzim yang terlibat dalam biosintesis thalianol. Marneral dan thalianol telah dilaporkan terlibat dalam pemeliharaan pengembangan tanaman (Field & Osbourn, 2008; Go et al., 2012) (Informasi Pendukung: Gambar S3). Kami mempelajari potensi peran MRN1 dan THAS dalam resistensi serangga dengan menyelidiki preferensi, kematian, dan tingkat kepompong P. xylostella dengan memberi mereka makan dengan bibit Arabidopsis transgenik yang mengekspresikan MRN1 (35Spro: MRN1) dan THAS (35Spro: THAS) secara berlebihan (Mendukung Informasi: Gambar S4a,b). Tidak ada perbedaan signifikan yang terdeteksi antara kedua transgen dan tipe liar Col-0 (Informasi Pendukung: Gambar S4c–n), yang menunjukkan bahwa ketahanan serangga terhadap rpx1-1 kemungkinan besar tidak bergantung pada kedua gen ini.

GAMBAR 2 Inaktivasi RPX1 merusak struktur matriks peritrofik (PM) pada usus tengah larva. (a) Gambar representatif dari larva yang diberi pakan dengan garis Col‐0, rpx1‐1, dan RPX1com menunjukkan retensi pewarna, sebagaimana dibuktikan dengan tampilannya yang berwarna biru, seperti karakter kartun Smurf. (b) Kuantifikasi hasil ditunjukkan pada (a). Data disajikan sebagai mean ± sem; perbedaan huruf menunjukkan perbedaan nyata (analisis varians satu arah, n=6). (c – f) Ultrastruktur PM larva yang diberi makan dengan garis Col‐0 (c), rpx1‐1 (d), dan RPX1com (e, f). Perlu diperhatikan bahwa PM larva yang diberi pakan Col‐0 dan RPX1com berbentuk montok dan utuh, namun PM larva yang diberi pakan rpx1‐1 tipis, halus, dan terputus-putus di beberapa wilayah. (g – j) Potongan melintang dan pewarnaan hematoxylin-eosin menunjukkan kerusakan PM dari larva yang diberi pakan Col‐0 (g), rpx1‐1 (h), atau RPX1com line (i, j). [Gambar berwarna dapat dilihat di wileyonlinelibrary.com]
Pengayaan biosintesis terpenoid dalam analisis KEGG (Gambar 3b) dan akumulasi diferensial DMNT yang terdeteksi pada rpx1-1 (Gambar 3a) menunjukkan bahwa DMNT mungkin merupakan salah satu senyawa yang terlibat dalam resistensi tanaman terhadap P. xylostella. Mirip dengan laporan sebelumnya yang hampir tidak mendeteksi DMNT melalui analisis GC‐MS di Kol‐0 (Liu et al., 2018; Sohrabi et al., 2015), kita dapat mendeteksi sejumlah kecil DMNT pada Kol‐0 yang tidak terinfestasi (Gambar 4a,b). Sebaliknya, kadar DMNT sangat diperkaya (~8 ng/g) pada tanaman rpx1‐1, dan galur RPX1com menunjukkan kadar DMNT yang sangat rendah, mirip dengan tanaman Kol‐0 (Gambar 4). Selain itu, setelah infestasi P. xylostella, kadar DMNT meningkat (~20 ng/g) pada rpx1‐1, yang lebih tinggi dibandingkan pada galur Col‐0 dan RPX1com (Gambar 4) . Kami mensintesis DMNT in vitro menggunakan metode yang dimodifikasi (Chen et al., 2021). Konsisten dengan pengamatan sebelumnya (Chen et al., 2021), DMNT menekan pertumbuhan P. xylostella, sebagaimana dibuktikan dengan preferensi (2,5 μmol/L) dan kinerja tanpa pilihan (0,25–25 μmol/L) ( Informasi Pendukung: Gambar S5a,b). Selain itu, hasil pewarnaan HE menunjukkan bahwa PM larva kontrol tebal dan utuh (Informasi Pendukung: Gambar S5c), sedangkan PM larva yang diberi DMNT 2,5 mol/L selama 48 jam tipis dan terputus-putus di beberapa daerah (Informasi Pendukung: Gambar S5d). Secara keseluruhan, temuan kami menunjukkan bahwa mutasi rpx1-1 menyebabkan akumulasi DMNT, yang berkontribusi terhadap pembunuhan larva P. xylostella di Arabidopsis. JA dan SA merupakan metabolit sekunder tumbuhan yang berkaitan erat dengan cekaman biotik. Untuk menentukan apakah zat ini berkontribusi terhadap resistensi serangga terhadap rpx1-1, kami memeriksa tingkat JA dan SA dari Col-0 dan rpx1-1 sebelum dan sesudah infestasi oleh P. xylostella. Dalam kondisi yang tidak diobati, tidak ada perbedaan yang signifikan dalam kadar JA dan SA antara tanaman rpx1-1 dan Col-0 (Informasi Pendukung: Gambar S6), dan kadar kedua hormon tersebut meningkat secara signifikan pada 24 jam setelah infestasi dengan P. xylostella . Khususnya, setelah infestasi, konten SA secara signifikan lebih rendah di rpx1-1 dibandingkan dengan Col-0, sedangkan konten JA jauh lebih tinggi di rpx1-1 dibandingkan di Col-0 (Informasi Pendukung: Gambar S6).

GAMBAR 3 Perbandingan senyawa volatil dan ekspresi gen yang diperkaya secara berbeda antara Col‐0 dan rpx1‐1. (a) Senyawa volatil yang diperkaya secara berbeda dalam Col‐0 dan rpx1‐1 dideteksi dengan metode kromatografi gas-spektrometri massa (GC‐MS). Data disajikan sebagai mean ± sem; tanda bintang menunjukkan perbedaan yang signifikan (*p < 0.05, **p < 0.01, uji-t tidak berpasangan dua sisi). (b) Analisis transkriptomik Col-0 dan rpx1-1. Analisis KEGG tentang pengayaan jalur dari gen yang diekspresikan berbeda antara Col-0 dan mutan rpx1-1. Satu jalur yang diperkaya (panah merah) terkait dengan biosintesis seskuiterpenoid dan triterpenoid dan terdiri dari tiga gen, seperti yang ditunjukkan pada gambar. [Gambar berwarna dapat dilihat di wileyonlinelibrary.com]
3.6|RPX1 mengatur akumulasi DMNT dalam ketergantungan pada PEN1
Untuk menyelidiki kontribusi PEN1 dalam akumulasi DMNT yang diatur rpx1-1, kami membuat konstruksi yang mengandung miRNA buatan (PEN1amiR) dan mengubahnya menjadi mutan rpx1-1. Kami juga membuat konstruksi ekspresi berlebih PEN1, yang diubah menjadi Col‐0 (35pro: PEN1/Col‐{{10}}). Analisis ekspresi gen menunjukkan bahwa PEN1 dirobohkan (4‐7 kali lipat) pada PEN1amiR/rpx1‐1 dibandingkan dengan rpx1‐1, dan diekspresikan secara berlebihan (~2,5 kali) pada 35Spro: PEN1 dibandingkan dengan Col‐0 (Gambar 5a). Pada garis transgenik ini, ekspresi RPX1 tidak dipengaruhi oleh knockdown atau ekspresi berlebih PEN1 (Gambar 5b). Ketika diinfestasi dengan P. xylostella selama 6-24 jam, ekspresi PEN1 secara signifikan diregulasi dalam Col-0 dan rpx1-1, dan ekspresi PEN1 yang jauh lebih tinggi dicapai dalam rpx1-1 setelah 24 jam infestasi (Gambar 5c) . Selanjutnya, kami mengukur konten DMNT di Col‐0, rpx1‐1, PEN1amiR/rpx1‐1, dan 35Spro: PEN1/Col‐{{50}}. Tanpa infestasi P. xylostella, rpx1-1 menghasilkan tingkat DMNT yang lebih tinggi dibandingkan Col-0 (Gambar 5d,e,f,k,l), dan ketika PEN1 dirobohkan oleh microRNA buatan di rpx1-1 (PEN1amiR /rpx1‐1), level DMNT diturunkan regulasinya, menunjukkan level yang jauh lebih rendah dibandingkan rpx1‐1 (Gambar 5d,g,h,m,n). Setelah infestasi larva, tingkat DMNT pada bibit Col-0 dan rpx1-1 meningkat secara signifikan, namun pada bibit PEN1amiR/rpx1-1, tingkat DMNT tidak dapat diinduksi dan jauh lebih rendah dibandingkan pada rpx1-1 (Gambar 5d, g,h,m,n), menunjukkan bahwa PEN1 mungkin memainkan peran penting dalam biosintesis DMNT yang diatur RPX1, seperti yang diilustrasikan dalam Informasi Pendukung: Gambar S3. Konsisten dengan hal ini, DMNT terakumulasi dalam jumlah besar pada bibit 35Spro: PEN1/Col‐0 (Gambar 5d, i,j,o,p).

GAMBAR 4 Hilangnya RPX1 meningkatkan akumulasi dimetil-1,3,7-nonatriena (DMNT). (a) analisis kromatografi gas-spektrometri massa (GC-MS) DMNT pada garis Col‐0, rpx1‐1 dan RPX1com (RPX1pro:RPX1/rpx1‐1). Standar DMNT ditunjukkan di bagian bawah. (b) Kromatografi ion total (TIC) DMNT diambil dari Col‐0, rpx1‐1, dan RPX1com. (c) Konten DMNT meningkat pada mutan rpx1-1 tetapi kembali ke tingkat tipe liar pada tanaman transgenik RPX1com. Data disajikan sebagai mean ± sem; perbedaan huruf menunjukkan perbedaan nyata (analisis varians satu arah, n=3). [Gambar berwarna dapat dilihat di wileyonlinelibrary.com]
3.7|PEN1 berkontribusi membunuh P. xylostella di rpx1‐1
Mengingat pengamatan bahwa knockdown PEN1 dapat melemahkan akumulasi DMNT yang disebabkan oleh inaktivasi RPX1 (Gambar 5), kami melakukan bioassay pada knockdown PEN1 dan Arabidopsis transgenik ekspresi berlebih untuk menunjukkan peran biologisnya. Kami menemukan bahwa larva P. xylostella tidak menunjukkan preferensi terhadap tanaman amiR‐PEN1/rpx1‐1 dibandingkan dengan Col‐0 (Informasi Pendukung: Gambar S7). Sementara itu, larva P. xylostella yang diberi pakan PEN1‐amiR/rpx1‐1 menunjukkan angka kematian yang jauh lebih rendah dan tingkat pupasi yang lebih tinggi dibandingkan rpx1‐1, sedangkan larva yang diberi pakan 35Spro: PEN1/Col‐0 menunjukkan angka kematian yang lebih tinggi dan pupasi yang lebih rendah dibandingkan mereka yang diberi Col‐0 (Gambar 6a,b). Konsisten dengan hasil ini, percobaan 'uji Smurf' dan transeksi lebih lanjut menunjukkan bahwa PEN1‐amiR/rpx1‐1 memiliki usus dan PM yang normal dan utuh dibandingkan dengan larva yang diberi makan rpx1‐1 (Gambar 6c,d,g,h), dan ekspresi PEN1 yang berlebihan menyebabkan kerusakan parah pada usus tengah dan PM larva P. xylostella (Gambar 6c,d, i,j). Hasil ini menunjukkan bahwa knockdown PEN1 dapat menekan efek negatif pada pertumbuhan larva yang disebabkan oleh inaktivasi RPX1, sehingga memainkan peran penting dalam pengaruh racun yang diinduksi rpx1-1-pada larva P. xylostella.
3.8|DMNT mengangkut dari akar ke bagian udara Arabidopsis
PEN1 dilaporkan terutama diekspresikan pada akar Arabidopsis (AC Huang et al., 2019; Sohrabi et al., 2015) (Informasi Pendukung: Gambar S8a), yang berbeda dari hasil yang ditunjukkan pada bagian udara rpx1‐1 toksisitas terhadap P. xylostella dengan cara yang bergantung pada PEN1 (Gambar 6). Oleh karena itu, kami merumuskan hipotesis alternatif: tanaman mensintesis DMNT terutama di akar dan mengangkutnya ke bagian udara, yang meningkatkan resistensi terhadap serangga. Untuk menguji hipotesis ini, kami melakukan dua tes transportasi DMNT. Pada pengujian pertama (Gambar 7a), kami menginkubasi akar bibit Arabidopsis berumur 3‐ 3-minggu dalam media pertumbuhan tanaman cair yang mengandung 2,5 μmol/L DMNT, menggunakan DMSO sebagai kontrol. Setelah dikultur selama 24 jam, kami memotong daun Arabidopsis dan menawarkannya kepada larva P. xylostella. Dibandingkan dengan kontrol DMSO, daun dari tanaman yang diberi perlakuan DMNT menyebabkan kematian larva yang jauh lebih tinggi dan tingkat kepompong yang lebih rendah dibandingkan kontrol (Gambar 7b,c). Pada percobaan kedua yang bertujuan untuk mendapatkan validasi independen lebih lanjut terhadap transpor DMNT, kami memberi label DMNT dengan 2 H dan menambahkan DMNT‐ 2 H ke media pertumbuhan tanaman cair. Setelah 24 jam inkubasi, DMNT-2 H menjadi sangat kaya di daun (Gambar 7d–i). Untuk mengesampingkan kemungkinan bahwa DMNT dapat menguap dari media pertumbuhan cair ke udara dan mencemari bagian udara tanaman, kami membuat kontrol paralel, yang dilakukan dengan cara yang sama seperti pada Gambar 7a, kecuali bahwa akar Arabidopsis tidak direndam dalam cairan. media pertumbuhan. Hasilnya menunjukkan bahwa tidak ada DMNT‐ 2 H yang terdeteksi pada bagian udara tanaman (Informasi Pendukung: Gambar S8b,c). Oleh karena itu, kami mengusulkan agar DMNT berpindah dari akar, tempat produksinya, ke daun Arabidopsis, tempat penyebab kematian hama.

GAMBAR 5 PEN1 berperan penting dalam akumulasi dimetil‐1,3,7‐nonatriene (DMNT) pada rpx1‐1. (a) Analisis ekspresi PEN1 pada Col‐0, rpx1‐1, PEN1 knockdown pada latar belakang rpx1‐1 (PEN1‐amiR/rpx1‐1) dan overekspresi PEN1 (35Spro:PEN1/Col‐{{2{{ 22}}}}) baris. (b) Ekspresi RPX1 di Col‐{{30}}, rpx1‐1, PEN1‐amiR/rpx1‐1 dan 35Spro:PEN1/Col‐0. (c) Ekspresi PEN1 diinduksi oleh infestasi Plutella xylostella di Col‐0 dan rpx1‐1. (d) Perbandingan akumulasi DMNT antara Col‐0, rpx1‐1, PEN1‐amiR/rpx1‐1 dan 35Spro:PEN1/Col‐0. (e–j) analisis kromatografi gas‐spektrometri massa (GC‐MS) terhadap zat mudah menguap yang dipancarkan dari Col‐0 (e), rpx1‐1 (f), PEN1‐amiR/rpx1‐1 (g, h) dan 35Spro: baris PEN1/ Col‐0 (i, j). (k – p) TIC DMNT diambil dari jalur Col‐0 (k), rpx1‐1 (l), PEN1‐amiR/rpx1‐1 (m, n) dan 35Spro: PEN1/Col‐0 (o, p) , sesuai dengan data di (e–j). Pada (a – d), data disajikan sebagai mean ± sem; perbedaan huruf menunjukkan perbedaan nyata (analisis varians satu arah, n=3). [Gambar berwarna dapat dilihat di wileyonlinelibrary.com]
3.9|RPX1 terdegradasi oleh infestasi P. xylostella dan perawatan luka
Kami menunjukkan bahwa ekspresi PEN1 diregulasi dalam rpx1-1 dan bibit Arabidopsis yang dipenuhi larva P. xylostella (Gambar 5a,c), meningkatkan kemungkinan bahwa RPX1 juga dapat merespons infestasi larva. Untuk memvalidasi prediksi ini, kami menyelidiki potensi respons RPX1 terhadap infestasi P. xylostella. Analisis ekspresi gen menunjukkan bahwa RPX1 diekspresikan dalam jaringan yang berbeda (Informasi Pendukung: Gambar S9a), tetapi tidak memiliki respons yang signifikan terhadap infestasi larva 6–24 jam (Informasi Pendukung: Gambar S9b). Oleh karena itu, kami memeriksa kadar protein RPX1 pada tanaman transgenik RPX1pro: RPX1‐GFP dengan melakukan imunobloting. Hasilnya menunjukkan bahwa tanpa infestasi larva, RPX1‐GFP stabil selama 0‐12{{40}} menit; sebaliknya, setelah infestasi larva selama 15 menit, RPX1-GFP mulai terdegradasi; setelah 120 menit, protein RPX1‐GFP terus turun hingga sekitar 6% dari titik waktu mulai (Gambar 8a, Informasi Pendukung: Gambar S10a). Sebagai kontrol, pada bibit Arabidopsis yang mengandung transgen GFP, GFP relatif stabil setelah infestasi larva (Gambar 8b). Untuk mengesampingkan kemungkinan pengaruh tag GFP terhadap stabilitas RPX1, kami membuat tanaman RPX1 transgenik dengan tag FLAG (35Spro: RPX1‐FLAG) untuk melakukan eksperimen infestasi larva, yang menunjukkan hasil yang konsisten bahwa RPX1‐FLAG juga dapat terdegradasi oleh larva. infestasi, mirip dengan RPX1-GFP (Gambar 8c). Infestasi serangga sering kali menyebabkan luka pada tanaman, dan kerusakan fisik sebagian dapat meniru proses makan serangga herbivora. Untuk menunjukkan apakah luka dapat menyebabkan degradasi RPX1, kami menggunakan jarum untuk membuat lubang pada daun tanaman untuk meniru luka dan menemukan bahwa RPX1‐GFP terdegradasi setelah 30 menit perawatan (Gambar 8d, Informasi Pendukung: Gambar S10b). Untuk lebih memahami alasan degradasi RPX1 setelah infestasi P. xylostella, kami menginkubasi jaringan tanaman transgenik RPX1-GFP bersama-sama dalam larutan selama 15 menit dengan Col-0, yang telah diinfestasi oleh P. xylostella selama 15-120 menit , atau jaringan Col-0 tanpa infestasi. Analisis immunoblotting menunjukkan bahwa tingkat RPX1-GFP dari sampel yang diinkubasi dengan Col-0 yang sudah terinfestasi sebelumnya jauh lebih rendah dibandingkan sampel dengan Col-0 yang tidak terinfeksi (Gambar 8e), menunjukkan bahwa infestasi P. xylostella menginduksi beberapa faktor atau sinyal pada Col-0 yang dapat menyebabkan degradasi RPX1.
3.10|mutasi rpx1-1 memberikan keuntungan dalam perkembangan dan reproduksi tanaman
Ciri umum respons pertahanan spesifik herbivora adalah trade-off antara resistensi hama dan pertumbuhan serta reproduksi tanaman (Li et al., 2018). Untuk menentukan apakah genotipe pada lokus RPX1 tunduk pada pertukaran tersebut, kami membandingkan produksi benih pada mutan Col‐{{10}} dan rpx1‐1. Dengan tidak adanya infestasi P. xylostella, hasil benih per tanaman antara kedua genotipe adalah sama (Informasi Pendukung: Gambar S11). Sebaliknya, tanaman rpx1-1 dan Col-{17}} berumur 3 minggu terkena infestasi 15 s-instar P. xylostella hanya selama 72 jam mengurangi hasil akhir benih Col-0 sebanyak tiga kali lipat, sedangkan hasil benih pada rpx1-1 tidak terpengaruh secara signifikan. Selain itu, hasil benih RPX1com mirip dengan Col-0, tetapi jauh lebih rendah dibandingkan rpx1-1, menunjukkan bahwa inaktivasi RPX1 memberikan keuntungan dalam produksi benih setelah infestasi larva (Informasi Pendukung: Gambar S11). Kami juga menilai produksi benih di Arabidopsis transgenik 35Spro: PEN1 dan mengamati bahwa ekspresi berlebih dari PEN1 menghasilkan hasil benih yang lebih tinggi baik dalam kondisi yang terinfestasi larva maupun tidak terinfestasi (Informasi Pendukung: Gambar S11). Hasil ini menunjukkan bahwa mutasi rpx1-1 dan ekspresi PEN1 yang lebih tinggi memberikan resistensi terhadap P. xylostella tanpa adanya trade-off pertumbuhan yang terkait, menyoroti potensi RPX1 dan PEN1 dalam program pemuliaan molekuler yang bertujuan untuk meningkatkan produksi tanaman.

cistanche tubulosa-meningkatkan sistem kekebalan tubuh
4|DISKUSI
Hama secara drastis menurunkan hasil dan kualitas agronomi, sehingga menjadikan perlindungan tanaman sebagai prioritas dan tujuan jangka panjang bagi petani dan pemulia. Dalam penelitian ini, kami mengidentifikasi mutan Arabidopsis rpx1-1, yang menunjukkan resistensi tinggi terhadap P. xylostella, hama penting tanaman lepidopteran. Analisis kami mengungkapkan bahwa mutasi rpx1-1 menghasilkan tingkat transkrip PEN1 yang lebih tinggi, akumulasi DMNT, dan peningkatan ketahanan tanaman terhadap hama. Kami juga menunjukkan bahwa protein RPX1 dapat terdegradasi oleh infestasi larva dan pengobatan luka.

GAMBAR 6 PEN1 berkontribusi terhadap peningkatan resistensi rpx1-1 terhadap Plutella xylostella. (a, b) Transgen PEN1‐amiR secara signifikan mengurangi resistensi rpx1-1 terhadap infestasi P. xylostella, sementara 35Spro: PEN1 meningkatkan efek resistensi, seperti yang ditunjukkan oleh tingkat kematian (a) dan kepompong (b) larva P. xylostella . (c) Gambar representatif dari larva yang diberi pakan Col‐0, rpx1‐1, PEN1‐amiR/rpx1‐1, dan 35Spro: Bibit PEN1 menunjukkan retensi pewarna, dibuktikan dengan penampakannya yang berwarna biru, seperti kartun Smurf karakter. (d) Hasil kuantifikasi gambar ditunjukkan pada (c). (e–j) Potongan melintang dan pewarnaan hematoksilin-eosin menunjukkan kerusakan PM dari larva yang diberi pakan Col‐0 (e), rpx1‐1 (f), PEN1‐amiR/rpx1‐1 (g, h) dan 35Spro : bibit PEN1 (i,j). Data disajikan sebagai mean ± sem; perbedaan huruf pada setiap perlakuan menunjukkan adanya perbedaan nyata (a,b,d) (analisis varians satu arah, n=6). [Gambar berwarna dapat dilihat di wileyonlinelibrary.com]
Dalam tes tanpa pilihan, mutan rpx1-1 menunjukkan resistensi yang signifikan terhadap infestasi P. xylostella (Gambar 1c). Sebaliknya, larva P. xylostella yang diberi tanaman rpx1-1 menunjukkan gangguan perkembangan negatif yang parah (Gambar 1d,e). Fenotipe ini disebabkan oleh inaktivasi RPX1, karena garis komplementasi RPX1 (RPX1com) sama rentannya dengan tipe liar Col‐0 (Gambar 1c–e), mendukung kesimpulan bahwa RPX1 terlibat dalam resistensi hama. Selain membunuh larva, mutasi rpx1-1 juga mempunyai efek jangka panjang terhadap perkembangan larva, termasuk kepompong (Gambar 1f), yang menyebabkan berkurangnya reproduksi hama.

GAMBAR 7 Dimetil‐1,3,7‐nonatriene (DMNT) diangkut dari akar Arabidopsis ke daun. (a) Ilustrasi uji transpor DMNT menggunakan bibit Arabidopsis. DMNT dilarutkan dalam media cair Murashige dan Skoog. Setelah kultur selama 24-jam, akarnya dipotong, dan daunnya digunakan untuk memberi makan larva Plutella xylostella untuk menilai angka kematian dan tingkat kepompong. (b, c) DMNT, yang berpindah dari akar ke daun, mengakibatkan kematian yang lebih tinggi (b) dan tingkat kepompong yang lebih rendah (c) larva P. xylostella. (d–f) DMNT berlabel 2 H (DMNT‐ 2 H) diangkut dari akar ke daun. DMNT‐ 2 H dilarutkan dalam media MS cair seperti pada (a) selama 24 jam, kemudian daunnya dipanen untuk analisis GC-MS (e). DMSO digunakan sebagai kontrol (d). Standar DMNT‐ 2 H ditampilkan untuk referensi (f). (g – i) TIC DMNT-2 H diperoleh selama uji transportasi yang ditunjukkan pada (d – f). Data disajikan sebagai mean ± sem, pada (b, c) n=6, nilai p ditampilkan berdekatan dengan kolom histogram untuk menunjukkan perbedaan yang signifikan (uji t dua sisi tidak berpasangan). Perhatikan bahwa kontrol lebih lanjut untuk pengujian transportasi disertakan dalam Informasi Pendukung: Gambar S8. [Gambar berwarna dapat dilihat di wileyonlinelibrary.com]
Selain itu, uji preferensi menunjukkan bahwa mutan tipe liar Col‐{0}} dan rpx1‐1 mungkin mengeluarkan senyawa volatil yang berbeda; salah satunya adalah DMNT yang efektif mengusir hama (Gambar 1b, 3a, Informasi Pendukung: Gambar S5a). Berdasarkan hasil di atas, kami mengusulkan bahwa akumulasi DMNT pada rpx1-1 adalah salah satu penyebab keracunan serangga. Jalur pensinyalan JA dan SA dilaporkan terlibat dalam resistensi serangga (Costarelli et al., 2020; Lortzing & Steppuhn, 2016). Dalam penelitian ini, setelah 24 jam pemberian pakan serangga, kandungan JA dan SA pada mutan Col-0 dan rpx1-1 meningkat, dan peningkatan kandungan SA pada rpx1-1 secara signifikan lebih rendah dibandingkan pada Col-0, sedangkan peningkatan konten JA jauh lebih tinggi (Informasi Pendukung: Gambar S6), menunjukkan bahwa JA dan SA mungkin juga memainkan peran penting dalam resistensi rpx1-1 terhadap P. xylostella. Oleh karena itu, kami mengusulkan bahwa efek langsung dan tidak langsung dari rpx1-1 berkontribusi terhadap peningkatan resistensi Arabidopsis terhadap serangga.

GAMBAR 8 Degradasi protein RPX1 disebabkan oleh infestasi Plutella xylostella dan perawatan luka. (a) RPX1‐GFP dari RPX1pro: Tanaman transgenik RPX1‐ GFP terdegradasi setelah infestasi P. xylostella selama 15−120 menit. (b) Sebagai kontrol untuk (a), GFP sendiri dari 35Spro: Tanaman transgenik GFP tidak menunjukkan degradasi setelah serangan larva. (c) Bendera RPX1 dari 35Spro: Tanaman transgenik berbendera RPX1 terdegradasi karena infestasi larva. (d) RPX1‐GFP dari RPX1pro: Tanaman transgenik RPX1‐GFP terdegradasi dalam waktu 15−120 menit setelah perawatan luka. (e) RPX1‐GFP dari RPX1pro: Tanaman transgenik RPX1‐GFP terdegradasi ketika jaringan diinkubasi dalam larutan dengan jaringan dari tanaman Col-0 yang telah diinfestasi oleh P. xylostella selama 15−120 menit. Nilai di bawah pita imunoblotting menunjukkan kelimpahan protein relatif yang diukur menggunakan ImageJ. Semua percobaan ini telah diulang setidaknya tiga kali, dan hasil yang representatif telah ditunjukkan. Data eksperimen lebih lanjut dengan jalur transgenik independen ditunjukkan pada Informasi Pendukung: Gambar S10. [Gambar berwarna dapat dilihat di wileyonlinelibrary.com]
Kami menyajikan beberapa bukti yang menunjukkan bagaimana akumulasi DMNT yang dimediasi PEN{{0}} berkontribusi terhadap fungsi RPX1 dalam ketahanan tanaman terhadap P. xylostella. PEN1, gen kunci milik jalur biosintesis seskuiterpenoid dan triterpenoid, diidentifikasi dari analisis KEGG data RNA-seq dari mutan rpx1-1 (Gambar 3b), memberikan hubungan antara RPX1, PEN1, dan DMNT (Sohrabi et al. , 2015). Untuk mendukung DMNT sebagai salah satu senyawa penyebab yang membunuh larva hama, DMNT terakumulasi lebih tinggi pada mutan rpx1‐1 dibandingkan pada Col‐0 (Gambar 3a), tetapi level pada lini RPX1com dibalik menjadi Col‐0 ( Gambar 4a–c). Selain itu, DMNT yang disintesis secara kimia dapat mengusir dan membunuh larva P. xylostella (Informasi Pendukung: Gambar S5a,b), yang sejalan dengan hasil rpx1-1 (Gambar 1b,e). Selain itu, tanaman transgenik yang mengekspresi PEN1 secara berlebihan menghasilkan DMNT lebih dari empat kali lipat pada Kol-0 dan memberikan resistensi serupa terhadap P. xylostella seperti rpx1-1 (Gambar 5d, i,j,o,p, dan 6).
Yang penting, mengurangi tingkat transkrip PEN1 di rpx1-1 memblokir biosintesis DMNT (Gambar 5d,g,h,m,n) dan mengurangi efek pembunuhan pada larva P. xylostella, yang rentan terhadap infestasi P. xylostella (Gambar 6a,b ). Hasil gabungan tersebut menunjukkan bahwa mutasi PEN1 dapat menekan fungsi inaktivasi RPX1 dalam ketahanan hama. Lesi RPX1 menyebabkan kelimpahan PEN1 yang lebih tinggi (Gambar 5a), namun bagaimana tepatnya RPX1 mengatur PEN1 dan memediasi biosintesis DMNT memerlukan penelitian lebih lanjut. Karena RPX1 diprediksi sebagai protein pengikat tutup baru yang termasuk dalam keluarga eIF4E (Rhoads, 2009; Ruud et al., 1998), ada kemungkinan bahwa RPX1 dapat memengaruhi PEN1 dengan memengaruhi stabilitas mRNA atau efisiensi translasi proteinnya, yang akan menjadi faktor penting. topik dalam studi masa depan. Selain itu, perlu dicatat bahwa tingkat DMNT masih dapat diinduksi ke tingkat yang lebih tinggi oleh infestasi P. xylostella pada mutan rpx1-1 (Gambar 5d), menunjukkan bahwa mungkin ada beberapa jalur lain yang mengatur akumulasi DMNT yang tidak tergantung pada RPX1. DMNT telah terdeteksi pada berbagai spesies tanaman, seperti Arabidopsis (Sohrabi et al., 2015), kapas (Liu et al., 2018) dan jagung (Richter et al., 2016). Selain itu, hal ini memberikan perlindungan tidak langsung terhadap hama herbivora dengan menarik predator, sehingga tanaman dapat menghilangkan ancaman hama (Kappers et al., 2005; Lee et al., 2010; Li et al., 2018). Kami baru-baru ini melaporkan bahwa bahan ini dapat mengusir dan membunuh larva P. xylostella dengan merusak PM di usus tengah larva (Chen et al., 2021). Di sini, kami menemukan bahwa struktur PM dapat rusak parah ketika larva diberi makan bibit rpx1-1 atau PEN1 yang berekspresi berlebihan (Gambar 2c–j dan 6i,j). Hasil ini sejalan dengan temuan dalam percobaan pengobatan DMNT yang kami jelaskan sebelumnya (Chen et al., 2021), yang sekali lagi mendukung usulan bahwa akumulasi DMNT di rpx1‐1 mungkin menjadi salah satu faktor yang berkontribusi terhadap penolakan dan kematian hama. RPX1 termasuk dalam keluarga gen eIF4E (Rhoads, 2009) dan terlibat dalam pergerakan sel-ke-sel virus tanaman (Keima et al., 2017). Namun, apakah akumulasi DMNT berhubungan dengan resistensi virus pada tanaman masih belum jelas. PEN1 secara spesifik diekspresikan pada akar Arabidopsis, yang mengkatalisis biosintesis DMNT (Sohrabi et al., 2015).

cistanche tubulosa-meningkatkan sistem kekebalan tubuh
Secara konsisten dalam penelitian ini, kami mendeteksi ekspresi PEN1 yang tinggi di akar dan ekspresi yang sangat rendah di daun (Informasi Pendukung: Gambar S8a). Kami mengamati bahwa daun mutan rpx1-1 beracun bagi larva P. xylostella (Gambar 1), menunjukkan bahwa akumulasi DMNT dan resistensi hama yang terkait pada daun tidak dapat dijelaskan secara sederhana dengan ekspresi PEN1 yang sangat kecil di jaringan ini. Menariknya, kami menemukan bahwa DMNT dapat diangkut dari akar tanaman ke bagian udara, seperti yang ditunjukkan oleh uji transpor DMNT dan analisis GC-MS terhadap ekstrak daun dari tanaman yang diinkubasi dengan DMNT-2 H pada akarnya (Gambar 7). Bagaimana senyawa ini diangkut dalam tanaman masih belum jelas, dan ini mungkin menjadi topik untuk penyelidikan lebih lanjut. Tumbuhan mempunyai kemampuan toleransi dan melawan serangan serangga dengan berbagai cara. Di sini, dengan melakukan analisis immunoblotting tanaman transgenik RPX1pro: RPX1‐GFP dan 35Spro: RPX1‐FLAG, kami menemukan bahwa setelah infestasi P. xylostella, protein RPX1 dapat terdegradasi dengan cepat (Gambar 8a,c, Informasi Pendukung: Gambar S10a), sedangkan , pada tingkat ekspresi mRNA, RPX1 tetap tidak terpengaruh (Informasi Pendukung: Gambar S9b). Saat ini, bagaimana protein RPX1 terdegradasi masih belum jelas, namun data kami terutama menunjukkan bahwa mekanisme degradasi protein mungkin terlibat dalam jalur sinyal terjadinya luka (Gambar 8d, Informasi Pendukung: Gambar S10b).
Selain itu, Col‐0 yang telah terinfestasi oleh P. xylostella menginduksi degradasi RPX1‐GFP pada tanaman yang berbeda (Gambar 8e), menunjukkan bahwa infestasi P. xylostella dapat menyebabkan akumulasi sinyal pada tanaman yang, pada gilirannya, dapat menyebabkan degradasi RPX1. Akan menarik untuk mengetahui identitas sinyal di masa depan. Karakteristik degradasi RPX1 ini penting bagi tanaman, karena dapat menyebabkan akumulasi DMNT dan memberikan respons cepat terhadap kerusakan akibat hama (Informasi Pendukung: Gambar S3). Peningkatan toleransi tanaman terhadap hama sering kali mengorbankan kebugarannya. Pengamatan bahwa mutasi rpx1-1 menyebabkan peningkatan resistensi (Gambar 1) dan produksi benih yang lebih tinggi (Informasi Pendukung: Gambar S11) di Arabidopsis tanpa trade-off yang signifikan menawarkan jalan yang menjanjikan untuk merekayasa tanaman dengan ketahanan hama yang lebih tinggi. Misalnya, pengeditan genom melalui CRISPR-Cas9 adalah alat yang ampuh untuk perbaikan tanaman (Yang et al., 2017) yang memungkinkan terjadinya mutasi pada RPX1 dan berpotensi memperluas penerapannya pada berbagai tanaman.
REFERENSI
Arimura, G., Ozawa, R., Shimoda, T., Nishioka, T., Boland, W. & Takabayashi, J. (2000) Volatilitas yang diinduksi oleh herbivora menghasilkan gen pertahanan pada daun kacang Lima. Alam, 406, 512–515.
Chen, C., Chen, H., Huang, S., Jiang, T., Wang, C., Tao, Z. dkk. (2021) DMNT yang mudah menguap secara langsung melindungi tanaman terhadap Plutella xylostella dengan mengganggu penghalang matriks peritrofik di usus tengah serangga. eLife, 10, e63938.
Cheng, X., Hu, J., Li, J., Chen, J., Wang, H., Mao, T., dkk. (2018) Kerusakan kelenjar sutra dan respons transkripsi terhadap detoksifikasi gen terkait enzim Bombyx mori di bawah paparan phoxim. Kemosfer, 209, 964–971.
Clough, SJ & Bent, AF (1998) Floral dip: metode sederhana untuk transformasi Arabidopsis thaliana yang dimediasi Agrobacterium. Jurnal Tumbuhan, 16, 735–743.
Costarelli, A., Blanchet, C., Ederli, L., Salerno, G., Piersanti, S., Rebora, M. dkk. (2020) Asam salisilat yang diinduksi oleh pemberian makanan herbivora memusuhi pertahanan tanaman yang dimediasi asam jasmonat terhadap serangan serangga. Sinyal & Perilaku Tumbuhan, 15, e1704517.
Douglas, AE (2018) Strategi untuk meningkatkan ketahanan tanaman terhadap serangga hama. Tinjauan tahunan biologi tumbuhan, 69, 637–660.
Feng, Y. & Zhang, A. (2017) Wewangian bunga, metil benzoat, adalah pestisida hijau yang efisien. Laporan Ilmiah, 7, 42168.
Field, B. & Osbourn, AE (2008) Perakitan cluster gen mirip operon yang tidak tergantung pada diversifikasi metabolik pada tanaman yang berbeda. Sains, 320, 543–547.
Pergi, YS, Lee, SB, Kim, HJ, Kim, J., Park, HY, Kim, JK dkk. (2012) Identifikasi mineral sintase, yang penting untuk pertumbuhan dan perkembangan Arabidopsis. Jurnal Tumbuhan, 72, 791–804.
Gols, R. (2014) Pertahanan kimia langsung dan tidak langsung terhadap serangga dalam kerangka multitrofik. Tumbuhan, Sel & Lingkungan, 37, 1741–1752.
Gomez, MA, Lin, ZD, Moll, T., Chauhan, RD, Hayden, L., Renninger, K., dkk. (2019) Pengeditan isoform eIF4E singkong nCBP-1 dan nCBP-2 yang dimediasi CRISPR/Cas9 secara simultan mengurangi tingkat keparahan dan insiden penyakit garis coklat singkong. Jurnal Bioteknologi Tanaman, 17, 421–434.
Gouinguené, S., Pickett, JA, Wadhams, LJ, Birkett, MA & Turlings, TCJ (2005) Respon elektrofisiologi antena tiga tawon parasit terhadap zat mudah menguap yang disebabkan oleh ulat dari jagung (Zea mays), kapas (Gossypium herbaceum), dan kacang tunggak (Vigna unguiculata). Jurnal Ekologi Kimia, 31, 1023–1038.
Handrick, V., Robert, CAM, Ahern, KR, Zhou, S., Machado, RAR, Maag, D. dkk. (2016) Biosintesis senyawa pertahanan benzoxazinoid 8-O-metilasi pada jagung. Sel Tumbuhan, 28, 1682‐1700.
Huang, AC, Jiang, T., Liu, YX, Bai, YC, Reed, J., Qu, B. dkk. (2019) Jaringan metabolisme khusus secara selektif memodulasi mikrobiota akar Arabidopsis. Sains, 364, eaau6389.
Huang, HJ & Yang, WB (2007) Sintesis moenocinol dan analognya menggunakan BT-sulfon dalam olefinasi Julia-Kocienski. Surat Tetrahedron, 48, 1429–1433.
Jing, T., Du, W., Gao, T., Wu, Y., Zhang, N., Zhao, M. dkk. (2020) DMNT yang diinduksi herbivora yang dikatalisis oleh CYP82D47 memainkan peran penting dalam menginduksi resistensi herbivora yang bergantung pada JA pada tanaman teh di sekitarnya. Tumbuhan, Sel & Lingkungan, 44, 1178–1191.
Johnson, SN & Züst, T. (2018) Perubahan iklim dan hama serangga: perlawanan tidak sia-sia? Tren Ilmu Tanaman, 23, 367–369.
Jouzani, GS, Valijanian, E. & Sharafi, R. (2017) Bacillus thuringiensis: insektisida sukses dengan fitur dan kabar lingkungan baru. Mikrobiologi dan Bioteknologi Terapan, 101, 2691–2711.
Kappers, IF, Aharoni, A., van Herpen, TWJM, Luckerhoff, LLP, Dicke, M. & Bouwmeester, HJ (2005) Rekayasa genetika metabolisme terpenoid menarik pengawal ke Arabidopsis. Sains, 309, 2070–2072.
Keima, T., Hagiwara‐Komoda, Y., Hashimoto, M., Neriya, Y., Koinuma, H., Iwabuchi, N., dkk. (2017) Defisiensi isoform eIF4E nCBP membatasi pergerakan sel ke sel virus tanaman yang mengkode protein blok tiga gen di Arabidopsis thaliana. Laporan Ilmiah, 7, 39678.
Lee, S., Badieyan, S., Bevan, DR, Herde, M., Gatz, C. & Tholl, D. (2010) Volatil monoterpen bunga dan yang diinduksi herbivora dibiosintesis oleh enzim P450 tunggal (CYP82G1) di Arabidopsis . Prosiding National Academy of Sciences, 107, 21205–21210.
Li, B., Förster, C., Robert, CAM, Züst, T., Hu, L., Machado, RAR, dkk. (2018) Evolusi konvergen dari peralihan metabolisme antara resistensi kutu daun dan ulat pada sereal. Kemajuan Sains, 4, eaat6797.
Liu, D., Huang, X., Jing, W., An, X., Zhang, Q., Zhang, H. dkk. (2018) Identifikasi dan analisis fungsional dua enzim P450 Gossypium hirsutum yang terlibat dalam biosintesis DMNT dan TMTT. Jurnal Bioteknologi Tanaman, 16, 581–590.
Lortzing, T. & Steppuhn, A. (2016) Sinyal jasmonat pada tumbuhan membentuk ekologi interaksi tumbuhan-serangga. Opini Terkini dalam Ilmu Serangga, 14, 32–39.
Lu, H., Luo, T., Fu, H., Wang, L., Tan, Y., Huang, J., dkk. (2018) Resistensi padi terhadap serangga hama dimediasi oleh penekanan biosintesis serotonin. Tumbuhan Alam, 4, 338–344.
Lucioli, A., Tavazza, R., Baima, S., Fatyol, K., Burgyan, J. & Tavazza, M. (2022) Penargetan CRISPR‐Cas9 pada gen eIF4E1 memperluas spektrum resistensi virus kentang Y dari Solanum tuberosum L.cv. keinginan. Perbatasan dalam Mikrobiologi, 13, 873930.
Ma, F., Yang, X., Shi, Z. & Miao, X. (2019) Perbincangan silang baru antara respons jalur etilen‐ dan asam jasmonat terhadap serangga penghisap penusuk dalam beras. Ahli Fitologi Baru, 225, 474–487.
Meents, AK, Chen, SP, Reichelt, M., Lu, HH, Bartram, S., Yeh, KW dkk. (2019) DMNT yang mudah menguap secara sistemik menginduksi pertahanan antiherbivora langsung yang tidak bergantung pada jasmonat pada daun tanaman ubi jalar (Ipomoea batatas). Laporan Ilmiah, 9, 17431.
Mikstacki, A., Zakerska‐Banaszak, O., Skrzypczak‐Zielinska, M., Tamowicz, B., Szalata, M. & Slomski, R. (2015) Glutathione S-transferase sebagai indikator toksisitas dalam anestesi umum: genetika dan fungsi biokimia. Jurnal Anestesi Klinis, 27, 73–79.
Rhoads, RE (2009) eIF4E: anggota keluarga baru, mitra pengikat baru, peran baru. Jurnal Kimia Biologi, 284, 16711–16715.
Richter, A., Schaff, C., Zhang, Z., Lipka, AE, Tian, F., Köllner, TG dkk. (2016) Karakterisasi jalur biosintetik untuk produksi homoterpen volatil DMNT dan TMTT di Zea mays. Sel Tumbuhan, 28, 2651–2665.
Ruud, KA, Kuhlow, C., Goss, DJ & Browning, KS (1998) Identifikasi dan karakterisasi protein pengikat tutup baru dari Arabidopsis thaliana. Jurnal Kimia Biologi, 273, 10325–10330.