FOXO Mengatur Ekspresi Peptida Antimikroba Dan Meningkatkan Fagositosis Hemosit pada Imunitas Antibakteri Udang
Aug 31, 2023
Abstrak
Invertebrata mengandalkan imunitas bawaan, termasuk imunitas humoral dan seluler, untuk melawan infeksi patogen. Penelitian sebelumnya menunjukkan bahwa faktor transkripsi kotak forkhead O (FOXO) berpartisipasi dalam respon imun mukosa mamalia dan regulasi imun humoral usus invertebrata. Namun, apakah FOXO terlibat dalam regulasi imunitas sistemik dan seluler pada invertebrata masih belum diketahui. Dalam penelitian ini, kami mengidentifikasi FOXO dari udang (Marsupenaeus japonicus) dan menemukan bahwa FOXO tersebut diekspresikan pada tingkat yang relatif basal pada udang normal, namun diregulasi secara signifikan pada udang yang ditantang oleh Vibrio anguillarum. FOXO memainkan peran penting dalam menjaga homeostasis hemolimfa dan mikrobiota usus dengan mempromosikan ekspresi Relish, faktor transkripsi jalur defisiensi imun (IMD) untuk ekspresi peptida antimikroba (AMP) pada udang. Kami juga menemukan bahwa infeksi patogen mengaktifkan FOXO dan menginduksi translokasi nuklirnya dengan mengurangi aktivitas AKT serin/treonin kinase. Di dalam nukleus, FOXO yang teraktivasi secara langsung mengatur ekspresi gen target Amp dan Relish terhadap infeksi bakteri. Lebih lanjut, FOXO diidentifikasi terlibat dalam imunitas seluler dengan mempromosikan fagositosis hemosit melalui peningkatan regulasi ekspresi reseptor pemulung fagositosis C (Src), dan dua GTPase kecil, Rab5 dan Rab7, yang terkait dengan perdagangan fagosom ke lisosom. di sitoplasma. Secara keseluruhan, hasil kami menunjukkan bahwa FOXO memberikan efeknya pada homeostasis hemolimf dan mikrobiota enterik dengan mengaktifkan jalur IMD pada udang normal, dan secara langsung atau tidak langsung meningkatkan ekspresi AMP dan meningkatkan fagositosis hemosit terhadap patogen pada udang yang terinfeksi bakteri. Studi ini mengungkapkan perbedaan fungsi FOXO dalam imunitas antibakteri mukosa (lokal) dan sistemik invertebrata.
manfaat suplemen cistanche-cara memperkuat sistem kekebalan tubuh
Klik di sini untuk melihat produk Cistanche Meningkatkan Imunitas
【Minta lebih lanjut】 Email:cindy.xue@wecistanche.com / Aplikasi WhatsApp: 0086 18599088692 / Wechat: 18599088692
Perkenalan
Protein keluarga O faktor transkripsi kotak forkhead (FOXOs) terlibat dalam berbagai proses biologis penting organisme, termasuk pengaturan siklus sel, perbaikan DNA yang rusak, kekebalan anti-kanker, dan pengaturan masa hidup [1,2]. Mamalia memiliki empat protein FOXO yang berbeda (FOXO1, FOXO3, FOXO4, dan FOXO6); namun, invertebrata hanya memiliki satu FOXO, yang juga dikenal sebagai Daf-16 di Caenorhabditis elegans [3]. Aktivitas transkripsi FOXO diatur oleh beberapa jenis modifikasi pasca-translasi, seperti fosforilasi, asetilasi, metilasi, dan ubiquitinasi [4]. Modifikasi ini mempengaruhi translokasi nuklir FOXO atau keluar dari nukleus, dan interaksinya dengan ko-represor dan koaktivator, yang dapat meningkatkan atau menurunkan aktivitas FOXO dan memediasi berbagai fungsi biologisnya [5,6]. Setelah aktivasi, FOXO berpartisipasi dalam banyak fungsi fisiologis dengan mengatur transkripsi berbagai gen target [7]. FOXO diaktifkan oleh berbagai rangsangan ekstraseluler, termasuk faktor pertumbuhan, sitokin, dan hormon [8]. Sinyal pertumbuhan, seperti insulin atau faktor pertumbuhan mirip insulin 1 (IGF-1), berinteraksi dengan reseptor jalur insulin dan mengaktifkan pensinyalan fosfatidylinositol 3-kinase (PI3K), yang menyebabkan fosforilasi FOXO oleh serin/treonin kinase, protein kinase B (AKT) [9]. FOXO terfosforilasi mentranslokasi dari nukleus ke sitosol, atau mencegah translokasi dari sitosol ke nukleus, di mana ia berada di mana-mana, yang menyebabkan degradasi oleh proteasome [10]. Sebaliknya, dengan tidak adanya sinyal pertumbuhan eksternal, jalur pensinyalan PI3K-AKT menjadi tidak aktif, dan FOXO yang tidak terfosforilasi bertranslokasi ke dalam nukleus untuk mendorong transkripsi gen target (11). FOXO juga berpartisipasi dalam respons imun bawaan invertebrata sebagai anti-bakteri dan anti-virus [12,13]. Aktivasi kronis FOXO di usus Drosophila yang menua menekan ekspresi protein pengenalan peptidoglikan SC2 (regulator negatif jalur defisiensi imun (IMD)) dan merusak homeostasis imun usus [14]. FOXO secara langsung mengatur gen antimikroba peptida (AMP) dalam jaringan epitel Drosophila yang tidak terinfeksi sebagai respons terhadap stres kelaparan, yang tidak tergantung pada jalur imunitas bawaan yang responsif terhadap patogen [15]. Namun, infeksi patogen juga dapat menginduksi enterosit FOXO untuk memasuki nukleus dari sitoplasma langsung di usus Drosophila [12]. Regulasi AMP yang bergantung pada FOXO juga terjadi pada jaringan epitel mamalia, menunjukkan bahwa hal ini secara evolusioner dilestarikan pada hewan (16). Beberapa penelitian menunjukkan bahwa FOXO diaktifkan oleh patogen atau stimulasi sitokin dalam respon imun mukosa [17]. Translokasinya ke nukleus dan pengikatan pada promotor gen targetnya distimulasi oleh jalur mitogen-activated protein (MAP) kinase dan dihambat oleh jalur PI3K/AKT. Gen target FOXO termasuk molekul pemberi sinyal pro-inflamasi, molekul adhesi, dan reseptor kemokin (17). Apakah FOXO terlibat dalam respons imun sistemik terhadap patogen masih belum jelas. Mempromosikan ekspresi AMP melawan patogen merupakan mekanisme penting imunitas bawaan humoral pada invertebrata [18]. Pada imunitas bawaan Drosophila, jalur Tol dan IMD terlibat dalam regulasi ekspresi AMP, dan AMP memainkan peran penting dalam eliminasi patogen yang menyerang [19-21]. Mirip dengan kekebalan serangga, jalur Toll, IMD, dan Janus kinase (JAK)/transduser sinyal dan aktivator transkripsi (STAT) terlibat dalam regulasi ekspresi AMP pada krustasea [22,23]. Apakah FOXO dapat mengatur ekspresi AMP secara independen dari jalur Tol, IMD, dan JAK/STAT terhadap infeksi patogen pada krustasea memerlukan klarifikasi. Selain imunitas humoral, invertebrata juga mengandalkan imunitas seluler untuk menjalankan fungsi imunitas bawaan melawan infeksi patogen. Fagositosis oleh hemosit adalah salah satu mekanisme penting untuk imunitas seluler melawan infeksi patogen [24]. Penelitian sebelumnya telah menemukan bahwa autophagy yang dimediasi FOXO1-diperlukan untuk pengembangan sel pembunuh alami (NK) [25]. Selain itu, FOXO terlibat dalam mempromosikan fagositosis bakteri oleh neutrofil [26]. Meskipun tidak ada sel kekebalan khusus pada krustasea, seperti sel NK atau neutrofil, hemosit udang dapat memberikan kekebalan bawaan sistemik terhadap infeksi bakteri patogen melalui fagositosis [27]. Namun, apakah FOXO berpartisipasi dalam fagositosis patogen hemosit pada udang masih belum jelas. Budidaya udang merupakan salah satu industri dengan pertumbuhan tercepat di dunia dalam memproduksi protein hewani dan telah memberikan kontribusi yang signifikan dalam memenuhi peningkatan permintaan protein hewani di seluruh dunia. Saat ini produksi udang global kurang lebih 4,88 juta ton dengan nilai sekitar 39 miliar USD [28]. Namun, memelihara hewan dalam jumlah besar secara bersamaan akan mengakibatkan stres pada hewan, yang memfasilitasi patogen, termasuk bakteri dan virus, penggandaan dan penyakit klinis, yang mengakibatkan kerugian ekonomi yang besar bagi industri [29]. Studi tentang mekanisme kekebalan udang dapat memberikan strategi baru untuk pencegahan dan pengendalian penyakit [30]. Dalam penelitian ini, kami mengidentifikasi FOXO pada udang kuruma (Marsupenaeus japonicus). Setelah ekspresi Foxo knockdown, diikuti tantangan Vibrio anguillarum, kami menemukan bahwa kemampuan pembersihan bakteri dan tingkat kelangsungan hidup udang menurun secara signifikan. Penelitian lebih lanjut menunjukkan bahwa FOXO meningkatkan ekspresi AMP secara langsung atau tidak langsung, dan meningkatkan fagositosis bakteri pada udang. Kemungkinan mekanisme efek FOXO terhadap infeksi patogen pada udang dianalisis.
cistanche tubulosa-meningkatkan sistem kekebalan tubuh
Hasil
FOXO diekspresikan pada tingkat basal pada udang yang tidak ditantang dan diregulasi pada udang yang ditantang dengan V. anguillarum
Dari sekuensing transkriptom hemosit M. japonicus, kami memperoleh sekuens cDNA Foxo full-length (nomor akses GenBank: MW080526). Perbandingan domain menunjukkan bahwa protein FOXO yang diprediksi memiliki domain Forkhead (FH), yang mirip dengan Homosapiens FOXO termasuk FOXO1, FOXO3, FOXO4, dan FOXO6, dan memiliki fosforilasi AKT yang serupa (Gambar S1A). Hasil analisis filogenetik menunjukkan bahwa FOXO dibagi menjadi dua kelompok yaitu FOXO vertebrata dan invertebrata, dan FOXO udang dikelompokkan pada cabang invertebrata pada pohon filogenetik (Gambar S1B). Mirip dengan FOXO manusia [31], FOXO udang memiliki situs modifikasi fosforilasi ekstraseluler terregulasi kinase (ERK) dan situs modifikasi asetilasi CREB Binding Protein (CBP), tetapi tidak memiliki situs modifikasi deasetilasi sir tuin 1 (SIRT1) dan terminal N c-JUN situs modifikasi fosforilasi kinase (JNK) (Gambar S2). Antibodi poliklonal yang mengenali FOXO udang dibuat menggunakan domain FH rekombinan dari FOXO yang diekspresikan dalam Escherichia coli (Gambar 1A). Analisis distribusi jaringan FOXO pada tingkat mRNA dan protein mengungkapkan bahwa FOXO diekspresikan di semua jaringan yang diuji (Gambar 1B). Perjalanan waktu ekspresi FOXO dalam hemosit dan usus udang yang ditantang oleh V. anguillarum dianalisis menggunakan qPCR dan western blotting. Hasilnya menunjukkan bahwa FOXO diregulasi dalam hemosit dan usus pada tingkat mRNA (Gambar 1C dan 1D) dan pada tingkat protein (Gambar 1E dan 1F). Hasil ini menunjukkan bahwa FOXO terlibat dalam respon terhadap infeksi V. anguillarum dan mendorong kami untuk mengeksplorasi fungsi FOXO dalam imunitas udang.
FOXO berpartisipasi dalam regulasi homeostasis hemolimfa dan mikroflora usus pada udang sehat
Untuk mengeksplorasi fungsi FOXO dalam hemolimf dan homeostasis mikroflora usus pada udang, dilakukan interferensi RNA dan analisis jumlah bakteri. Hasil penelitian menunjukkan bahwa ekspresi Foxo menurun secara signifikan pada udang Foxo-RNAi (Gambar 2A dan 2B). Efek di luar target Foxo RNAi juga dianalisis dengan mendeteksi ekspresi gen keluarga Fox lainnya (termasuk Foxk2 dan Foxn3). Hasilnya menunjukkan bahwa knockdown Foxo tidak menurunkan level ekspresi Foxk2 atau Foxn3 (Gambar S3A – S3C). Dengan menggunakan uji imunositokimia western blotting dan fluoresen, kami selanjutnya mengamati distribusi subseluler FOXO di usus dan hemosit udang yang ditantang oleh bakteri setelah Foxo dibungkam. Hasil penelitian menunjukkan bahwa dibandingkan dengan kelompok dsGfp, kadar FOXO dalam nukleus menurun secara signifikan pada udang Foxo-RNAi, bahkan jika udang tersebut terinfeksi oleh V. anguillarum (Gambar S3D–S4E'). Semua hasil di atas menunjukkan bahwa uji Foxo RNAi kami secara spesifik dapat membungkam Foxo di hemosit dan usus (termasuk di sitoplasma dan nukleus). Selanjutnya, kami menganalisis jumlah bakteri di hemolimfa dan usus setelah Foxo dirobohkan pada udang dalam kondisi normal (tanpa tantangan bakteri). Hasil penelitian menunjukkan bahwa jumlah bakteri di hemolimfa dan usus meningkat secara signifikan setelah ekspresi Foxo berhasil diturunkan (Gambar 2C dan 2D). Kami menganalisis lebih lanjut tingkat kelangsungan hidup udang Foxo-RNAi tanpa tantangan bakteri, dan hasilnya menunjukkan bahwa tingkat kelangsungan hidup udang Foxo-knockdown menurun secara signifikan dibandingkan dengan kontrol (Gambar 2E). Untuk lebih memverifikasi hasil ini, kami menganalisis tingkat kelangsungan hidup udang Foxo-RNAi yang diobati dengan antibiotik dan hasilnya menunjukkan bahwa dibandingkan dengan kelompok dsGfp, tingkat kelangsungan hidup udang bebas kuman tidak menurun secara signifikan (Gambar 2F). Semua hasil menunjukkan bahwa FOXO berperan dalam homeostasis mikrobiota in vivo (termasuk hemolimf dan mikrobiota enterik) pada udang dalam kondisi normal.

manfaat suplemen cistanche-meningkatkan kekebalan tubuh
FOXO berpartisipasi dalam regulasi homeostasis hemolimfa dan mikroflora usus dengan mempromosikan ekspresi Relish dan Amp pada udang sehat
Penelitian sebelumnya menunjukkan bahwa udang yang sehat mengandung jumlah bakteri yang rendah namun stabil dalam sirkulasi hemolimfa, dan jumlah bakteri yang tinggi meskipun jumlah konstan dalam saluran pencernaan, dan efektor imun, seperti peptida antimikroba (AMP) yang diatur oleh faktor nuklir kappa B (NF). Jalur -κB) dan spesies oksigen reaktif (ROS) yang diatur oleh jalur oksidase ganda (DUOX), memainkan peran penting dalam homeostasis hemolimfa dan mikrobiota usus [32-34]. Untuk mengeksplorasi mekanisme keterlibatan FOXO dalam regulasi homeostasis hemolimfa dan mikroflora usus dalam kondisi normal, pertama-tama kami mendeteksi distribusi subseluler FOXO dalam hemosit dan usus dalam kondisi normal. Hasil penelitian menunjukkan lemahnya sinyal FOXO pada inti hemosit udang dan sel usus dalam kondisi normal (Gambar 3A dan 3B), menunjukkan bahwa sedikit FOXO diaktivasi oleh mikrobiota in vivo pada udang dalam kondisi normal. Ekspresi AMP diatur oleh jalur IMD di usus Drosophila [35]. Oleh karena itu, kami berasumsi bahwa faktor transkripsi Relish mungkin merupakan gen target FOXO. Kami mendeteksi ekspresi mRNA dari Relish, faktor transkripsi jalur IMD, pada hemosit dan usus udang setelah penghancuran Foxo. Hasilnya menunjukkan bahwa ekspresi Relish menurun secara signifikan pada udang Foxo-knockdown (Gambar 3C dan 3D), dan hasil serupa diperoleh pada tingkat protein (Gambar 3E dan 3E'). Hasilnya menunjukkan bahwa FOXO dapat meningkatkan ekspresi Relish dan mengaktifkan jalur IMD. Untuk memastikan bahwa FOXO berpartisipasi dalam hemo limfe dan homeostasis saluran cerna melalui pensinyalan IMD, diperoleh udang bebas kuman (Gambar 3F) dan aktivasi RELISH serta ekspresi AMP terdeteksi. Dibandingkan dengan kontrol, jumlah FOXO dan RELISH dalam inti sel usus dan hemosit menurun secara signifikan (Gambar 3G dan 3H). Sementara itu, ekspresi AMP, termasuk Crustins (CrusI-2 hingga 5) dan faktor Anti-lipopolisakarida (Alf A1, B1, C1, D1 dan E1), yang kemungkinan diatur oleh FOXO dan/atau RELISH disaring pada kuman -udang bebas, dan hasilnya menunjukkan bahwa ekspresi CrusI-3, Alf-B1 dan Alf-C1 menurun secara signifikan pada sel hemosit dan usus udang (Gambar 3I dan 3J). Mengingat bahwa ekspresi Alf-B1 dan Alf C1 diatur oleh jalur IMD [36], hasil ini menunjukkan bahwa FOXO berpartisipasi dalam regulasi homeostasis hemolimfa dan saluran pencernaan dalam kondisi normal melalui jalur IMD untuk meningkatkan ekspresi Alf-B1 dan Alf C1. AMP.

Gambar 1. FOXO diregulasi pada udang yang ditantang oleh V. anguillarum. (A) Ekspresi rekombinan domain FH FOXO pada E. coli dan western blotting untuk mendeteksi FOXO menggunakan antibodi poliklonal terhadap FOXO yang dibuat pada kelinci. Jalur 1, total protein E. coli dengan Foxo-pGEX4T-1. Jalur 2, total protein bakteri setelah induksi IPTG. Jalur 3, FOXO rekombinan yang dimurnikan. Jalur 4, FOXO pada usus udang yang tidak diberi perlakuan dideteksi menggunakan western blotting. M, Penanda massa molekul protein. (B) Distribusi jaringan Foxo pada tingkat mRNA (panel atas) dan protein (panel bawah) masing-masing dideteksi oleh RT-PCR dan western blotting. ACTB adalah singkatan dari -aktin. (C, D) Pola ekspresi mRNA Foxo dalam hemosit (C) dan usus (D) dianalisis dengan qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen. (E, F) Pola ekspresi protein FOXO dalam hemosit (E) dan usus (F) dideteksi dengan western blotting. Hasil analisis statistik dari tiga ulangan ditunjukkan pada panel bawah. Pita pada western blot didigitalkan menggunakan perangkat lunak ImageJ dengan memindai pita dari tiga pengulangan independen. Tingkat ekspresi relatif FOXO/-aktin dinyatakan sebagai rata-rata ± SD, dan nilai udang kontrol ditetapkan sebagai satu. Bilah kesalahan pada gambar menunjukkan SD (tiga ulangan).
FOXO diaktifkan pada udang oleh tantangan V. anguillarum dan berpartisipasi dalam pembersihan patogen hemolimfa dan usus
Dilaporkan bahwa FOXO dapat diaktifkan oleh stimulasi bakteri atau sitokin dan ditranslokasi ke nukleus untuk mengatur ekspresi gen target tertentu pada mamalia (17). Untuk mendeteksi apakah FOXO diaktifkan pada udang yang ditantang oleh bakteri, distribusi subseluler FOXO di usus udang dianalisis menggunakan western blotting. Hasil penelitian menunjukkan bahwa jumlah FOXO dalam sitoplasma sel usus menurun secara bertahap dari 2 hingga 4 jam pasca tantangan V. anguillarum (Gambar 4A). Sebaliknya, jumlah FOXO dalam inti sel usus meningkat secara signifikan setelah infeksi V. anguillarum (Gambar 4B). Untuk menganalisis peran FOXO dalam imunitas sistemik, uji imunositokimia fluoresen digunakan untuk mengamati translokasi nuklir FOXO dalam hemosit udang 2 jam pasca stimulasi larum tahunan. Kami menemukan bahwa translokasi FOXO yang dipicu oleh bakteri ke dalam nukleus meningkat secara signifikan tetapi tidak ada perubahan nyata pada udang yang terkena PBS (Gambar 4C dan 4C'). Untuk mengeksplorasi apakah FOXO yang ditranslokasi nuklir terlibat dalam pembersihan patogen, kami menganalisis jumlah bakteri dalam hemolimfa dan usus pada udang Foxo-knockdown pada 6 jam setelah tantangan bakteri. Kami menemukan bahwa setelah Foxo dirobohkan, jumlah bakteri di hemolimfa dan usus meningkat secara signifikan dibandingkan dengan kelompok kontrol (Gambar 4D). Selain itu, tingkat kelangsungan hidup udang Foxo-knockdown yang terinfeksi V. anguillarum menurun secara signifikan dibandingkan dengan kontrol (Gambar 4E). Hasil ini menunjukkan bahwa FOXO diaktifkan dalam sel enterik dan hemosit, dan menunjukkan bahwa FOXO berpartisipasi dalam respon imun lokal dan sistemik terhadap infeksi bakteri.

Gambar 2. FOXO berpartisipasi dalam respon imun antibakteri usus (lokal) dan sistemik. (A, B) Efisiensi Foxo-RNAi dalam hemosit (A) dan usus (B) udang, ditentukan menggunakan qPCR (A) dan western blotting (B). Analisis tanggal qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen. Bilah kesalahan menunjukkan SD. (C) Deteksi bakteri hemolimfa udang Foxo knockdown dengan kultur LB padat (tiga kali pengulangan); injeksi dsGfp digunakan sebagai kontrol. Rasio pengencerannya adalah 1:10. (D). Jumlah bakteri hemolimfa dan usus pada udang knockdown Foxo dan udang injeksi dsGfp tanpa tantangan bakteri. (E). Tingkat kelangsungan hidup udang Foxo-RNAi tanpa tantangan bakteri. injeksi dsGfp digunakan sebagai kontrol. (F). Tingkat kelangsungan hidup udang Foxo-RNAi yang diobati dengan antibiotik. injeksi dsGfp digunakan sebagai kontrol. Normal: udang tipe liar tidak diobati dengan antibiotik.

Gambar 3. Sejumlah basal FOXO bertranslokasi ke dalam inti hemosit dan sel usus meningkatkan ekspresi Relish dan kemudian mengaktifkan jalur IMD untuk mengatur hemolimf dan homeostasis mikrobiota usus dalam kondisi normal. (A) Imunositokimia digunakan untuk mendeteksi distribusi subseluler FOXO dalam hemosit udang normal. Bilah skala=20 μm. Cy: Sitoplasma; Nu: Inti. (B) Western blotting digunakan untuk mendeteksi distribusi subseluler FOXO dalam sel usus dari udang normal dan udang yang terinfeksi V. anguillarum. (C) Ekspresi Relish pada tingkat mRNA terdeteksi pada hemosit udang setelah Foxo dirobohkan oleh qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen. (D) Ekspresi Relish pada tingkat mRNA di usus udang setelah knockdown Foxo dideteksi oleh qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen. (E) Tingkat RELISH dideteksi menggunakan western blotting pada udang setelah knockdown Foxo. (E') Tiga replika panel E didigitalkan menggunakan perangkat lunak ImageJ. (F) Jumlah bakteri hemolimfa dan usus pada udang 24 jam pasca pengobatan antibiotik. (G) FOXO pada nukleus dideteksi menggunakan western blotting pada hemosit dan usus udang 24 jam pasca perawatan dengan antibiotik. (H) RELISH dalam nukleus dideteksi menggunakan western blotting pada hemosit dan usus udang pada 24 jam pasca perawatan dengan antibiotik. (I, J) Ekspresi Amps dalam hemosit (I) dan usus (J) udang bebas kuman ditentukan oleh qPCR menggunakan -aktin dan Ef-1 sebagai gen referensi internal. Udang normal (injeksi H2O) digunakan sebagai kontrol.
Penelitian sebelumnya menunjukkan bahwa aktivitas transkripsi FOXO diatur oleh modifikasi fosforilasi dan bahwa AKT serin/treonin kinase mengatur aktivitas faktor transkripsi Forkhead dengan memfosforilasinya dan menghambat translokasi yang tidak jelas [9,37]. Untuk mengetahui apakah peningkatan FOXO dalam nukleus setelah infeksi bakteri patogen dipengaruhi oleh AKT, pertama-tama kami mendeteksi kandungan FOXO dalam sitoplasma dan nukleus dengan western blotting setelah knockdown Akt udang. Hasil penelitian menunjukkan bahwa jumlah FOXO dalam inti hemosit dan sel usus meningkat secara signifikan setelah penurunan ekspresi Akt (Gambar 5A dan 5B) pada udang 2 jam pasca infeksi V. anguillarum (Gambar 5C dan 5C'). Untuk memverifikasi hasil percobaan, kami juga menggunakan uji imunositokimia untuk mengamati distribusi subseluler FOXO dalam hemosit udang setelah knockdown Akt. Hasil penelitian menunjukkan bahwa FOXO meningkat secara signifikan pada inti hemosit ketika Akt telah merobohkan 2 jam pasca infeksi V. anguillarum (Gambar 5D dan 5D'). Untuk mengetahui apakah infeksi patogen mempengaruhi aktivitas AKT, kami mendeteksi perubahan fosforilasi AKT setelah infeksi patogen menggunakan antibodi p-AKT (Ser473) manusia (situs fosforilasi AKT udang adalah Ser486) dan menemukan bahwa tingkat AKT terfosforilasi menurun secara signifikan pada tahun 2017. hemosit dan usus udang setelah 30 menit infeksi V. anguillarum (Gambar 5E dan 5F). Hasil ini menunjukkan bahwa infeksi patogen dapat menurunkan tingkat AKT terfosforilasi, yang menghambat aktivitas enzim dan menurunkan kemampuan AKT untuk memfosforilasi FOXO. FOXO yang tidak terfosforilasi memasuki nukleus dan menginduksi ekspresi gen targetnya. angka tersebut menunjukkan SD.

ekstrak cistanche
Infeksi patogen menurunkan aktivitas AKT dan menginduksi translokasi nuklir FOXO
FOXO memberikan pertahanan kekebalan terhadap bakteri yang menyerang dengan mengatur ekspresi peptida antimikroba pada udang yang terinfeksi bakteri
Untuk mengeksplorasi mekanisme dimana FOXO mempengaruhi respon terhadap infeksi bakteri pada udang, pertama-tama kami mengidentifikasi gen efektor imun yang diatur oleh FOXO. Setelah Foxo berhasil dirobohkan pada hemosit dan usus udang dengan atau tanpa tantangan V. anguillarum, tingkat ekspresi CrusI-3, Alf-B1, Alf-C1, dan Alf-E1 menurun secara signifikan pada udang yang dibungkam dibandingkan dengan kelompok kontrol (Gambar 6A dan 6B). Untuk memverifikasi hasil lebih lanjut, kami juga mendeteksi ekspresi empat AMP setelah Akt dirobohkan. Hasil penelitian menunjukkan bahwa ekspresi keempat AMP meningkat secara signifikan 6 jam pasca infeksi V. anguil larum dibandingkan dengan kelompok kontrol (Gambar 6C dan 6D). Dibandingkan dengan AMP yang diregulasi (termasuk Alf-B1, dan Alf-C1) dalam kondisi normal (Gambar 3I dan 3J), gen tambahan AMP (CrusI-3, Alf-E1) juga diregulasi pada udang yang terinfeksi V. .anguillarum (Gambar 6A dan 6B). Penelitian kami sebelumnya menunjukkan bahwa RELISH mempromosikan ekspresi Alf-B1 dan Alf-C1 pada udang [36]. Hasil ini menunjukkan bahwa FOXO mungkin secara langsung mengatur ekspresi AMP, seperti CrusI-3 dan Alf-E1, terlepas dari jalur pensinyalan IMD. Untuk mengkonfirmasi hipotesis tersebut, uji ChIP dilakukan untuk mendeteksi apakah FOXO dapat berikatan dengan promotor Alf-E1. Urutan promotor Alf-E1 diperoleh (Gambar S4) dan situs pengikatan FOXO diprediksi (Gambar 6E). Hasil ChIP menunjukkan bahwa FOXO dapat berikatan dengan promotor Alf-E1 (Gambar 6F). Hasil ini menunjukkan bahwa FOXO juga berpartisipasi dalam imunitas antibakteri dengan secara langsung mengatur ekspresi AMP pada udang.

Gambar 4. FOXO ditranslokasi ke dalam nukleus pada udang yang ditantang oleh V. anguillarum. (A, B) Pola distribusi FOXO dalam sitoplasma (A) dan nukleus (B) sel usus udang ditantang oleh bakteri, yang dianalisis menggunakan western blotting (panel bawah A dan B). Pita western blotting didigitalkan menggunakan perangkat lunak ImageJ dengan memindai pita dari tiga kali pengulangan. Tingkat ekspresi relatif FOXO/-aktin atau FOXO/Histone 3 dinyatakan sebagai rata-rata ± SD, dan nilai udang kontrol ditetapkan sebagai satu. (C) Translokasi nuklir FOXO dalam hemosit udang 2 jam pasca-V. tantangan anguillarum dideteksi menggunakan uji imunositokimia fluoresen. Injeksi PBS digunakan sebagai kontrol. Bilah skala=20 μm. (C') Analisis statistik panel C Kolokalisasi inti FOXO dan DAPI dalam hemosit dianalisis dengan perangkat lunak WCIF ImageJ. (D) Jumlah bakteri pada hemolimfa dan usus udang Foxo-knockdown setelah injeksi V. anguillarum; Injeksi dsGfp pada udang setelah injeksi bakteri digunakan sebagai kontrol. (E) Tingkat kelangsungan hidup udang Foxo-RNAi yang terinfeksi V. anguillarum. injeksi dsGfp digunakan sebagai kontrol.
FOXO mempromosikan fagositosis hemosit terhadap bakteri dengan mempromosikan ekspresi SRC
Penelitian sebelumnya telah melaporkan bahwa FOXO berinteraksi langsung dengan daerah promotor CXCR2 dan CD11b untuk mengatur fagositosis neutrofil pada mamalia [26]. Untuk menguji apakah FOXO dikaitkan dengan fagositosis hemosit pada kekebalan antibakteri udang, kami memeriksa tingkat fagositosis setelah gangguan dengan Foxo menggunakan metode yang berbeda. Setelah Foxo dirobohkan, laju fagositik dan indeks fagositik pada kelompok Foxo-knockdown secara signifikan lebih rendah dibandingkan kelompok kontrol (dsGfp) (Gambar 7A dan 7A'). Kami juga menggunakan flow cytometry untuk mengukur laju fagositik hemosit setelah Foxo dibungkam. Hasilnya menunjukkan bahwa laju sitosis fag pada kelompok Foxo-RNAi juga menurun secara signifikan dibandingkan dengan kelompok dsGfp (Gambar 7B dan 7B'). Untuk lebih memvalidasi hasil ini, kami juga memeriksa tingkat fagositik setelah knockdown Akt. Hasilnya menunjukkan bahwa dibandingkan dengan kelompok kontrol, laju fagositik dan indeks fagositik meningkat secara signifikan (Gambar 7C dan 7C'). Hasil ini menunjukkan bahwa FOXO meningkatkan fagositosis hemosit pada udang. Untuk mengeksplorasi bagaimana FOXO meningkatkan fagositosis hemosit pada udang, kami mendeteksi ekspresi gen yang dilaporkan sebelumnya terlibat dalam fagositosis udang. Reseptor pemulung kelas B (SRB) dan kelas C (SRC) dilaporkan terlibat dalam fagositosis hemosit [38,39]. Kami menemukan bahwa tingkat ekspresi mRNA Src, bukan Srb, menurun secara signifikan setelah Foxo dibungkam dalam hemosit dan usus (Gambar 7D dan 7E), sedangkan ekspresi Src meningkat secara signifikan setelah knockdown Akt pada udang (Gambar 7F). Hasil serupa diperoleh pada tingkat protein (Gambar 7G dan 7G'). Hasil ini menunjukkan bahwa FOXO meningkatkan fagositosis hemosit patogen pada udang dengan meningkatkan ekspresi SRC.
FOXO mempromosikan ekspresi RAB5 dan RAB7 selama fagositosis pada udang
Penelitian sebelumnya telah menunjukkan bahwa GTPase kecil, RAB5 dan RAB7, adalah pengatur utama pengangkutan vesikel yang baru diendositosis ke endosom awal dan akhir [40]. RAB5 adalah pengatur utama peristiwa fusi awal dan merupakan penanda endosom awal [41,42]. RAB7 diperlukan untuk fusi fagosom-lisosom akhir dan merupakan penanda endosom akhir [43]. Untuk mengeksplorasi apakah RAB5 dan RAB7 terlibat dalam pembersihan patogen pada udang, pertama-tama kami menganalisis pola ekspresi Rab5 dan Rab7 dan menemukan bahwa dua GTPase kecil diregulasi pada udang yang ditantang dengan bakteri (Gambar S5A-S5D). Kami menganalisis lebih lanjut tingkat kelangsungan hidup udang Rab5-RNAi dan Rab7-RNAi setelah tantangan bakteri, dan hasilnya menunjukkan bahwa tingkat kelangsungan hidup udang knockdown Rab5 dan Rab7 menurun secara signifikan dibandingkan dengan kontrol ( Gambar S5E dan S5F). Hasil ini menunjukkan bahwa RAB5 dan RAB7 memainkan fungsi penting dalam resistensi terhadap bakteri patogen. Untuk mengeksplorasi apakah RAB5 dan RAB7 terlibat dalam fagositosis yang dimediasi FOXO, kami memeriksa tingkat ekspresi mRNA dari Rab5 dan Rab7 setelah gangguan pada ekspresi Foxo pada udang. Hasil penelitian menunjukkan bahwa tingkat ekspresi Rab5 dan Rab7 menurun secara signifikan pada hemosit dan usus (Gambar 8A dan S6A). sedangkan ekspresi Rab5 dan Rab7 meningkat secara signifikan setelah Akt pada udang dirobohkan (Gambar 8B). Untuk lebih mengkonfirmasi hasil di atas, kadar protein RAB5 dan RAB7 pada udang knockdown Foxo atau Akt juga terdeteksi. Dibandingkan dengan kelompok injeksi dsGfp, kadar RAB5 dan RAB7 juga menurun secara signifikan pada hemosit dan usus pada udang Foxo-knockdown tetapi meningkat secara signifikan pada udang Akt-knockdown pada 2 jam pasca stimulasi oleh V. anguillarum (Gambar 8C – 8D'; S6B dan S6B'). Hasil ini menunjukkan bahwa RAB5 dan RAB7 berpartisipasi dalam sitosis fag hemosit yang dimediasi FOXO pada udang. Kami selanjutnya mendeteksi bahwa RAB5 dan RAB7 dilokalisasikan bersama dengan V. anguillarum pada hemosit udang (Gambar 9). Secara keseluruhan, hasilnya menunjukkan bahwa RAB5 dan RAB7 terlibat dalam fagositosis yang dimediasi FOXO pada udang.

Gambar 5. Infeksi patogen menurunkan aktivitas AKT, yang mendorong translokasi nuklir FOXO pada hemosit dan sel enterik udang. (A, B) Efisiensi Akt-RNAi dalam hemosit dan usus udang, sebagaimana ditentukan oleh qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen (A) dan western blotting (B). (C) Jumlah FOXO dalam sitoplasma dan inti usus udang Akt-knockdown dianalisis dengan western blotting. dsGfp digunakan sebagai kontrol. (C') Analisis statistik panel (C). Perangkat lunak ImageJ digunakan untuk mendigitalkan pita dengan memindai gambar tiga kali ulang. (D) Translokasi nuklir FOXO dalam hemosit udang Akt-knockdown terdeteksi 2 jam setelah tantangan V. anguillarum menggunakan uji imunositokimia fluoresen. dsGfp digunakan sebagai kontrol. Bilah skala=20 μm. (D') Analisis statistik (D). Perangkat lunak WCIF ImageJ digunakan untuk menganalisis ko-lokalisasi dengan rasio intensitas fluoresensi anti-FOXO (hijau) dan inti bernoda DAPI (biru) dalam hemosit setelah memperbaiki nilai paparan. (E, F) Perubahan kandungan AKT terfosforilasi (p-AKT) pada hemosit (E) dan usus (F) udang yang ditantang oleh V. anguillarum. Panel bawah adalah angka digital (E) dan (F) berdasarkan masing-masing pita western blotting dan analisis statistik.
Teh Cistanche
Diskusi
FOXO, sebagai faktor transkripsi yang sangat penting, berpartisipasi dalam banyak fungsi fisiologis dan metabolisme [44,45]. Dalam penelitian ini, kami mengidentifikasi FOXO dari udang (M. japonicus) dan menemukan bahwa ia berpartisipasi dalam regulasi homeostasis hemolimfa dan mikrobiota enterik dengan mengatur ekspresi AMP dalam kondisi normal. FOXO dapat diaktifkan oleh infeksi bakteri pada udang dan ditranslokasi ke dalam nukleus, di mana ia mengatur ekspresi AMP secara langsung dan tidak langsung (melalui jalur IMD). FOXO meningkatkan ekspresi gen terkait fagositosis, seperti SRC dan GTPase kecil, RAB5 dan RAB7, untuk mendorong fagositosis hemosit melawan patogen. Oleh karena itu, FOXO udang memainkan peran berbeda dalam respon imun sistemik dan lokal (enterik) terhadap patogen (Gambar 10). Dibandingkan dengan FOXO manusia, FOXO udang memiliki urutan asam amino dan situs fosforilasi AKT yang relatif terpelihara; namun, situs fosforilasi AKT kedua pada udang FOXO adalah treonin, bukan serin. Fosforilasi AKT dari FOXO mengontrol transpor nuklir dan sitoplasma FOXO [9]. Dalam penelitian ini, kami menemukan bahwa AKT terkait dengan pengendalian masuknya nuklir FOXO. Setelah infeksi V. anguillarum, tingkat AKT terfosforilasi berkurang secara signifikan, yang menunjukkan bahwa aktivitas AKT menurun pada udang yang terinfeksi patogen, sehingga meningkatkan retensi nuklir atau translokasi nuklir FOXO, dan selanjutnya menginduksi ekspresi gen target. seperti Relish dan Amp, untuk melawan infeksi patogen. Penelitian sebelumnya telah menemukan bahwa FOXO berpartisipasi dalam homeostasis mikroflora akhir usus Drosophila dengan menekan ekspresi protein pengenalan peptidoglikan SC2 (regulator negatif jalur IMD) untuk mengaktifkan jalur ekspresi AMP [14]. RELISH dilaporkan sebagai gen target utama FOXO dalam pengendalian toleransi hipoksia di Drosophila (46). Seperti hewan lainnya, saluran cerna udang mengandung mikrobiota yang relatif tinggi dan konstan. Semakin banyak bukti juga mengungkapkan bahwa hemolimfa beberapa invertebrata air yang sehat, termasuk udang juga mengandung bakteri dalam jumlah yang stabil [47]. Penelitian kami sebelumnya menemukan bahwa lektin tipe C berpartisipasi dalam regulasi homeostasis mikrobiota hemolimf dengan mempertahankan ekspresi AMP [34], namun kami tidak mengetahui jalur sinyal apa yang terlibat dalam regulasi ekspresi AMP. Di sini, hasil kami menunjukkan bahwa FOXO terlibat dalam regulasi homeostasis hemolimfa dan mikroflora enterik melalui pensinyalan IMD dalam kondisi normal. Pada udang yang tidak terinfeksi, knockdown Foxo mengakibatkan penurunan ekspresi Relish secara signifikan, dan tingkat kelangsungan hidup udang menurun secara signifikan, bahkan tanpa infeksi bakteri. Kami juga menemukan sejumlah kecil FOXO dalam inti sel udang normal. Oleh karena itu, kami berpikir bahwa FOXO berpartisipasi dalam regulasi homeostasis hemolimfa dan flora enterik dalam kondisi normal dengan mempromosikan ekspresi Relish dan kemudian meningkatkan ekspresi AMP melalui jalur IMD. Hasil ini menunjukkan bahwa FOXO berpartisipasi dalam imunitas lokal dan sistemik untuk meningkatkan homeostasis mikrobiota hemolimfa dan saluran pencernaan pada udang. Imunitas humoral memainkan peran penting dalam resistensi terhadap infeksi patogen dengan kecepatan berbanding terbalik melalui produksi AMP [21,48]. Respon humoral terdiri dari sintesis dan sekresi AMP yang dapat diinduksi, yang dilepaskan ke dalam hemolimfa sebagai respon sistemik, atau dilepaskan ke permukaan epidermis atau rongga saluran cerna sebagai respon lokal [19]. Ekspresi AMP terutama diatur oleh jalur sinyal Toll/Dif dan IMD/Relish pada lalat buah [49]. Saat ini, beberapa famili AMP telah diidentifikasi pada udang, termasuk krutin, faktor anti-lipopolisakarida (Alfs), dan penaeidins (50). Penelitian ini menunjukkan bahwa FOXO dapat secara langsung atau tidak langsung (melalui pensinyalan IMD/Relish) mengatur ekspresi AMP, termasuk CrusI-3, Alf-B1, Alf-C1, dan Alf-E1. Kami mengira bahwa rendahnya aktivasi FOXO di hemosit dan usus udang dalam kondisi normal dapat mengatur gen target utama Foxo, yaitu Relish, untuk mempertahankan homeostasis mikrobiota in vivo. Selama infeksi, patogen yang menyerang mengaktifkan FOXO, yang sebagian besar ditranslokasi ke dalam nukleus, tempat ia mengatur lebih banyak gen target, termasuk beberapa AMP, seperti Alf-E1 dan CrusI-3, selain Relish. Secara keseluruhan, FOXO berpartisipasi dalam regulasi hemolimfa dan homeostasis mikrobiota usus pada udang sehat melalui aktivasi sinyal IMD tingkat basal di hemolimfa dan saluran pencernaan. Infeksi patogen mengaktifkan FOXO dengan menurunkan aktivitas AKT dan meningkatkan ekspresi AMP secara langsung dan tidak langsung dalam imunitas sistemik dan imunitas lokal (usus). Fagositosis adalah fenomena yang dimediasi reseptor, bergantung pada aktin dan ATP, yang dipicu oleh pengikatan partikel atau patogen ke reseptor sitomembran tertentu, dan mewakili proses kekebalan penting yang melaluinya inang dapat melindungi dirinya dari patogen [24]. GTPase kecil, seperti RAB5 dan RAB7, terlibat dalam remodeling membran lanjutan dan lalu lintas vesikel dalam fagositosis. Penelitian kami sebelumnya melaporkan bahwa reseptor pemulung SRB dan SRC terlibat dalam fagositosis hemosit sebagai reseptor pada udang [38,39]. Dalam penelitian ini, kami menemukan bahwa setelah Foxo dirobohkan, ekspresi Src menurun drastis, dan laju fagositosis hemosit menurun secara signifikan, menunjukkan bahwa Src adalah gen target FOXO dan bahwa FOXO terlibat dalam fagositosis bakteri patogen yang dimediasi SRC. FOXO juga dapat mempromosikan ekspresi dua GTPase kecil, RAB5 dan RAB7. GTPase kecil ini terlibat dalam transpor berurutan dan merupakan penentu utama fagosom awal dan akhir [51]. Fagosom bermigrasi dari pinggiran sel ke wilayah intraseluler, dengan RAB5 digantikan oleh RAB7 selama pengangkutan, dan barang akhir diangkut ke lisosom untuk degradasi [52,53]. Kami juga menemukan bahwa RAB5 dan RAB7 dapat berkolokasi dengan patogen dalam hemosit, yang menunjukkan bahwa patogen tersebut difagosit oleh hemosit pada udang dengan melewati fagosom awal dan akhir sebelum akhirnya terdegradasi dalam lisosom. Oleh karena itu, FOXO terlibat dalam respon imun seluler dengan mendorong fagositosis hemosit. Sebagai kesimpulan, hasil kami menunjukkan bahwa FOXO tidak hanya berpartisipasi dalam regulasi homeostasis mikrobiota dalam kondisi normal tetapi juga dalam pembersihan bakteri patogen pada udang yang terinfeksi dengan meningkatkan ekspresi AMP dan fagositosis hemosit.

Gambar 6. FOXO melakukan peran antibakterinya pada udang dengan mengatur ekspresi AMP. (A, B) Ekspresi Amps dalam hemosit (A) dan usus (B) udang Foxo-knockdown, sebagaimana ditentukan oleh qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen; Injeksi dsGfp pada udang digunakan sebagai kontrol. Data dianalisis secara statistik menggunakan uji Mann-Whiteny U. (C, D) Ekspresi Amps dalam hemosit (C) dan usus (D) udang knockdown Akt dianalisis dengan qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen; Injeksi dsGfp pada udang digunakan sebagai kontrol. Perbedaan signifikan dianalisis menggunakan ANOVA satu arah. (E) Diagram skematis dari prediksi situs pengikatan FOXO pada promotor Alf-E1. (F) ChIP dan RT-PCR digunakan untuk mendeteksi pengikatan FOXO pada urutan promotor Alf-E1 menggunakan primer (Alf-E1-F dan Alf-E1-R, Tabel 1). RT-PCR juga digunakan untuk memperkuat wilayah pengkodean Alf-E1 dengan primer RT-PCR (Alf-E1-RT-F dan Alf-E1-RT-R. Tabel 1) menggunakan ChIP diperoleh DNA sebagai templat. Antibodi IgG digunakan sebagai kontrol, dan fragmen DNA genom normal yang diamplifikasi digunakan untuk mengkonfirmasi pita target.
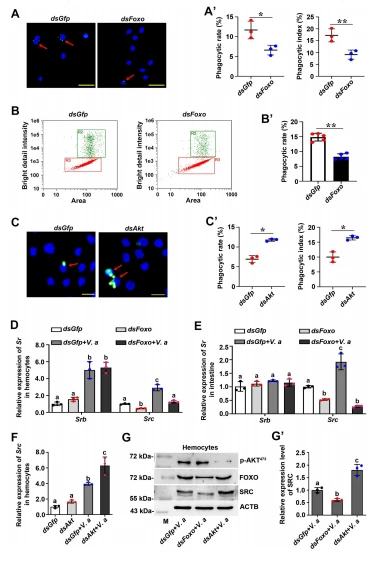
Gambar 7. FOXO meningkatkan fagositosis hemosit patogen pada udang dengan meningkatkan ekspresi SRC. (A) Fagositosis hemosit V. anguillarum diamati menggunakan uji imunositokimia fluoresen di bawah mikroskop fluoresensi. V. anguillarum diberi label FITC (hijau) dan inti sel diwarnai dengan DAPI (biru). Panah merah menunjukkan hemosit fagositik. Bilah skala=20 μm. (A') Analisis statistik laju fagositik dan indeks fagositik pada udang Foxo-knockdown. Kelompok injeksi dsGfp digunakan sebagai kontrol. Lima ratus hemosit dihitung di bawah mikroskop fluoresensi dalam setiap percobaan. Data dianalisis secara statistik menggunakan uji-t Student. (B) Fagositosis bakteri oleh hemosit dianalisis menggunakan flow cytometry. Hemosit yang mengandung bakteri (R2) yang difagositosis dipisahkan dari hemosit yang tidak difagositosis (R3) berdasarkan sinyal fluoresensi bakteri berlabel dalam hemosit menggunakan perangkat lunak IDEAS Application v6.0. (B') Laju fagositik hemosit berdasarkan data aliran sitometri. Tiga ribu hemosit dihitung untuk setiap analisis dan tiga kali pengulangan dilakukan. Kelompok dsGfp digunakan sebagai kontrol. (C) Fagositosis hemosit V. anguillarum pada udang knockdown Akt diamati di bawah mikroskop fluoresensi. Bilah skala=10 μm. (C') Analisis statistik laju fagositik dan indeks fagositik berdasarkan data pada panel (C). (D) Tingkat ekspresi mRNA Srb dan Src pada hemosit udang knockdown Foxo dianalisis dengan qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen. injeksi dsGfp digunakan sebagai kontrol. (E) Ekspresi mRNA Srb dan Src di usus udang Foxo-RNAi dianalisis dengan qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen. (F) Ekspresi mRNA Src dalam hemosit udang Akt-RNAi dianalisis dengan qPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen. (G) Kadar protein SRC pada hemosit udang Foxo-RNAi atau Akt-RNAi, dianalisis menggunakan western blotting. injeksi dsGfp digunakan sebagai kontrol. (G') Analisis statistik berdasarkan data tiga ulangan panel (G).
Bahan dan metode
Pernyataan etika
Semua percobaan pada hewan dilakukan sesuai dengan Petunjuk Nasional China (GB 14922.2–2011 dan GB 14925–2010). Percobaan kelinci untuk persiapan antibodi dalam penelitian ini dilakukan sesuai dengan protokol yang disetujui oleh Komite Perawatan & Kesejahteraan Hewan di Fakultas Ilmu Hayati Universitas Shandong (SYDWLL-2021-54). Persetujuan menurut peraturan penggunaan udang dalam penelitian kami tidak diperlukan karena penelitian kami menggunakan udang yang umum dikonsumsi oleh masyarakat luas dalam jumlah terbatas.
Hewan
Udang sehat (Marsupenaeus japonicus), dengan berat masing-masing sekitar 6–10 g, diperoleh dari pasar produk akuatik di Qingdao, provinsi Shandong, Tiongkok. Sebelum dilakukan percobaan, udang dibudidayakan minimal 1 hari pada sistem budidaya udang dengan air laut yang diangin-anginkan bersuhu 23–25˚C untuk aklimatisasi dengan lingkungan baru.

Gambar 8. RAB5 dan RAB7 terlibat dalam fagositosis hemosit yang dimediasi FOXO pada udang. (A, B) qPCR digunakan untuk menganalisis tingkat ekspresi mRNA Rab5 dan Rab7 dalam hemosit udang Foxo-knockdown (A) dan udang Akt-knockdown (B) dengan dan tanpa infeksi bakteri. QPCR menggunakan ekspresi rata-rata geometrik -aktin dan Ef-1 sebagai gen kontrol endogen. (C) Kadar protein RAB5 dan RAB7 dalam hemosit udang Foxo-knockdown pada 2 jam pasca tantangan V. anguillarum ditentukan dengan menggunakan western blotting. (C') Analisis statistik berdasarkan data tiga ulangan panel (C). (D) Kadar protein RAB5 dan RAB7 dalam hemosit udang Akt-knockdown pada 2 jam pasca tantangan V. anguillarum ditentukan dengan menggunakan western blotting. (D') Analisis statistik berdasarkan data tiga ulangan panel (D).
Analisis bioinformatika
Urutan cDNA Foxo full-length diperoleh dari sequencing transkrip hemosit dan usus M. japonicus (BGI, Shenzhen, Cina). Kerangka pembacaan terbuka (ORF) Foxo diamplifikasi menggunakan sepasang primer (Foxo-EX-F dan Foxo-EX-R; Tabel 1) untuk konfirmasi urutan. CDNA yang sesuai diterjemahkan secara konseptual untuk mendapatkan urutan protein yang dideduksi menggunakan alat ExPASy-Translation (//cn.expasy.org/). Analisis kesamaan dilakukan menggunakan BLAST (http://blast.ncbi.nlm.nih.gov/Blast.cgi/), dan prediksi arsitektur domain dilakukan menggunakan SMART (http://smart.emblheidelberg.de). Pohon filogenetik FOXO dari spesies berbeda dibuat menggunakan program MEGA 6.0 [54].

Gambar 9. RAB5 dan RAB7 berkolokasi dengan V. anguillarum. Ko-lokalisasi RAB5 dan RAB7 dengan FITC berlabel-V. anguillarum dalam hemosit udang, yang dianalisis menggunakan uji imunositokimia fluoresen. Bakteri tersebut diberi label FITC (hijau) dan disuntikkan ke udang. Hemosit dikumpulkan dari lima udang pada 30 menit dan 1 jam setelah injeksi bakteri dan diinkubasi dengan antibodi anti-RAB5 atau anti RAB7. Antibodi sekundernya adalah antirabbit IgG Alexa-546 (merah). Inti diwarnai dengan DAPI (biru). Ko-lokalisasi pada hemosit ditandai dengan panah putih. Bilah skala=10 μm.

Gambar 10. Representasi skema keterlibatan FOXO dalam imunitas bawaan lokal dan sistemik pada udang. (A) Dalam kondisi tidak terinfeksi, FOXO mempertahankan homeostasis hemolimfa dan mikrobiota usus dengan meningkatkan Relish dan selanjutnya ekspresi AMP. (B) Pada kondisi terinfeksi, fosforilasi AKT menurun karena infeksi patogen, mengakibatkan peningkatan kandungan FOXO dalam nukleus. FOXO secara langsung mempromosikan ekspresi Relish dan AMP untuk menghilangkan patogen invasif; di sisi lain, FOXO mendorong fagositosis patogen melalui jalur fagositosis yang dimediasi SRC.
Tantangan bakteri dan pengumpulan sampel
Vibrio anguillarum (ATCC 43305) diperoleh dari Marine College, Universitas Shandong (Wei hai, China) dan sekarang disimpan di laboratorium kami. V. anguillarum dikultur semalaman pada suhu 37˚C dalam medium LB dan dikultur ulang selama 4 jam dengan inokulasi 1:100 pada hari kedua. Bakteri dalam fase pertumbuhan logaritmik dikumpulkan dengan cara sentrifugasi pada 5000 × g selama 5 menit pada suhu 4˚C dan dicuci dua kali dengan larutan salin yang mengandung fosfat (PBS: 10 mM Na2HPO4, 140 mM NaCl, 2,7 mM KCl, dan 1,8 mM KH2PO4, pH 7,4). V. anguillarum disuspensikan kembali dalam larutan garam berdapar fosfat untuk tantangan udang. Sekitar 2 × 10⁷ unit pembentuk koloni (CFU)/udang disuntikkan ke dalam perut masing-masing udang menggunakan jarum suntik mikro. Kelompok kontrol disuntik dengan volume PBS yang sama. Hemosit, jantung, hepatopankreas, insang, lambung, dan usus dikumpulkan dari setidaknya tiga udang untuk ekstraksi RNA dan protein. Untuk pengumpulan hemosit, hemolimfa diekstraksi dari sinus ventral menggunakan jarum suntik yang diisi dengan 0,8 ml buffer antikoagulan (10% natrium sitrat), dan kemudian dengan cepat disentrifugasi pada 700 × g selama 8 menit pada suhu 4˚C untuk isolasi hemosit.
Ekstraksi RNA dan protein, dan sintesis cDNA
Total RNA diekstraksi dari hemosit dan berbagai organ udang menggunakan TRIzol (ET101, Transgen, Beijing, China). Protein dari berbagai organ diekstraksi menggunakan Radioimmunoprecipitation assay (RIPA) Lysis Buffer (P0013B, Beyotime, Jiangsu, China). Sintesis cDNA untai pertama dilakukan menggunakan Kit Sintesis cDNA (5x All-in-One RT MasterMix; Bahan Biologi Terapan-abm, Vancouver, Kanada), mengikuti instruksi pabrik.
Tabel 1. Urutan primer yang digunakan dalam penelitian ini.

Campuran Utama; Applied Biological Materials-abm, Vancouver, Kanada), mengikuti instruksi pabriknya.
Ekspresi rekombinan dan persiapan antibodi
Urutan cDNA Foxo diamplifikasi dengan reaksi berantai transkripsi polimerase terbalik (RT-PCR) menggunakan primer Foxo-EX-F dan Foxo-EX-R (Tabel 1). Produk PCR yang dimurnikan kemudian dicerna menggunakan enzim restriksi dan diikat menjadi plasmid pGEX-4T-1 (GE Healthcare, Piscataway, NJ, USA). dan plasmid yang dibangun diubah menjadi sel Escher ichia coli Rosseta (DE3). Ekspresi protein diinduksi menggunakan 1 mM isopropil- - D-thio galactopyranoside pada suhu 37˚C. Protein rekombinan dikenai kromatografi afinitas menggunakan resin glutathione (GST) (C600031, BBI, Shanghai, Cina), mengikuti instruksi dari pabriknya. Antisera kelinci terhadap FOXO dibuat sesuai dengan metode yang telah dijelaskan sebelumnya [55].
blotting barat
Protein yang diekstraksi dari berbagai organ atau hemosit dipisahkan menggunakan elektroforesis gel natrium dodesil sulfat poliakrilamida 10% (SDS-PAGE). Protein dalam gel SDS-PAGE dipindahkan ke membran selulosa nitrat menggunakan buffer transfer (25 mM Tris–HCl, 20 mM glisin, 00,037% mM SDS, dan 20% etanol) dan diinkubasi dalam 5% susu skim atau 3% bovine serum albumin (BSA) dalam larutan buffer Tris (TBS: 150 mM NaCl, 10 mM Tris HCl, pH 8.0) selama 1 jam dengan pengocokan lembut pada suhu kamar. Membran kemudian diinkubasi dengan antiserum primer: Anti-FOXO pada pengenceran 1:100, anti-RAB5 pada 1:25, anti Rab7 pada 1:25, anti-beta actin (ACTB) pada 1:250 (disiapkan di laboratorium kami ); Antibodi poliklonal Histon-3 (A2348, ABclonal, Wuhan, Cina, 1:2500); antibodi poliklonal anti-fosforilasi (p)-AKT (WLP001a, Wanleibio, Shenyang, Cina, 1:500) dan dikocok perlahan pada malam hari pada suhu 4˚C. Setelah dicuci tiga kali dengan TBST (0,1% Tween-20 ditambahkan ke TBS), membran membran diinkubasi dengan antibodi sekunder (ZB2308 ZSGB-Bio, Beijing, China, 1:5,000) atau ( ZB2301 ZSGB-Bio, Beijing, China, 1:5,000) selama 3 jam pada suhu kamar dengan pengocokan perlahan. Pita protein imunoreaktif dikembangkan menggunakan larutan nitrotetrazolium biru klorida (A610379, BBI) dan garam P-toluidine (A610072, BBI) dalam kondisi gelap atau menggunakan peningkatan chemiluminescence (ECL). -actin atau Histone-3 digunakan sebagai referensis.
Distribusi jaringan dan pola ekspresi pada udang ditantang oleh bakteri
Distribusi jaringan Foxo/FOXO dalam hemosit, jantung, insang, dahak, lambung, dan usus dianalisis menggunakan RT-PCR dengan primer Foxo-F dan Foxo-R (Tabel 1) dan dengan western blotting dengan antibodi anti-FOXO, masing-masing. Prosedur PCR terdiri dari inkubasi awal pada suhu 94˚C selama 3 menit; dilanjutkan dengan 35 siklus 94˚C selama 30 detik, 50˚C selama 30 detik, dan 72˚C selama 30 detik; dilanjutkan dengan suhu 72˚C selama 10 menit. Produk PCR dianalisis menggunakan elektroforesis gel agarosa (agarosa 1,5%). Gen -aktin (-aktin-F dan -aktin-R; Tabel 1) digunakan sebagai kontrol internal. Pola ekspresi perjalanan waktu Foxo/FOXO pada tingkat RNA dan protein pada udang yang ditantang dengan V. anguillarum dianalisis menggunakan PCR waktu nyata kuantitatif (qPCR) dalam thermal cycler (qTOWER3, ANALYTIK JENA AG, Jena, Jerman) dan dengan blotting barat, masing-masing. Prosedur qPCR terdiri dari: 95˚C selama 10 menit; 40 siklus pada 95˚C selama 10 detik dan 60˚C selama 50 detik; dan kemudian periode leleh dari 65˚C hingga 95˚C. File profil ekspresi Foxo diproduksi menggunakan metode 2-ΔΔCT [56] menggunakan rata-rata geometrik dari dua gen kontrol internal -aktin dan Ef-1 untuk normalisasi. Efisiensi pasangan primer dalam qPCR dianalisis mengikuti metode MIQE [57] dengan pengenceran logaritmik 10-kali lipat dari campuran cDNA untuk menghasilkan kurva standar linier.
Isolasi protein inti dan sitoplasma
Jaringan usus udang dibedah dan dicuci dalam PBS sebanyak tiga kali. Ekstraksi protein dilakukan dengan menggunakan kit ekstraksi protein nuklir dan sitoplasma (R0050, Solarbio, Beijing, Cina) mengikuti instruksi dari pabriknya. Setidaknya tiga udang digunakan untuk ekstraksi protein untuk menghilangkan perbedaan individu.
Uji interferensi RNA
Untuk menganalisis fungsi gen, kami melakukan uji interferensi RNA (RNAi). Beberapa pasang primer yang mengandung rangkaian promotor T7 (Foxo-RI-F dan Foxo-RI-R; Rab5-RI-F dan Rab5 -RI-R; Rab7-RI- F dan Rab7 -RI-R; Akt-RI-F dan Akt-RI-R. Tabel 1) dirancang untuk memperkuat templat untuk sintesis dsRNA. Menggunakan T7 RNA polimerase (EP0111, Thermo Fisher Scientific, Waltham, MA, USA) dan templat cDNA, kami mensintesis fragmen dsRNA. Protein fluoresen hijau untai ganda dsGfp RNA berfungsi sebagai kontrol, yang diamplifikasi menggunakan Gfp-RI-F dan Gfp -RI-R (Tabel 1) sebagai primer untuk sintesis dsGfp. Kemudian, fragmen dsRNA (50 ug/masing-masing) disuntikkan ke segmen perut M. japonicus menggunakan microsyringe dan injeksi kedua dilakukan 12 jam kemudian dengan menggunakan dosis yang sama. Efisiensi interferensi RNA dianalisis menggunakan PCR transkripsi balik real-time kuantitatif (qRT-PCR, yang terdiri dari transkripsi balik RNA untuk membentuk cDNA, yang kemudian digunakan sebagai templat dalam uji qPCR) atau western blotting 24 jam setelah injeksi kedua. -aktin digunakan sebagai referensi internal.
Referensi
1. Calnan DR, Brunet A. Kode FoxO. Onkogen. 2008; 27(16):2276–2288. https://doi.org/10.1038/ onc.2008.21 PMID: 18391970.
2. Tran H, Brunet A, Grenier JM, Datta SR, Fornace AJ, DiStefano PS, dkk. Jalur perbaikan DNA dirangsang oleh faktor transkripsi forkhead FOXO3a melalui protein Gadd45. Sains. 2002; 296 (5567):530–534. https://doi.org/10.1126/science.1068712 PMID: 11964479.
3. Martins R, Lithgow GJ, Link W. Panjang umur FOXO: mengungkap peran protein FOXO dalam penuaan dan umur panjang. Sel Penuaan. 2016; 15(2):196–207. https://doi.org/10.1111/acel.12427 PMID: 26643314.
4. Vogt PK, Jiang H, Aoki M. Kontrol tiga lapisan-fosforilasi, asetilasi dan ubiquitinasi protein FOXO. Siklus sel. 2005; 4(7):908–913. https://doi.org/10.4161/cc.4.7.1796 PMID: 15917664. 5. Daitoku H, Sakamaki J, Fukamizu A. Regulasi faktor transkripsi FoxO melalui asetilasi dan interaksi protein-protein. Res Sel Bba-Mol. 2011; 1813(11):1954–1960. https://doi.org/10.1016/j. bbamcr.2011.03.001 PMID: 21396404.
6. Wang Y, Zhou YM, Makam DT. Faktor transkripsi FOXO: signifikansi dan regulasi klinisnya. Biomed Res Int. 2014; 2014:1–13. https://doi.org/10.1155/2014/925350 PMID: 24864265.
7. Murphy CT, McCarroll SA, Bargmann CI, Fraser A, Kamath RS, Ahringer J, dkk. Gen yang berperan di hilir DAF-16 untuk memengaruhi masa hidup Caenorhabditis elegans. Alam. 2003; 424(6946):277– 284. https://doi.org/10.1038/nature01789 PMID: 12845331. 8. Sergi C, Shen F, Liu SM. Jalur insulin/IGF-1R, SIRT1, dan FOXOs-sebuah platform interaksi yang menarik untuk tulang dan osteosarkoma. Endokrinol Depan (Lausanne). 2019; 10:93–103. https://doi.org/10. 3389/fendo.2019.00093 PMID : 30881341.
9. Brunet A, Bonni A, Zigmond MJ, Lin MZ, Juo P, Hu LS, dkk. Akt meningkatkan kelangsungan hidup sel dengan memfosforilasi dan menghambat faktor transkripsi forkhead. Sel. 1999; 96(6):857–868. https://doi.org/10.1016/ s0092-8674(00)80595-4 PMID: 10102273.
10. Huang H, Regan KM, Wang F, Wang DP, Smith DI, van Deursen JMA, dkk. Skp2 menghambat FOX01 dalam penekanan tumor melalui degradasi yang dimediasi ubiquitin. P Natl Acad Sci AS. 2005; 102(5):1649– 1654. https://doi.org/10.1073/pnas.0406789102 PMID: 15668399.
11. Ogg S, Paradis S, Gottlieb S, Patterson GI, Lee L, Tissenbaum HA, dkk. Faktor transkripsi kepala Fork DAF-16 mentransduksi sinyal metabolisme dan umur panjang seperti insulin di C. elegans. Alam. 1997; 389 (6654):994–999. https://doi.org/10.1038/40194 PMID: 9353126.
12. Fink C, Hoffmann J, Knop M, Li Y, Isermann K, Roeder T. Pensinyalan FoxO usus diperlukan untuk bertahan hidup dari infeksi mulut pada Drosophila. Imunol Mukosa. 2016; 9(4):927–936. https://doi.org/10.1038/mi. PMID 2015.112: 26627459.
13. Spellberg MJ, Marr MT. FOXO mengatur gangguan RNA pada Drosophila dan melindungi dari infeksi virus RNA. P Natl Acad Sci AS. 2015; 112(47):14587–14592. https://doi.org/10.1073/pnas. 1517124112 PMID: 26553999.
14. Guo LL, Karpac J, Tran SL, Jasper H. PGRP-SC2 mempromosikan homeostasis kekebalan usus untuk membatasi disbiosis komen sal dan memperpanjang umur. Sel. 2014; 156(1–2):109–122. https://doi.org/10.1016/j.cell.2013.12. 018 PMID: 24439372.
15. Becker T, Loch G, Beyer M, Zinke I, Aschenbrenner AC, Carrera P, dkk. Regulasi homeostasis imun bawaan yang bergantung pada FOXO. Alam. 2010; 463(7279):369–373. https://doi.org/10.1038/nature08698 PMID: 20090753.
16. Seiler F, Hellberg J, Lepper PM, Kamyschnikow A, Herr C, Bischoff M, dkk. Faktor transkripsi FOXO mengatur mekanisme imun bawaan dalam sel epitel pernapasan. J Imunol. 2013; 190(4):1603– 1613. https://doi.org/10.4049/jimmunol.1200596 PMID: 23315071.
17. Makam DT, Milovanova TN. Imunitas mukosa dan faktor transkripsi FOXO1. Imunol Depan. 2019; 10:2530–2541. https://doi.org/10.3389/fimmu.2019.02530 PMID: 31849924.
18. Bulet P, Stocklin R, Menin L. Peptida anti mikroba: dari invertebrata hingga vertebrata. Imunol Rev. 2004; 198:169–184. https://doi.org/10.1111/j.0105-2896.2004.0124.x PMID: 15199962.
19. Buchon N, Silverman N, Cherry S. Imunitas pada Drosophila melanogaster—dari pengenalan mikroba hingga fisiologi seluruh organisme. Nat Rev Imunol. 2014; 14(12):796–810. https://doi.org/10.1038/nri3763 PMID: 25421701.
20. Hoffmann JA, Reichhart JM. Imunitas bawaan Drosophila: perspektif evolusi. Nat Imunol. 2002; 3(2):121–126. https://doi.org/10.1038/ni0202-121 PMID: 11812988.
21. Kekebalan Hultmark D. Drosophila: jalur dan pola. Opini Imunol Saat Ini. 2003; 15(1):12–19. https://doi.org/10.1016/s0952-7915(02)00005-5 PMID: 12495727.
22. Li FH, Xiang JH. Kemajuan terbaru dalam penelitian tentang kekebalan bawaan udang di Tiongkok. Dev Comp Imunol. 2013; 39(1–2):11–26. https://doi.org/10.1016/j.dci.2012.03.016 PMID: 22484214.
23. Sun JJ, Lan JF, Zhao XF, Vasta GR, Wang JX. Pengikatan domain kumparan lektin tipe C ke reseptor Domeless secara langsung mengaktifkan jalur JAK/STAT dalam respon imun udang terhadap infeksi bakteri. Patog PLoS. 2017; 13(9):e1006626. https://doi.org/10.1371/journal.ppat.1006626 PMID: 28931061.
24. Gordon S. Fagositosis: proses imunobiologis. Kekebalan. 2016; 44(3):463–475. https://doi.org/ 10.1016/j.immuni.2016.02.026 PMID: 26982354.
25. Wang S, Xia PY, Huang GL, Zhu PP, Liu J, Ye BQ, dkk. Autophagy yang dimediasi FoxO1-diperlukan untuk pengembangan sel NK dan imunitas bawaan. Nat Komuni. 2016; 7:11023–11037. https://doi.org/10.1038/ncomms11023 PMID: 27010363.
26. Dong G, Lagu L, Tian C, Wang Y, Miao F, Zheng J, dkk. FOXO1 mengatur aktivitas neutrofil yang diinduksi bakteri. Imunol Depan. 2017; 8:1088–1102. https://doi.org/10.3389/fimmu.2017.01088 PMID: 28928749.
27. Wang XW, Zhao XF, Wang JX. Lektin tipe C berikatan dengan beta-Integrin untuk mendorong fagositosis hemositik pada invertebrata. J Biol Kimia. 2014; 289(4):2405–2414. https://doi.org/10.1074/jbc.M113.528885 PMID: 24324258.
28. Norouzitallab P, Baruah K, Vanrompay D, Bossier P. Mengajarkan pertahanan diri udang untuk melawan infeksi. Tren Bioteknologi. 2019; 37(1):16–19. https://doi.org/10.1016/j.tibtech.2018.05.007 PMID: 29914649.
29. Flegel TW. Sejarah kemunculan, dampak dan status terkini patogen udang di Asia. J Invertebra Pathol. 2012; 110(2):166–173. https://doi.org/10.1016/j.jip.2012.03.004 PMID: 22429834.
30. Wang PH, Huang TZ, Zhang XB, Dia JG. Pertahanan antivirus pada udang: Dari kekebalan bawaan hingga infeksi virus. Antivirus Res. 2014; 108:129–141. https://doi.org/10.1016/j.antiviral.2014.05.013 PMID: 24886688.
31. Obsil T, Obsilova V. Hubungan struktur/fungsi yang mendasari regulasi faktor transkripsi FOXO. Onkogen. 2008; 27(16):2263–2275. https://doi.org/10.1038/onc.2008.20 PMID: 18391969.