Toll-Like Receptor Response Terhadap Infeksi Virus Hepatitis B Dan Potensi Agonis TLR Sebagai Imunomodulator Untuk Mengobati Hepatitis B Kronis: Gambaran Umum Bagian 1
Jun 21, 2023
Abstrak:
Infeksi virus hepatitis B (HBV) kronis tetap menjadi masalah kesehatan global yang utama. Imunopatologi penyakit ini, terutama interaksi antara HBV dan imunitas bawaan pejamu, kurang dipahami. Selain itu, literatur yang tidak konsisten tentang HBV dan imunitas bawaan inang telah menimbulkan kontroversi. Namun, baru-baru ini, telah terjadi peningkatan jumlah penelitian yang menyoroti hubungan antara respon imun bawaan, termasuk Toll-like receptor (TLRs), dan infeksi HBV kronis.
TLR adalah molekul penginderaan utama yang mendeteksi pola molekul terkait patogen dan mengatur induksi sitokin pro dan antiinflamasi, sehingga membentuk imunitas adaptif. Penekanan respons TLR telah dilaporkan pada pasien dengan hepatitis B kronis (CHB), serta pada model lain, termasuk tikus pohon, menunjukkan hubungan respons TLR dalam kronisitas HBV. Selain itu, agonis TLR telah dilaporkan meningkatkan respon imun bawaan inang terhadap infeksi HBV, menyoroti potensi agonis ini sebagai imunomodulator untuk meningkatkan pengobatan CHB. Dalam penelitian ini, kami membahas pemahaman saat ini tentang respons imun bawaan inang selama infeksi HBV, terutama berfokus pada respons TLR dan agonis TLR sebagai imunomodulator.
Infeksi virus hepatitis B (HBV) kronis dapat mempengaruhi sistem kekebalan tubuh. Infeksi HBV menekan respons sistem kekebalan terhadap virus, mengakibatkan infeksi kronis.
Pada pasien dengan hepatitis B kronis, kekebalan ditekan. Ini karena serangan virus pada sel kekebalan dan respons peradangan yang disebabkan oleh infeksi. Sistem kekebalan pasien mungkin tidak dapat merespons virus secara efektif, menyebabkan virus bertahan di dalam tubuh.
Dalam hal pengobatan, pengubah kekebalan dapat meningkatkan kekebalan pasien dan membantu mereka membersihkan virus. Namun, obat ini juga dapat menyebabkan sistem kekebalan tubuh yang terlalu aktif, yang dapat menyebabkan penyakit autoimun.
Kesimpulannya, ada interaksi yang kompleks antara infeksi HBV kronis dan kekebalan. Strategi terapeutik untuk memperlambat replikasi virus dan meningkatkan kekebalan harus dikombinasikan dengan pengobatan individual untuk mencapai efek terapeutik terbaik. Dari sudut pandang ini, kita perlu meningkatkan kekebalan kita. Cistanche memiliki efek meningkatkan kekebalan secara signifikan. Abu daging mengandung berbagai komponen aktif biologis, seperti polisakarida, dua jamur, Huang Li, dll. Bahan-bahan ini dapat merangsang daging. Berbagai jenis sel sistem kekebalan meningkatkan aktivitas kekebalan mereka.

Klik manfaat cistanche tubulosa
Kata kunci:
virus hepatitis B; kronis; infeksi; reseptor seperti tol; agonis TLR.
1. Perkenalan
Infeksi virus hepatitis B (HBV), yang menyebabkan hepatitis kronis, sirosis hati, dan karsinoma hepatoseluler (HCC), tetap menjadi masalah kesehatan global yang utama meskipun ketersediaan vaksin pencegahan yang efektif untuk HBV [1,2]. Menurut perkiraan baru-baru ini, 296 juta orang terkena infeksi HBV kronis pada tahun 2019, dengan 1,5 juta infeksi baru per tahun [3]. Perawatan saat ini melibatkan pemberian interferon alfa pegilasi (Peg-IFN-) dan analog nukleus (t)ide (NA), termasuk tiga analog nukleosida (lamivudine, entecavir, dan telbivudine) dan tiga analog nukleotida (adefovir, tenofovir disoproxil, dan tenofovir alafenamide). Namun, obat ini hanya dapat menekan replikasi HBV; mereka tidak dapat menghilangkan infeksi HBV, terutama karena sifat gigih dari DNA sirkular tertutup kovalen (cccDNA) dan/atau DNA HBV terintegrasi dalam hepatosit [4].
HBV adalah virus DNA sirkular santai (cDNA) beruntai ganda, melingkar, dan terselubung sebagian [5]. HBV milik keluarga Hepadnaviridae, yang berisi genom sekitar 3,2 kb dengan empat bingkai pembacaan terbuka yang tumpang tindih, mengkodekan tujuh protein, termasuk polimerase, inti, pra-inti, tiga protein amplop / permukaan (besar, menengah, dan kecil), dan protein X [6–8]. Amplop dan protein inti adalah protein struktural, sedangkan X dan polimerase adalah protein non-struktural [8]. Sodium taurocholate co-transporting polypeptide (NTCP) telah dibuktikan sebagai reseptor masuk untuk HBV [9], dan interaksinya spesifik pada inang [10]. Serangkaian peristiwa kompleks terjadi antara virus dan sistem kekebalan inang, yang menentukan hasil infeksi [11].
Demikian pula, hasil dari infeksi HBV sangat tergantung pada interaksi virus-host, di mana, pada 95 persen orang dewasa imunokompeten infeksi dibersihkan, tetapi pada lebih dari 90 persen neonatus yang terinfeksi gagal dan mereka mengembangkan infeksi kronis [12,13 ]. Infeksi HBV kronis terdeteksi oleh ekspresi terus menerus antigen permukaan hepatitis B (HBsAg) selama minimal 6 bulan setelah infeksi awal. Ada data yang tidak konsisten tentang interaksi inang-HBV, khususnya respon imun bawaan. Misalnya, kurangnya respon imun bawaan, termasuk induksi interferon (IFNs) dan IFN-stimulated gene (ISGs), pada simpanse akut yang terinfeksi HBV [14] model woodchuck infeksi HBV [15] dan pasien dengan infeksi HBV [14] 16] menyoroti HBV sebagai virus siluman. Sebuah studi baru-baru ini menunjukkan bahwa HBV tetap tidak terlihat oleh reseptor pengenalan pola (PRRs) [17], yang mungkin disebabkan oleh kemampuan protein HBV untuk menghambat atau menghindari sistem kekebalan bawaan inang [18-22]. Khususnya, dalam penelitian kami sebelumnya, kami mengamati penekanan yang signifikan terhadap faktor pengatur interferon 7 (IRF-7) dan ISG15, serta tidak ada peningkatan produksi IFN- pada 1- atau 3-hari pasca-infeksi pada model tikus pohon [23], yang menunjukkan penghambatan respon imun bawaan pada tahap awal infeksi pada model ini.

Namun, biasanya sulit untuk mengidentifikasi titik waktu yang tepat dari infeksi awal inang, sehingga sulit untuk mengkarakterisasi tahap awal infeksi HBV. Selain itu, perbedaan respon imun bawaan, yang mungkin disebabkan oleh perbedaan genotipe HBV, status infeksi, atau genetik inang, sebagian besar tetap tidak terdefinisi. Namun demikian, banyak penelitian terbaru menunjukkan penginderaan HBV oleh PRRs, termasuk Toll-like receptor (TLRs) [24,25]. Respon imun bawaan memainkan peran penting sebagai lini pertama pertahanan kekebalan terhadap banyak infeksi virus [26]. TLRs, retinoic acid-inducible gene I (RIG-I)-like receptor (RLRs), nucleotide-binding oligomerization domain (NOD)-like receptor (NLRs) dan reseptor lektin tipe C memainkan peran penting dalam merasakan patogen yang menyerang. , termasuk virus, dan memulai respon imun bawaan. Ini mengarah pada sintesis IFN dan sitokin melalui beberapa jalur pensinyalan yang berbeda, sehingga membatasi infeksi dan meningkatkan respons imun adaptif [27,28].
Meskipun peran imunitas adaptif dalam mengendalikan infeksi HBV didokumentasikan dengan baik, peran imunitas bawaan dalam hal ini belum banyak dieksplorasi [18]. Selain itu, mekanisme di balik respon imun spesifik HBV [29] masih harus diselidiki, yang dapat membuka jalan bagi pengembangan strategi baru untuk pengobatan infeksi HBV kronis. TLR adalah molekul kunci kekebalan bawaan yang dilestarikan secara evolusioner, yang terlibat dalam deteksi dini mikroorganisme penyerang dengan merasakan pola molekul terkait patogen (PAMPs) [30-32]. TLR adalah protein transmembran tipe I yang mengandung tiga domain: domain pengulangan kaya leusin ekstraseluler yang mengenali PAMP spesifik, domain transmembran tunggal, dan domain reseptor Toll-interleukin 1 intraseluler yang diperlukan untuk transduksi sinyal hilir [33,34]. Pensinyalan TLR terlibat dalam regulasi sitokin pro dan anti-inflamasi dan menghubungkan imunitas bawaan dan adaptif dini [35]. Beberapa penelitian telah menunjukkan hubungan sinyal yang dimediasi TLR dengan mekanisme antivirus dan supresi replikasi HBV [36,37], serta supresi respons TLR dengan persistensi HBV [38].
Oleh karena itu, aktivasi respon imun bawaan oleh agonis TLR mungkin memainkan peran penting dalam memodulasi hasil infeksi HBV kronis. Selain itu, TLR adalah molekul pemicu yang penting dalam mengaktifkan kekebalan terlatih dan dapat digunakan sebagai pembantu vaksin [39-42]. Dalam studi sebelumnya, fenomena kekebalan terlatih pada bayi baru lahir dari ibu yang terinfeksi HBV dilaporkan [43]. Dengan demikian, penggunaan agonis TLR sebagai terapi/vaksin spesifik HBV dapat diselidiki untuk meningkatkan respon imun terhadap infeksi kronis. Dalam penelitian ini, kami telah membahas pemahaman kami saat ini tentang interaksi HBV-host dengan berfokus pada interaksi TLR-HBV selama infeksi kronis pada model manusia dan hewan. Selain itu, kami juga telah membahas potensi imunomodulator agonis TLR untuk meningkatkan respon imun bawaan inang selama infeksi HBV kronis.
2. Respons TLR terhadap Infeksi HBV
Meskipun respon imun bawaan selama fase awal infeksi HBV dianggap dapat diabaikan, semakin banyak penelitian menunjukkan bahwa infeksi HBV memodulasi respon imun bawaan, termasuk respon TLR [38]. HBV memiliki kisaran inang terbatas, secara alami menginfeksi manusia dan simpanse, dan sampai batas tertentu, tikus pohon [44-46], yang juga membatasi studi respon imun awal infeksi HBV. Dalam penelitian sebelumnya, Isogawa et al. melaporkan induksi IFN- / di hati tikus transgenik HBV dalam waktu 24 jam setelah injeksi tunggal TLR3, 4, 5, 7, dan 9 agonis intravena, yang menghambat replikasi HBV [37], menunjukkan peran anti-HBV dari TLR ini. Kontrol replikasi HBV yang dimediasi TLR menggunakan agonis TLR juga telah dibuktikan pada sel hati non-parenkim tikus [47].
Ekspresi transkrip TLR yang sangat rendah, termasuk TLR1, 2, 4, dan 6, diamati pada sel mononuklear darah perifer (PBMC) yang diperoleh dari pasien dengan hepatitis B kronis (CHB). Sel juga menunjukkan respons sitokin yang terganggu setelah stimulasi dengan agonis TLR2 dan TLR4, yang berkorelasi dengan tingkat HBsAg plasma pasien [48], menunjukkan kemungkinan interaksi antara pensinyalan HBsAg dan TLR. Studi lain menunjukkan bahwa setelah stimulasi dengan ligan untuk TLR2, TLR3, dan TLR9 pada PBMC yang diperoleh dari anak-anak dengan infeksi HBV kronis, terjadi peningkatan produksi IL-6, CCL3, dan CXCL10 [49], yang mengindikasikan induksi respon inflamasi yang dimediasi TLR.

Namun, pada stimulasi dengan ligan untuk TLR2, TLR3, dan TLR4, PBMC dari anak-anak dengan CHB menunjukkan produksi IFN- yang lebih rendah secara signifikan dibandingkan anak-anak sehat [49], menunjukkan respons IFN yang tertekan. Ekspresi molekul pensinyalan TLR yang menurun secara signifikan, termasuk IRAK4, TRAF3, dan IRF7, ditemukan pada PBMC pasien dengan CHB, dibandingkan dengan pada kontrol yang sehat [50], menunjukkan gangguan respon imun pada infeksi HBV kronis. Variasi genetik pada gen TLR3 ditemukan mempengaruhi hasil infeksi HBV [51,52], menyoroti keterlibatan TLR3. Penurunan ekspresi mRNA dan protein TLR7 diamati pada PBMC yang diperoleh dari pasien dengan CHB, dibandingkan dengan kontrol yang sehat; namun, penurunan ekspresi mRNA TLR9 tetapi peningkatan kadar protein TLR9 diamati pada pasien dengan CHB, yang berkorelasi dengan DNA HBV serum mereka, menunjukkan kemungkinan hubungan antara ekspresi protein TLR9 dan replikasi HBV [53]. Dalam penelitian lain, ekspresi mRNA dan protein TLR9 ditemukan mengalami penurunan regulasi pada PBMC dari pasien dengan CHB [54], menyoroti hubungan TLR9 dengan infeksi HBV.
Penelitian sebelumnya melaporkan penurunan produksi IFN- oleh pDCs dari pasien dengan CHB, yang merupakan respons terhadap loxoribine, ligan untuk TLR7, dan CpG ODN, ligan untuk TLR9 [55]. Selain itu, beberapa penelitian telah melaporkan korelasi terbalik antara jumlah pDC dan ekspresi TLR9 di pDC dengan beban serum HBV [55,56], menunjukkan peran antivirus TLR9 dalam infeksi HBV. Penelitian sebelumnya melaporkan supresi TLR9-produksi IFN- yang diinduksi oleh DC plasmacytoid yang diperoleh dari pasien HBeAg-positif dengan CHB [57]. Selain itu, penelitian terbaru menunjukkan nilai prediktif pDC dan TLR9 pada pasien HBeAg-positif dengan CHB; setelah pengobatan IFN-, ekspresi antigen sel dendritik darah 2 (BDCA-2) yang dimediasi pDC, dan ekspresi transkrip seperti imunoglobulin 7 (ILT7) dan mRNA TLR9 meningkat secara signifikan pada kelompok respons dibandingkan dengan pada kelompok kelompok non-penanggap [58].
Serupa dengan pasien dengan CHB, analisis transkriptomik model woodchuck dari CHB juga mengungkapkan respon IFN tipe I intrahepatik yang terbatas [59]. Dalam model woodchuck dari hepatitis kronis, tren penekanan ekspresi TLR dilaporkan dalam hepatosit, dibandingkan dengan hewan sehat, menunjukkan penurunan respon imun bawaan pada infeksi kronis [60]. Namun, penelitian terbaru menunjukkan peran TLR2 dalam resolusi infeksi HBV dalam model hepatitis woodchuck [61]. Dalam penelitian kami sebelumnya, kami menemukan supresi yang signifikan dari respon IFN- pada 31 minggu pasca infeksi pada model tikus pohon [62], yang mungkin berkontribusi pada kronisitas.
Selain itu, TLR3 tidak diinduksi dan TLR9 ditekan [62]. Khususnya, penelitian sebelumnya juga melaporkan penurunan ekspresi TLR9 pada CD14 perifer ditambah monosit yang dikumpulkan dari pasien dengan CHB [63]. Meskipun mekanismenya masih belum diketahui, penelitian sebelumnya melaporkan bahwa responden pegilasi IFN dan mereka yang menjalani pengobatan ETV menunjukkan pemulihan ekspresi TLR9, menunjukkan peran TLR9 dalam penghambatan HBV [63]. Demikian pula, penelitian sebelumnya menunjukkan penurunan ekspresi TLR3 pada PBMC dan sel hati pasien dengan CHB dibandingkan dengan kontrol sehat, yang dipulihkan dengan terapi IFN, menunjukkan peran TLR3 dalam penghambatan HBV [64]. TLR2 dan 4 dapat menghambat replikasi HBV dengan cara IFN-independen dengan mengaktifkan jalur MAPK dan PI-3 K/Akt di hepatosit [36]. Khususnya, sebuah studi baru-baru ini menunjukkan penginderaan HBV dan induksi respon imun anti-HBV melalui pensinyalan TLR2 setelah infeksi pada hepatosit manusia primer (PHH) [25], model infeksi HBV in vitro yang diverifikasi [65]. Ekspresi TLR2 yang ditekan telah diamati pada infeksi HBV kronis [66,67], dengan ekspresi produksi TNF- dan IL-6 yang menurun secara signifikan [66].
Selain itu, penelitian terbaru menunjukkan hubungan TLR2 dalam regulasi respon sel T helper 17 (Th17) pada infeksi HBV [68]. Menggunakan model tikus HBV, penelitian terbaru lainnya telah menunjukkan peran pensinyalan TLR dalam meningkatkan respon CD8 plus sel T spesifik HBV, yang mengendalikan infeksi [25,69]. Studi lain melaporkan penurunan ekspresi TLR7 dalam sel HepG2.2.15 yang bereplikasi HBV dan sampel biopsi hati dari pasien dengan CHB; hubungan terbalik antara beban DNA HBV dan ekspresi TLR7 dalam sampel biopsi diamati [70], menyoroti peran antivirus TLR7 dalam infeksi HBV, yang selanjutnya dikonfirmasi oleh penekanan replikasi HBV dalam sel HepG2.2.15 oleh agonis TLR7, R837 [ 70]. Pada tikus transgenik HBV, asam lemak jenuh (SFA), ligan potensial untuk TLR4, ditunjukkan untuk mempercepat pensinyalan TLR4, yang menghambat replikasi HBV pada infeksi CHB dengan penyakit hati berlemak non-alkohol [71], menunjukkan peran antivirus TLR4 terhadap infeksi VHB. Peran respons imun bawaan dalam menghambat replikasi HBV juga ditunjukkan dalam model tikus hidrodinamik HBV, di mana inokulasi agonis STING intraperitoneal, 5,6-dimethylxanthenone-4-asam asetat (DMXAA), diinduksi IFN tipe I yang mengurangi perantara replikasi DNA HBV di hati tikus [72].
Pada hepatosit tikus yang mendukung replikasi HBV, aktivasi STING dengan agonis cGAMP atau STING secara signifikan mengurangi DNA virus dengan cara yang bergantung pada STING- dan Janus kinase-1- [73]. Secara keseluruhan, temuan ini menunjukkan bahwa kekebalan bawaan memainkan peran penting dalam penghambatan replikasi HBV; Namun, penelitian lebih lanjut diperlukan untuk mengeksplorasi mekanismenya. Interaksi TLRs dalam berbagai model infeksi HBV ditunjukkan pada Gambar 1 (Gambar 1A-F), yang menunjukkan peran penting respon TLR dalam menghambat infeksi HBV. Dalam hal ini, kami juga telah menunjukkan hubungan TLR dengan molekul lain, termasuk IRAK4, TRAF3, dan IRF7 dalam induksi IL-6, CCL3, dan CXCL10 [36,49,74] (Gambar 1G). Oleh karena itu, pemahaman yang tepat tentang respons TLR pada infeksi HBV sangat penting untuk intervensi terapeutik atau pencegahan yang berhasil. Juga, potensi agonis TLR, khususnya agonis untuk TLR7, 8, dan 9 sedang diselidiki dalam beberapa uji klinis, yang tampak menjanjikan sebagai imunomodulator untuk meningkatkan respon imun inang [74], akan dibahas di bagian selanjutnya dari penelitian ini.
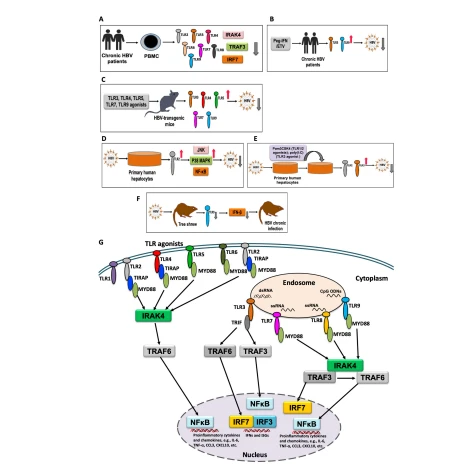
Gambar 1. Tinjauan respons TLR pada berbagai model infeksi HBV. (A) Penekanan TLR dan komponen adaptornya pada pasien dengan infeksi HBV kronis. (B) Pemulihan dan respons anti-HBV dari TLR pada pasien dengan infeksi HBV kronis setelah terapi Peg-IFN atau ETV. (C) Induksi respons TLR dengan menggunakan agonis TLR dan penghambatan replikasi HBV pada tikus transgenik HBV. ( D ) Penghambatan HBV oleh TLR2 dan komponen pensinyalan hilir dalam hepatosit manusia primer (PHH) yang terinfeksi HBV. (E) Respons anti-HBV dari TLR2 dan TLR3 setelah menggunakan agonis TLR1/2 dan TLR3 pada PHH yang terinfeksi HBV. ( F ) Penekanan ekspresi TLR9 dan sitokin hilir selama infeksi HBV kronis pada model tikus pohon. (G) Kartun yang menunjukkan hubungan TLR dengan molekul pensinyalan lain, termasuk IRAK4, TRAF3, dan IRF7 dalam induksi IL-6, TNF- , CCL3, dan CXCL10. Setelah aktivasi TLR oleh masing-masing ligan TLR, molekul adaptor Gambar 1.

Tinjauan respons TLR dalam berbagai model infeksi HBV. (A) Penekanan TLR dan komponen adaptornya pada pasien dengan infeksi HBV kronis. (B) Pemulihan dan respons anti-HBV dari TLR pada pasien dengan infeksi HBV kronis setelah terapi Peg-IFN atau ETV. (C) Induksi respons TLR dengan menggunakan agonis TLR dan penghambatan replikasi HBV pada tikus transgenik HBV. ( D ) Penghambatan HBV oleh TLR2 dan komponen pensinyalan hilir dalam hepatosit manusia primer (PHH) yang terinfeksi HBV. (E) Respons anti-HBV dari TLR2 dan TLR3 setelah menggunakan agonis TLR1/2 dan TLR3 pada PHH yang terinfeksi HBV. ( F ) Penekanan ekspresi TLR9 dan sitokin hilir selama infeksi HBV kronis pada model tikus pohon. (G) Kartun yang menunjukkan hubungan TLR dengan molekul pensinyalan lain, termasuk IRAK4, TRAF3, dan IRF7 dalam induksi IL-6, TNF- , CCL3, dan CXCL10. Setelah aktivasi TLR oleh masing-masing ligan TLR, molekul adaptor direkrut, dan melalui jalur pensinyalan hilir sitokin proinflamasi, kemokin, IFN, dan ISG diaktifkan dan diproduksi.
For more information:1950477648nn@gmail.com