Polisakarida Sulfat Berasal dari Rumput Laut; Kemopreventif Era Baru: Tinjauan Komprehensif
Sep 22, 2023
Ringkasan Sederhana: Polisakarida sulfat adalah agen kemoterapi atau kemopreventif kuat yang memiliki sifat anti kanker dengan meningkatkan kekebalan dan mendorong apoptosis pada beberapa lini sel kanker. Polisakarida sulfat memiliki potensi antioksidan dan imunomodulator yang signifikan, yang berkontribusi terhadap efektivitas pencegahan penyakit dengan sitotoksisitas rendah dan hasil terapi dengan kemanjuran yang baik pada kanker melalui modulasi apoptosis dinamis. Selain itu, dapat digunakan sebagai suplemen makanan atau sebagai pengobatan tambahan untuk kanker.

Manfaat cistanche tubulosa-Antitumor
Abstrak: Senyawa bioaktif yang berasal dari rumput laut sering digunakan untuk mengobati penyakit manusia. Polisakarida sulfat adalah obat kemoterapi atau kemopreventif yang manjur sejak ditemukan. Mereka telah menunjukkan sifat antikanker dengan meningkatkan kekebalan dan mendorong apoptosis. Melalui modulasi dinamis jalur sinyal intraseluler yang penting, seperti kontrol generasi ROS dan pelestarian proses kelangsungan hidup dan kematian sel yang penting, potensi antioksidan dan imunomodulator polisakarida tersulfasi berkontribusi terhadap efektivitas pencegahan penyakit. Polisakarida sulfat memberikan sitotoksisitas rendah dan hasil terapi dengan kemanjuran yang baik melalui modulasi dinamis apoptosis pada kanker. Memahami bagaimana polisakarida tersulfasi mempengaruhi sel kanker manusia dan keterlibatan molekulernya dalam jalur kematian sel akan menunjukkan cara baru dalam kemoprevensi. Dalam ulasan ini, pentingnya apoptosis dan polisakarida sulfat modulasi autophagy telah ditekankan, serta arah masa depan peningkatan nanoformulasi untuk kemanjuran klinis yang lebih besar. Selain itu, tinjauan ini berfokus pada temuan terbaru tentang kemungkinan mekanisme penggunaan kemoterapi polisakarida tersulfasi, potensinya sebagai obat antikanker, dan mekanisme aksi yang diusulkan untuk mendorong apoptosis pada beragam keganasan. Karena sifat fisikokimia dan biologisnya yang unik, polisakarida sulfat ideal untuk bahan bioaktifnya, yang dapat meningkatkan fungsi dan penerapan penyakit. Namun, terdapat kesenjangan dalam literatur mengenai sifat fisikokimia dan fungsi polisakarida tersulfasi dan penggunaan sistem pengiriman berbasis polisakarida sulfat pada kanker fungsional. Selain itu, uji praklinis dan klinis akan mengungkap kemanjuran obat tersebut dalam melawan kanker.
Kata Kunci: apoptosis; kanker; pencegahan kemo; polisakarida sulfat
1. Perkenalan
Ledakan populasi global saat ini dan perubahan pola makan serta gaya hidup dianggap sebagai faktor penting terjadinya penyakit. Banyak penyakit yang disebabkan oleh infeksi, seperti Alzheimer, Parkinson, diabetes, kanker, dan gangguan neurologis lainnya, menimbulkan risiko yang parah terhadap umur manusia [1]. Kanker, kumpulan berbagai masalah patologis yang disebabkan oleh pertumbuhan sel yang tidak terkendali, memiliki dampak buruk pada layanan kesehatan individu [2]. Menurut perkiraan pada tahun 2019, terdapat lebih dari 200 jenis kanker mematikan yang menyebabkan lebih dari 9,6 juta kematian setiap tahunnya di seluruh dunia [3]. Penyebab utama kematian adalah kanker kulit, perut, payudara, paru-paru, prostat, dan kanker kolorektal [4]. Kasus kematian di negara-negara berpendapatan rendah dan menengah tercatat pada sekitar 70% kasus [5]. Berdasarkan studi epidemiologi, Organisasi Kesehatan Dunia (WHO) memperkirakan 9,6 juta kematian terkait kanker dan 18 juta kasus baru pada tahun 2018 [6]. Beberapa sistem homeostatis terganggu oleh proliferasi sel kanker yang tidak terkendali yang menyebabkan invasi dan metastasis karena perubahan genetik [7]. Metode pengobatan kanker meliputi pembedahan, kemoterapi, terapi radiasi, dan imunoterapi; kemoterapi adalah yang paling sering digunakan [7-9]. Kemoterapi adalah pengobatan kanker yang umum dan efisien yang merusak beberapa organ penting dengan menyebabkan sitotoksisitas pada sel kanker dan non-kanker [10]. Toleransi obat menjadi perhatian utama dalam pengobatan kanker untuk menghilangkan efek samping dan reaksi parah [11,12]. Oleh karena itu, sangat penting untuk mengembangkan dan mencari obat antikanker dengan efek samping yang lebih sedikit dan toleransi yang lebih tinggi. Kemoterapi terkadang menciptakan situasi yang tidak menguntungkan dan kerusakan organ permanen di sekitar lokasi target. Selain itu, kelonggaran seluler terhadap obat-obatan menimbulkan kesulitan terapeutik tambahan. Oleh karena itu, diinginkan untuk menemukan agen terapeutik segar dengan efek samping yang rendah untuk mengatasi semua kondisi buruk [13]. Senyawa bioaktif alami yang digunakan sebagai obat memiliki beragam aplikasi terapeutik [14-18]. Selain itu, sebagian besar obat merupakan senyawa alami atau setara sintetik [19]. Karena komposisi kimia dan bioavailabilitasnya yang bervariasi, produk alami laut (MNP) baru-baru ini diselidiki potensinya sebagai kandidat terapi [20-25]. Keanekaragaman hayati alga melimpah di perairan laut dan air tawar dan berkontribusi terhadap metabolit bioaktif utama [24,26-36]. Rumput laut ditemukan di air tawar dan air asin, dan memainkan peran penting dalam melestarikan ekologi dan keanekaragaman hayati ekosistem laut [37,38]. Sifat antikoagulan, antikanker, antidiabetik, antivirus, imunomodulator, antiangiogenik, antiinflamasi, antiadhesif, dan anti-neurodegeneratif dari polisakarida sulfat digunakan sebagai agen terapi potensial [39-44]. Fukoidan, porfirin, karagenan, dan ulvan adalah polisakarida tersulfasi yang sering diekstraksi dari ganggang coklat, merah, dan hijau dan mengandung gugus sulfat yang memiliki kemungkinan sebagai uji terapeutik terhadap banyak keganasan [45-47]. Polisakarida sulfat diharapkan dapat digunakan sebagai agen farmakologi kemoterapi dalam praktik klinis karena variasi strukturalnya yang sangat besar dan kapasitas antioksidan yang kuat [48]. Selain itu, daya serapnya yang tinggi, biaya perawatan yang murah, peningkatan produksi, dan penggunaannya sebagai suplemen makanan menjadikannya obat kemoterapi yang lebih banyak dicari [49]. Laporan sebelumnya telah membahas sifat antikanker dari polisakarida sulfat yang diturunkan dari alga [50-52]. Namun, mekanisme pastinya belum sepenuhnya dipahami atau dibahas. Selain itu, target obat yang spesifik konteks, subtipe kanker dan lingkungan mikro tumor tidak dibahas [52-54]. Bentuk naskah ini membahas keterlibatan mekanistik polisakarida tersulfasi yang berasal dari alga dalam induksi jalur kematian sel. Terapi satu obat spesifik multi-target juga telah dibahas dengan mempertimbangkan heterogenitas tumor. Analisis sistematis asal usul dan tinjauan mekanistik jalur regulasi polisakarida tersulfasi yang digunakan dalam pencegahan kanker adalah topik utama dari tinjauan ini. Untuk memahami intervensi terapeutik dalam konteks pencegahan kanker, kami juga berkonsentrasi pada kompleksitas kimia dan sumber polisakarida sulfat. Penggunaan pengiriman obat klinis dan nano di masa depan disarankan oleh tinjauan ini, yang juga memperhitungkan fungsi potensial polisakarida sulfat dalam pencegahan kanker.

Tanaman cistanche ramuan Cina-Antitumor
2. Peran Rumit Apoptosis dalam Pengobatan Kanker: Kematian Sel Terprogram
Memahami patogenesis penyakit yang disebabkan oleh disfungsi apoptosis memerlukan pemahaman tentang mekanisme apoptosis. Penciptaan obat yang secara khusus menargetkan gen atau jalur apoptosis dapat memperoleh manfaat dari hal ini. Karena berfungsi sebagai inisiator dan eksekutor, caspases merupakan bagian penting dari mekanisme apoptosis. Ada tiga jalur berbeda dimana caspases dapat diaktifkan. Intrinsik (atau mitokondria) dan ekstrinsik adalah dua jalur inisiasi apoptosis (atau reseptor kematian) yang paling sering dibahas (Gambar 1). Kedua jalur tersebut pada akhirnya mengarah pada tahap eksekusi apoptosis, yang merupakan jalur umum. Jalur retikulum endoplasma intrinsik adalah jalur inisiasi ketiga yang kurang dikenal [55].

Gambar 1. Peran apoptosis dalam pengobatan kanker
Banyak caspases diaktifkan selama tahap eksekusi apoptosis. Caspase 9 memediasi jalur intrinsik, sedangkan Caspase 8 memediasi jalur ekstrinsik. Jalur intrinsik dan ekstrinsik bertemu pada caspase 3 untuk menyelesaikan apoptosis. Apoptosis nuklir disebabkan oleh degradasi inhibitor deoksiribonuklease yang diaktifkan caspase oleh caspase 3 (56). Selain itu, protein kinase, protein sitoskeletal, protein perbaikan DNA, dan subunit penghambat endonuklease dipecah oleh kaspase hilir. Selain itu, mereka mempengaruhi sitoskeleton, siklus sel, dan jalur sinyal, yang semuanya membantu membentuk perubahan morfologi spesifik yang terjadi selama apoptosis [56]. Apoptosis adalah kematian sel terprogram yang bergantung pada energi dan ditandai dengan pecahnya membran, menyusutnya kondensasi kromatin sitoplasma, dan disintegrasi inti. Apoptosis adalah proses dimana sel mati tanpa menyebabkan peradangan [57,58]. Selain itu, hal ini dapat dimulai oleh mekanisme yang dimediasi mitokondria atau reseptor kematian permukaan (DR; apoptosis ekstrinsik) (apoptosis intrinsik) [59-62]. Kedua jalur tersebut menyebabkan aktivasi kaspase eksekutif, yang membelah molekul yang terkait dengan molekul struktural dan pengatur jaringan sel apoptosis [46,63,64]. Setelah stresor patogen, apoptosis adalah mekanisme kematian sel yang membantu mempertahankan homeostasis seluler [65]. Sel-sel ganas biasanya mengalami serangkaian mutasi genetik untuk bertahan hidup terhadap rangsangan patogen. Resistensi apoptosis atau penurunan apoptosis mendorong karsinogenesis [66-68]. Sel kanker sering kali menghindari apoptosis dengan menyeimbangkan kembali keseimbangan protein pro dan anti-apoptosis. Sel kanker juga dapat menghindari apoptosis jika aktivitas caspasenya rendah dan sinyal DR-nya terganggu [62,69,70]. Protein keluarga Bcl-2, penghambat protein apoptosis (IAP), p53, algojo caspases, dan DR sering dipengaruhi oleh sel kanker. Gen molekuler dan jalur terkaitnya sangat penting dalam terapi kanker karena menyebabkan kematian sel apoptosis [71-75]. Peran khas apoptosis dalam pengobatan kanker digambarkan (Gambar 1).
3. Rumput Laut: Kontributor Utama Polisakarida Sulfat
Karena keanekaragaman hayatinya yang sangat besar dan penggunaannya sebagai makanan serta obat tradisional di seluruh dunia, rumput laut dianggap sebagai sumber bahan kimia bioaktif yang baik [76–78]. Efek terapeutik dari sejumlah bahan kimia bioaktif yang berasal dari rumput laut, ekstraknya yang belum diproses, dan polisakarida yang dimurnikan sebagian pada berbagai penyakit manusia telah diselidiki [54,79,80]. Kualitas antioksidannya membantu kemampuan produk herbal yang terbuat dari rumput laut untuk melawan penyakit. Rumput laut coklat memiliki berbagai polisakarida yang berbeda secara fisik dan fungsional, termasuk asam alginat, dan fukoidan [81,82]. Dalam bioteknologi, kedokteran, dan penyiapan makanan, polisakarida sulfat sering digunakan [83,84]. Polifenol, asam amino bebas, zat yang mengandung yodium, vitamin, dan lipid yang diisolasi dari rumput laut adalah contoh metabolit molekul rendah yang digunakan dalam pengolahan makanan dan obat-obatan [81,85]. Polisakarida sulfat aktif secara fisiologis, bercabang tinggi, komposisinya berbeda dari monosakarida, dan memiliki berat molekul lebih tinggi. Rantai panjang molekul gula yang terhubung membentuk fukoidan, yang dihiasi dengan gugus sulfat [86]. Kemampuan polisakarida sulfat untuk melawan banyak penyakit ganas terutama disebabkan oleh kemampuan antioksidannya [87-89]. Diketahui bahwa polisakarida sulfat yang berasal dari rumput laut merupakan obat antikanker yang efektif. Rumput laut mengandung berbagai polisakarida sulfat. Menurut susunan kimianya, polisakarida dikategorikan sebagai Galatia, dan xilan tersulfasi, polisakarida asam sulfat (umumnya ditemukan pada ganggang hijau). Alga coklat juga mengandung fukoidan [90]. Alga merah sering mengandung agar, karagenan, xilan, dan floridean. Beberapa polisakarida sulfat alga dapat digunakan sebagai kandidat terapi untuk mengatasi berbagai kesenjangan kesehatan manusia (91). Galaktan tersulfasi yang dikenal sebagai karagenan sering digunakan dalam industri makanan dan obat-obatan. serat larut, seperti fucan, ditemukan di rumput laut coklat. Di sisi lain, rumput laut merah kaya akan serat larut seperti xilan, pati Florida, dan galaktan tersulfasi (agar dan karagenan) [92]. Alga hijau juga mengandung xilosa, galaktosa, asam uronat, arabinosa, dan rhamnosa, serta mannan, xilan, pati, dan polisakarida dengan gugus sulfat ionik. Ada banyak jenis serat larut dan tidak larut dalam polisakarida [93,94]. Dibandingkan dengan berat keringnya, rumput laut memberikan persentase serat makanan yang lebih signifikan (antara 25% dan 75%) dibandingkan yang ditemukan pada buah-buahan dan sayuran [95]. Mengkonsumsi serat makanan dari alga memiliki banyak efek positif bagi kesehatan karena berperan sebagai antitumor, antikanker, antikoagulan, dan agen antivirus. Pada makroalga coklat, polisakarida sulfat didistribusikan secara luas di dinding sel [80]. Tindakan biologis lainnya, polisakarida sulfat bertindak sebagai antioksidan, anti-inflamasi, antikoagulan, antikanker, antivirus, antidiabetik, dan agen antitrombotik. Mereka juga mengubah sistem kekebalan tubuh manusia [7]. Selain itu, fucoidan, yang kaya akan rumput laut coklat dan merupakan sumber polisakarida sulfat terbesar kedua, meningkatkan metabolisme usus pada kesehatan manusia [94].
Kompleksitas Struktur Polisakarida Sulfat Berasal dari Rumput Laut
Penelitian semakin fokus pada polisakarida, yang ditemukan dalam rumput laut dan memiliki sifat antikanker, antioksidan, anti-koagulan, dan anti-inflamasi [7,96]. Polisakarida adalah molekul besar yang diklasifikasikan berdasarkan unit monomernya sebagai homopolisakarida, homoglikan, heteropolisakarida, atau heteroglikan. Polisakarida juga diklasifikasikan menurut asal rumput lautnya menjadi coklat, merah, hijau, atau biru. Fucoidan (polisakarida sulfat), merupakan komponen utama rumput laut coklat. Agar, xilan, karagenan, pati Floridian (glukan yang menyerupai amilopektin), galaktan sulfat yang larut dalam air, dan porfirin adalah beberapa produk yang terbuat dari alga merah. Rumput laut hijau mengandung galaktan sulfat, xilan, dan polisakarida. Rumput laut mengandung berbagai polisakarida, dengan beberapa genera—termasuk Ascophyllum, Porphyra, dan Palmaria—mengandung hingga 76% polisakarida berdasarkan berat keringnya [97].
4. Aktivitas Pencegahan Penyakit Polisakarida Sulfat: Peluru Ajaib
Sejumlah penelitian telah menunjukkan bahwa aktivitas biologis polisakarida dipengaruhi oleh berat molekul, keadaan konformasi, komposisi kimia, dan ikatan glikosidiknya [98]. Memahami hubungan antara berat molekul dan sifat-sifat penting, seperti viskositas polisakarida, konformasi, kelarutan dalam air, dan lain-lain, adalah penting dalam kanker [99,100]. Porfirin dengan berat molekul lebih rendah (LMW) memiliki sifat antioksidan yang lebih kuat [101,102]. Karena porfiran memiliki massa molekul rata-rata yang lebih rendah, ia memiliki aktivitas pemulungan ROS yang lebih signifikan [103]. Selain itu, produk sampingan dari hidrolisis asam porfirin, oligo-porfirin, memiliki potensi untuk mencegah dan mengobati sejumlah kanker. Diperlukan dosis paparan iradiasi yang lebih tinggi dan porfirin dengan berat molekul lebih rendah karena radiasi gamma merusak respon anti kanker porfirin yang berasal dari P. yezoensis [45]. Bertentangan dengan penelitian sebelumnya yang mengklaim porfirin dengan berat molekul lebih rendah memiliki aktivitas antikanker yang lebih kuat, porfirin menghambat lini sel kanker HeLa dan Hep3B dengan lebih kuat dibandingkan produk terdegradasi. Komposisi monosakarida atau sulfat tidak berubah secara signifikan [100]. Oleh karena itu, penelitian di masa depan harus fokus pada hubungan antara berat molekul porfirin dan aktivitas antikankernya. Di negara-negara Asia seperti Jepang, Tiongkok, Thailand, dan Korea Selatan, rumput laut yang dapat dimakan dinilai sebagai sumber makanan yang sehat. Perjuangan melawan kanker memerlukan penggunaan polifenol, terpen, phycobiliprotein, karotenoid, phlorotannin, pigmen, dan polisakarida [104]. Antioksidan yang ditemukan dalam sifat anti kanker rumput laut membantu menghentikan penyebaran kanker. Ketika kanker berkembang, antioksidan sangat penting karena menghambat pertumbuhan tumor tanpa menyebabkan sitotoksisitas [105]. Misalnya, model tikus sarkoma 180 berhasil diobati dengan polisakarida sulfat yang merangsang kekebalan tubuh dari Champia feldmannii tanpa sitotoksisitas [106]. Polisakarida dari Gracilaria lemaneiformis menginduksi proliferasi splenosit, fagositosis makrofag, dan penghambatan tumor. Tikus dengan transplantasi sel hepatoma H22 memiliki tingkat limfosit T IL-2 dan CD8+ yang lebih tinggi dalam darahnya [107]. Polisakarida sulfat dari C. feldmannii menunjukkan kemanjuran antikanker pada tikus Swiss secara in vitro dan in vivo. Meningkatkan produksi antibodi spesifik OVA meningkatkan kekebalan [106]. Sifat antikanker Fucoidan telah dikonfirmasi pada beragam jenis kanker, termasuk kanker perut, payudara, paru-paru, dan hati [7]. Fukoidan mendapat perhatian lebih dibandingkan porfirin dan polisakarida sulfat lainnya. Polisakarida sulfat dari alga hijau, coklat, dan merah telah menarik banyak perhatian dalam konteks ini karena sifat antikankernya. Karakteristik fisikokimia dari polisakarida sulfat yang berbeda dan potensi terapeutiknya yang luas (Tabel 1) akan mengarahkan penelitian ini. Beberapa sifat fisikokimia polisakarida tersulfasi telah dilaporkan, termasuk kelarutan ionik, ikatan silang, biokompatibilitas, nontoksisitas, sifat reologi, dan kemampuan terurai secara hayati [108-110]. Sifat-sifat ini merupakan karakteristik penting dari polisakarida sulfat yang telah memicu banyak minat dalam penerapannya. Sifat utama Fucoidan adalah ikatan silang ionik dan kelarutan [109]. Polisakarida sulfat yang larut dalam air memfasilitasi pengembangan fucoidan dan sistem pengiriman berbasis molekul bermuatan positif lainnya. Gugus sulfat Fucoidan yang bermuatan negatif, misalnya, dapat berkomunitas dengan gugus amonium kitosan untuk membentuk nanopartikel, hidrogel, dan film nutrisi untuk pengiriman nutraceutical [111,112]. Nontoksisitas merupakan sifat penting selain ikatan silang ionik dan kelarutan. Kecuali seperti yang dinyatakan sebelumnya, biodegradabilitas dan biokompatibilitas merupakan faktor penting dalam memfasilitasi penggunaan polisakarida tersulfasi dalam sistem terapeutik dan pemberian obat. Para peneliti baru-baru ini tertarik pada polisakarida sulfat karena biokompatibilitas dan biodegradabilitasnya yang sangat baik. Biodegradabilitas polisakarida sulfat dapat meningkatkan ketersediaan hayati dan efektivitas pengiriman bahan bioaktif. Depolimerisasi dan pemurnian umumnya dapat meningkatkan biodegradabilitas polisakarida sulfat dengan menurunkan berat molekulnya, namun metode ini terlalu mahal untuk digunakan secara luas (113).
Tabel 1. Karakteristik fisikokimia polisakarida sulfat dan potensi terapeutiknya serta fungsi lainnya.

Apoptosis Modulatorik Rumput Laut Berasal dari Polisakarida Sulfat
Sebagai obat antikanker, anti-angiogenik, dan anti inflamasi, polisakarida sulfat memiliki beragam efek biologis [43,114]. Polisakarida sulfat yang diisolasi dari habitat laut yang berbeda telah dipelajari secara ekstensif dan ditemukan sebagai mediator antikanker yang efektif melawan berbagai lini sel kanker dengan memodulasi banyak jalur kelangsungan hidup sel dan menginduksi apoptosis [43,46]. Oleh karena itu, polisakarida sulfat yang diisolasi dari berbagai rumput laut hijau, coklat, dan merah dari berbagai habitat laut telah dipelajari secara ekstensif karena kemampuannya mengatur jalur kematian sel secara dinamis. Polisakarida ini merupakan agen antikanker yang efektif karena memodulasi banyak jalur kelangsungan hidup sel dan menginduksi apoptosis. Polisakarida sulfat banyak digunakan dalam terapi kanker serta pengobatan presisi untuk mengembangkan obat generasi berikutnya. Rumput laut hijau: Ganggang hijau, juga dikenal sebagai Chlorophyta, adalah kelompok ganggang laut berpengaruh yang merupakan sumber polisakarida [115]. Namun, polisakarida dinding sel alga hijau kurang mendapat perhatian dibandingkan polisakarida alga merah (agaran dan karagenan) dan alga coklat (fukoidan) [96]. Meskipun demikian, studi tentang polisak karida tersulfasi yang berasal dari rumput laut hijau telah menarik minat komunitas ilmiah dalam beberapa tahun terakhir, terutama karena keragaman struktural, sifat biologis, dan fisikokimia [116]. Lebih lanjut, karena keragaman ikatan glikosidiknya yang menghasilkan struktur bercabang dan gugus sulfat terikat dengan berbagai distribusi khusus, polisakarida sulfat merupakan kandidat yang paling bioaktif dan menjanjikan (117). Ulvan adalah polisakarida sulfat yang larut dalam air dan berasal dari dinding sel alga hijau. Mereka terdapat pada tumbuhan yang termasuk dalam genera Ulva, Enteromorpha, Monostroma, Caulerpa, dan lain-lain. Mereka terdiri dari gugus disakarida berulang seperti rhamnosa tersulfasi dan asam uronat (glukuronat atau iduronat). Glikosaminoglikan, yang terdapat dalam matriks ekstraseluler jaringan ikat hewan, memiliki struktur yang sebanding dengan gugus disakarida Ivan. Beberapa bahkan juga memiliki residu xilosa yang terlihat (Gambar 2) [118]. Piruvat tinggi 1,3-D-galaktan sulfat dari biaya Codium dan polisakarida serupa dari Codium adalah thmocladium adalah dua jenis polisakarida lain yang ditemukan dalam ganggang hijau [119,120]. Sulfat -D-mannan juga telah ditemukan, seperti yang diisolasi dari Codium vermilara [121]. Struktur molekul polisakarida van sulfat ditampilkan pada Gambar 2.
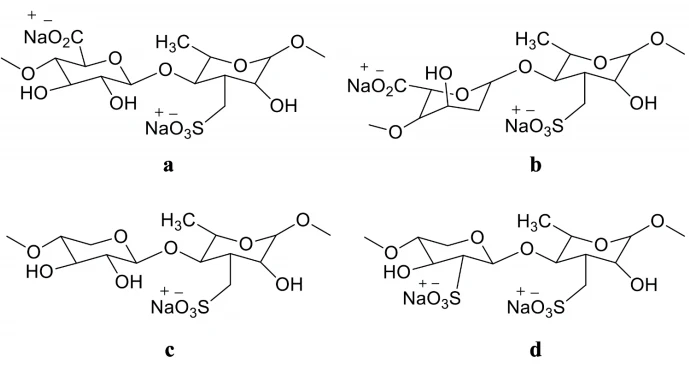
Gambar 2. Struktur molekul Ivan digambar di ChemDraw 12.0 Ultra.
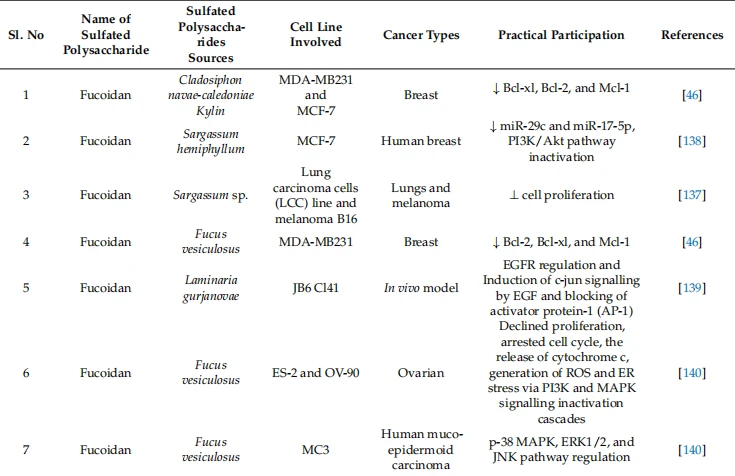
Polisakarida sulfat yang diisolasi dari berbagai ganggang hijau tropis baru-baru ini ditemukan memiliki sifat antioksidan dan antiproliferatif. Setelah 72 jam inkubasi, proliferasi sel HeLa berkurang 36,3% menjadi 58,4% oleh polisakarida yang diisolasi dari Caulerpa prolifera [122]. Dua fraksi polisakarida dari Caulerpa racemosa, sejenis alga hijau, menunjukkan aktivitas antitumor pada dosis 100 mg/kg/hari, dengan tingkat penghambatan tumor H22 yang ditransplantasikan pada tikus sebesar 59,5–83,8% (48 jam) dan 53,9% (14 hari). ), masing-masing [123]. Melalui percobaan in vivo dan in vitro, fraksi polisakarida sulfat yang larut dalam air dari Enteromorpha prolifera ditemukan dapat merangsang kekebalan. Polisakarida ini secara signifikan meningkatkan proliferasi splenosit yang diinduksi ConA dan produksi sitokin melalui peningkatan ekspresi m-RNA (124). Ulvan dari Ulva rigida menstimulasi sekresi dan aktivitas makrofag murine, meningkatkan ekspresi COX-2, dan NOS-2, dan menggandakan ekspresi beberapa sitokin lebih dari dua kali lipat [125]. Ulvan dari Ulva pertusa menstimulasi produksi oksida nitrat dan sitokin sambil menyebabkan sedikit sitotoksisitas terhadap sel tumor [126]. Beberapa penelitian tentang aktivitas antioksidan Ivan pada percobaan hepatitis yang diinduksi D-galaktosamin pada tikus telah dipublikasikan [127,128]. Polisakarida yang berasal dari ganggang hijau memiliki sifat imunomodulator dan antioksidan yang kuat, sehingga dapat digunakan untuk mencegah kanker. Aktivitas antikanker Ulvan baru-baru ini ditemukan di U. australis, U.lactuca, U. ohnoi, dan U. rigita [129]. Beberapa penelitian telah menyelidiki ulvan dalam toksisitas dan viabilitas sel untuk menguji aktivitas antikankernya, khususnya untuk aktivitas antikanker payudara, anti-kolon, dan anti-kanker serviks [129-132]. Ulvan mengandung polisakarida sulfat, yang menghambat proliferasi karsinoma hepatoseluler dan menginduksi apoptosis. Dengan menurunkan stres oksidatif, polisakarida tersulfasi melindungi hati dari kerusakan akibat DNEA [133]. Selain itu, mereka meningkatkan apoptosis, mengurangi stres oksidatif dan peradangan, dan memperkuat sistem pertahanan antioksidan pada tikus yang diobati dengan DMBA (130). Ulvan kurang toksik terhadap sel A459 dan LS174 (IC50 > 200 mg/mL), namun lebih efektif melawan sel Fem-x dan K562 (masing-masing IC50 740,73 dan 82,24 mg/mL) ketika terjadi untuk mencegah sitotoksisitas sedang [134]. Dengan nilai IC50 berkisar antara 21 hingga 99 µg/mL, bahkan berkurangnya pertumbuhan tumor pada sel MCF-7 dan HCT-116 [132] dan ikatan ligan yang kuat tampaknya menghubungkannya dengan polisakarida tersulfasi [135]. Ulvan menghambat pertumbuhan karsinoma hepatoseluler (IC50 29.67 ± 2.87 µg/mL), kanker payudara manusia (IC50 25.09 ± 1.36 µg/mL), dan kanker serviks (IC{{65 }}.33 ± 3,84 μg/mL) [131]. Namun, proliferasi atau diferensiasi sel Caco-2 dapat dihambat oleh polisakarida dengan berat molekul rendah (5000 Da), biasanya oligosakarida [129]. Polisakarida sulfat mempunyai efek antiproliferatif, namun bergantung pada jenis selnya. TP polisakarida sulfat (yang diendapkan dalam alkohol) yang diekstraksi dari alga hijau Codium Bernabei menunjukkan sitotoksisitas yang rendah pada garis sel HCT-116 dan MCF-7 dibandingkan dengan AP (yang diendapkan dalam media asam). Di sisi lain, garis sel HL-60 menunjukkan sedikit sitotoksisitas ketika terkena AP [51]. Karena aktivitas antioksidannya yang kuat, Enteromorpha spp. ekstraknya memiliki efek antiproliferatif pada lini sel kanker seperti Fem-x, A549, LS174, dan K562 [136]. Selain itu, ekstrak pelarut yang berbeda dari ekstrak kompres Enteromorpha menginduksi aktivitas antikanker melalui apoptosis pada garis sel kanker mulut Cal33 dan FaDu [38]. Rumput laut coklat: Rumput laut coklat adalah sumber polisakarida tersulfasi yang paling menjanjikan dan menunjukkan aktivitas antikanker yang paling menjanjikan terhadap berbagai lini sel kanker. Struktur polisakarida sulfat khas yang berasal dari rumput laut coklat ditampilkan (Gambar 3). Sel kanker paru-paru Lewis (LCC) dan sel melanoma B16 ditemukan sensitif terhadap fukoidan yang diisolasi dari Sargassum sp. [137]. Ini mengurangi proliferasi sel dan mendorong apoptosis yang bergantung pada dosis, seperti yang ditunjukkan oleh perubahan morfologis. Fukoidan dari S. hemiphyllum menghambat pertumbuhan kanker payudara dengan meningkatkan regulasi miR-29c dan menurunkan regulasi miR-17-5p. Selain itu, jelas bahwa setelah pemberian fukoidan, perkembangan EMT diperlambat oleh penguatan E-cadherin dan penurunan ekspresi N-cadherin. Lebih jauh lagi, aktivasi jalur fosfoinositida 3- kinase/Akt telah mendorong apoptosis pada sel kanker payudara [138]. Fucoidan dari L. gurjanovae menunjukkan efek anti-neoplastik pada sel JB6 Cl41 epidermal tikus dengan menunda fosforilasi EGFR. Ini mengontrol pensinyalan c-jun yang diinduksi EGF dan menghambat aksi protein aktivator-1 (AP-1) [139].
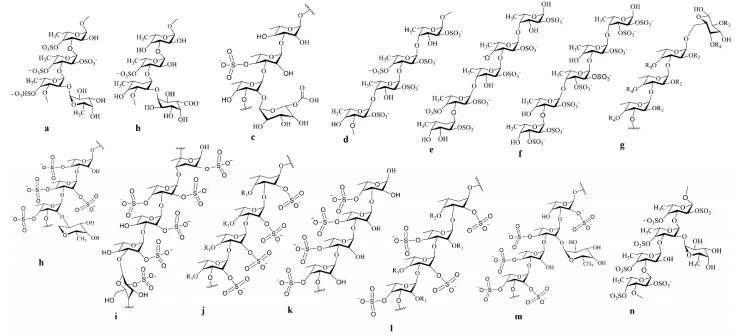
gambar 3. Struktur molekul berbagai jenis polisakarida tersulfasi seperti fukoidan, dengan potensi efek terapeutik, digambarkan dalam ChemDraw 12.0 Ultra.
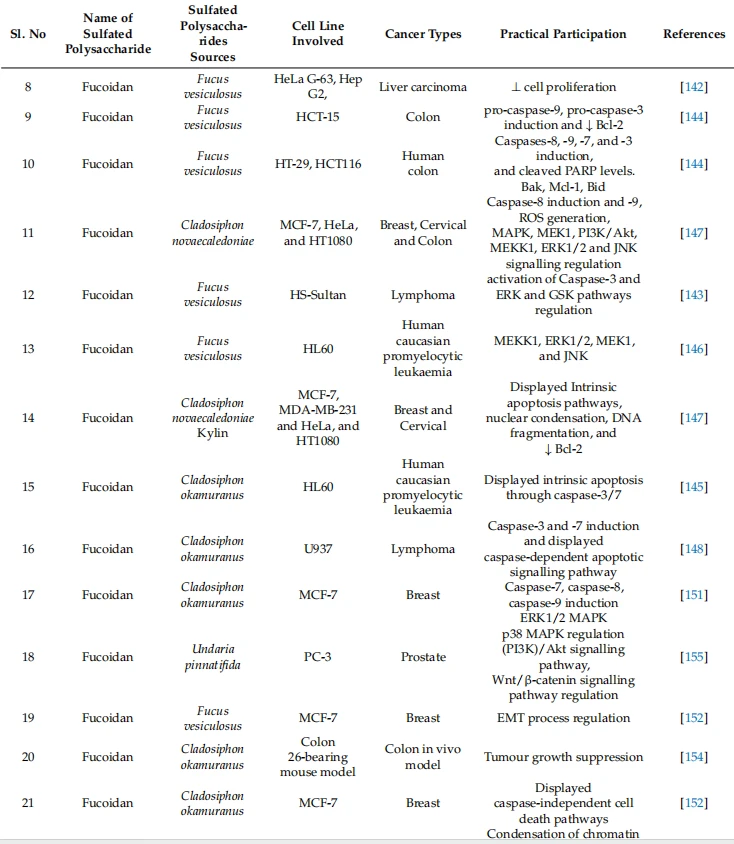
Fucoidan yang berasal dari F. vesiculosus menghambat proliferasi sel dan menghentikan siklus sel pada sel kanker ovarium (ES2 dan OV90). Ini juga menghasilkan ROS, yang mengatur apoptosis intrinsik. Dengan menekan jalur pensinyalan PI3K dan MAPK, tekanan ER juga mendorong apoptosis. Ini juga menunjukkan efek antikanker pada karsinoma mukoepidermoid manusia dengan memodifikasi jalur p-38 MAPK, ERK1/2, dan JNK (MC3) (140). Lebih lanjut, ini mengurangi jumlah kalsium dalam sitosol dan mitokondria untuk mendukung kematian sel apoptosis. Teknik ekstraksi serupa untuk fukoidan yang dihasilkan dari F. vesiculosus menunjukkan kemanjuran antikanker in vivo pada model xenograft ikan zebra dan fli1 Tg (141). Dalam sel HepG2 dan HeLa G-63, fucoidan dari Fucus vesiculosus menunjukkan aktivitas antikanker yang kuat. Fucoidan ditemukan lebih efektif pada sel kanker hati manusia (HepG2) [142]. Fucoidan dari Fucus vesiculosus meningkatkan MMP, yang menginduksi apoptosis yang bergantung pada caspase-3-dalam sel limfoma Burkitt (HS-Sultan) manusia. Lebih lanjut, laporan kematian sel apoptosis independen caspase pada sel HS-Sultan terlihat setelah pemberian fucoidan. Selain itu, fucoidan mencegah jalur ERK dan GSK terfosforilasi, keduanya diperlukan untuk aktivasi apoptosis (143). IC50 yang rendah (34 µg/mL) mengaktifkan pro-caspase-3, pro-caspase-9, dan caspase-3/7 sambil menurunkan regulasi Bcl-2 di HCT{{28 }} sel [144]. Kemampuan protein anti-apoptosis seperti Bcl-xl, Bcl-2, dan Mcl-1 untuk menyebabkan apoptosis pada sel MDA-MB231 dihambat oleh fukoidan pada IC50 (820 µg/mL) [46]. Terapi fucoidan (IC50; 20 µg/mL) menyebabkan fluktuasi serupa pada ekspresi Bad, Bcl-2, Bim, Bcl-xl, dan Bik pada garis sel kanker usus besar [144]. Fucoidan yang berasal dari C. okamuranus dikombinasikan dengan Con A, dan mempromosikan apoptosis intrinsik melalui induksi caspase-3/7 pada sel HL60 [145]. Selain itu, penipisan glutathione dan produksi NO merupakan mediator signifikan apoptosis pada sel leukemia manusia, begitu pula aktivasi MEKK1, ERK1/2, MEK1, dan JNK (146). Fucoidan dari C. novaecaledoniae diekstraksi dan digunakan untuk menginduksi apoptosis intrinsik pada sel HeLa, MCF-7, MDA-MB-231, dan HT1080. Apoptosis intrinsik ini disertai dengan MMP, fragmentasi DNA, kondensasi nuklir, dan eksternalisasi fosfatidilserin (147). C. okamuranus fucoidan menginduksi apoptosis yang bergantung pada caspase pada sel U937 dengan menginduksi jalur caspase-3 dan -7 [148]. Selain itu, ini meningkatkan imunitas yang dimediasi sel tikus, fagosit, dan proliferasi sel imun dalam model in vivo (149).

manfaat suplemen cistanche-meningkatkan kekebalan tubuh
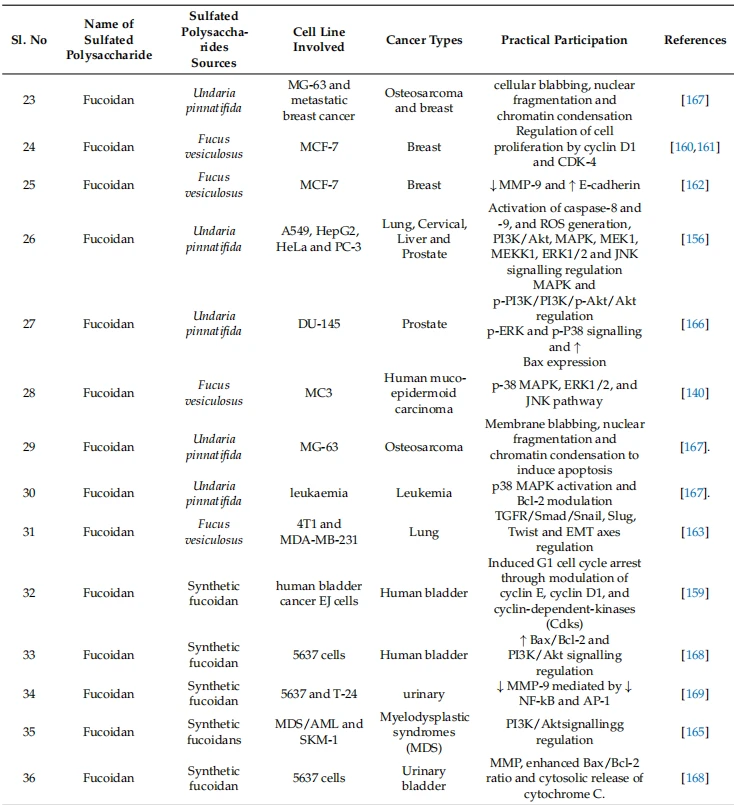
Selain itu, pada sel lambung normal (Hs 677. St), fukoidan yang diisolasi dari C. okamuranus mengurangi kerusakan sel yang disebabkan oleh 5-fluorouracil (5- FU) [150]. Dalam keadaan ini, aktivitas anti-proliferasi yang signifikan pada sel MCF-7 diamati, tanpa adanya sitotoksisitas pada sel epitel susu manusia. Terjadi peningkatan aktivitas caspase-7, caspase-8, dan caspase-9, fragmentasi DNA internukleosom, dan kondensasi kromatin di kedua garis sel [151]. Terapi fucoidan juga telah dilaporkan untuk kematian sel yang tidak bergantung pada caspase di MCF-7 [152]. Hidrolisis meningkatkan kandungan fukoidan luminal, yang merupakan mediator kemopreventif kanker usus besar karena mereka tidak mencerna fukoidan ini [153]. Terapi fucoidan (0–20 µg/mL) mendorong kematian mitokondria pada sel HT-29 dan HCT116 melalui regulasi caspase-3. Apoptosis ekstrinsik pada sel HT-29 juga telah dilaporkan baru-baru ini [144]. Sifat antikanker dari fukoidan dengan berat molekul rendah C. okamuranus (LMWF; 6,5–40 kDa), fukoidan dengan berat molekul tinggi (HMWF; 300–330 kDa), dan fukoidan dengan berat molekul menengah (IMWF; 110–138 kDa) ditunjukkan dalam a model tikus yang mengandung tumor karsinoma usus besar [154]. Fucoidan (MW 5100 kDa) dari U. pinnatifida menginduksi apoptosis pada sel kanker prostat manusia (PC-3) melalui induksi ERK1/2 MAPK, penghambatan p38 MAPK, dan jalur PI3K/Akt. Lebih jauh lagi, downregulasi jalur Wnt/-catenin membantu kemajuan apoptosis [155]. Fucoidan juga memperkuat jalur p21Cip1/Waf di sel PC-3. Selain itu, ini mengurangi protein terkait siklus sel E2F-1 sekaligus meningkatkan jalur Wnt/-catenin. Aktivasi GSK-3 mengurangi ekspresi c-MYC, dan cyclin D1, yang membantu aktivitas anti-proliferasi [156]. Fukoidan ini ditemukan memiliki aktivitas antikanker pada sel HeLa, A549, dan HepG2 dengan mengubah jalur sinyal seluler penting yang disebutkan sebelumnya [157]. Fucoidan dari F. vesiculosus menginduksi apoptosis pada lini sel kanker termasuk NB4, THP-1, dan HL-60. Administrasi Fucoidan mengaktifkan caspases-3, -8, dan -9, membelah Bid, dan mengubah MMP dalam sel HL-60. Inisiasi apoptosis memiliki efek yang sebanding pada sel U937. Selain itu, pada sel U937, terapi fukoidan meningkatkan MMP (potensi membran mitokondria) dan pelepasan sitokrom C sitosol, serta rasio Bax/Bcl-2. Inhibitor caspase, di sisi lain, menunda permulaan apoptosis, menunjukkan bahwa aktivitas caspase yang diatur oleh fukoidan bertanggung jawab untuk induksi apoptosis. Selain itu, pengobatan dengan SB203580, penghambat MAPK p38 spesifik, bertanggung jawab atas pengurangan apoptosis, menunjukkan pentingnya MAPK dalam mengaktifkan apoptosis (158). Terapi fucoidan menghambat siklus sel G1 dalam sel EJ dengan mempengaruhi cyclin D1, cyclin E, dan Cdks (cyclin-dependent kinases). Selain itu, ia menghambat fosforilasi Rb, yang mengakibatkan penuaan sel [159]. Fukoidan dari F. vesiculosus menghambat pertumbuhan sel MCF-7 dengan menghentikan siklus sel pada fase G1 dan menurunkan kadar CDK-4 dan cyclin D1. Lebih jauh lagi, dengan memecah PARP dan Bid, menurunkan Bcl-2, dan meningkatkan Bax, hal ini menginduksi apoptosis yang bergantung pada ROS. Sel MCF-7 menunjukkan permulaan apoptosis intrinsik melalui regulasi caspase-7, -8, dan -9 serta pelepasan sitokrom C sitosol [160,161]. Lebih lanjut, fukoidan dari terapi F. vesiculosus mengurangi migrasi dan invasi sel serta EMT dalam sel MCF-7 dengan menurunkan regulasi MMP-9 dan mengekspresi E-cadherin secara berlebihan [162]. Fucoidan yang berasal dari F. vesiculosus menghambat pertumbuhan sel tikus Balb/c betina MDA-MB-231 dan 4T1xenograft, sehingga perkembangan nodul paru-paru yang bermetastasis lebih sedikit. Kemunduran efektif EMT yang diinduksi TGFR dicapai secara mekanis dengan menurunkan regulasi TGFRII dan TGFRI. Kasus-kasus yang disebutkan di atas semuanya dikaitkan dengan peningkatan regulasi penanda epitel dan fosforilasi ekspresi Smad2/3 Smad4, fosforilasi ekspresi Smad2/3 Smad4, dan molekul pemberi sinyal hilir (163). Selain itu, aktivasi caspase-3, pelepasan sitokrom C sitosol, penurunan regulasi Bcl-2, dan peningkatan ekspresi Bax menginduksi apoptosis. Selain itu, regulasi ekspresi VEGF, Survivin, dan ERK membantu dimulainya apoptosis (164). Dalam garis sel MDS/AML dan SKM1, pengobatan dengan fucoidan yang dipasarkan (100 μg/mL selama 48 jam) menyebabkan penghentian siklus sel (fase G1) dan dorongan Fas untuk menginduksi apoptosis ekstrinsik melalui modulasi caspase 8 dan 9. Lebih lanjut, hal ini mempengaruhi jalur PI3K/Akt dengan cara yang bergantung pada ROS, sehingga mendorong apoptosis (165). Ini mengubah p-Akt, p-PI3K, p-P38, dan p-ERK, untuk memodulasi jalur pensinyalan MAPK dan PI3K/Akt dalam sel DU-145 (kanker prostat). Selain itu, ini meningkatkan ekspresi Bax sekaligus mengurangi ekspresi Bcl-2, pembelahan PARP, dan caspase-9 dengan cara yang bergantung pada konsentrasi [166]. Pemberian fucoidan menginduksi apoptosis pada sel osteosarkoma (MG-63) (dibuktikan dengan pengotoran sel, disintegrasi nuklir, dan kondensasi kromatin) [167]. Pengobatan dengan fukoidan sintetik yang dipasarkan meningkatkan apoptosis yang diatur ROS pada sel kanker kandung kemih manusia (5637) dengan mengaktifkan potensi membran mitokondria (MMP), meningkatkan rasio Bax/Bcl-2, dan meningkatkan pelepasan sitokrom C sitosol. Lebih lanjut, penghambatan aktivitas pensinyalan PI3K/Akt dan anti-telomerase mendorong kematian sel apoptosis pada 5637 sel kanker kandung kemih manusia melalui penurunan regulasi Aktivitas telomerase (168). Lebih jauh lagi, aktivasi sinyal AKT diklaim sangat penting dalam menghambat proliferasi dan menekan kemampuan sel kanker kandung kemih untuk bermigrasi dan menyerang (169). Fucoidan menghambat siklus sel pada sel 5637 dan T-24 (karsinoma kandung kemih manusia) dengan mengubah ekspresi p21/WAF1, cyclins, dan CDK. Lebih lanjut, penghambatan MMP-9 melalui AP-1 dan NF-kB mengurangi proliferasi sel kanker kandung kemih [169]. Polisakarida sulfat dari alga coklat sebagai agen antikanker yang ampuh ditampilkan pada Tabel 2.
Tabel 2. Polisakarida sulfat dari alga coklat sebagai agen antikanker yang ampuh. ↑: upregulasi, ↓: Downregulasi, ⊥: Penghambatan
Rumput laut merah: Porphyran adalah polimer yang ditemukan di Porphyra sp., rumput laut merah. Porfiran adalah galaktosa yang telah banyak digantikan oleh L-galaktosa 6-O-sulfasi dan 6-O-metilasi [100]. Struktur berulang khas porfiran ditampilkan (Gambar 4). Porphyran diekstraksi dari rumput laut merah menggunakan ekstraksi air panas, perlakuan ultrasonik, dan degradasi radikal. Penelitian pada manusia telah menunjukkan sifat antikanker, hipolipidemik, dan anti-inflamasi dari porfiran [170]. Ketika dikonsumsi secara oral, porphyran melindungi hati tikus ICR dari efek diet tinggi lemak, menunjukkan bahwa porphyran mungkin digunakan sebagai komponen diet hipolipidemik [171].

Gambar 4. Struktur molekul berbagai jenis porfiran dengan potensi efek terapeutik digambarkan dalam Chemdraw 12.0 Ultra.
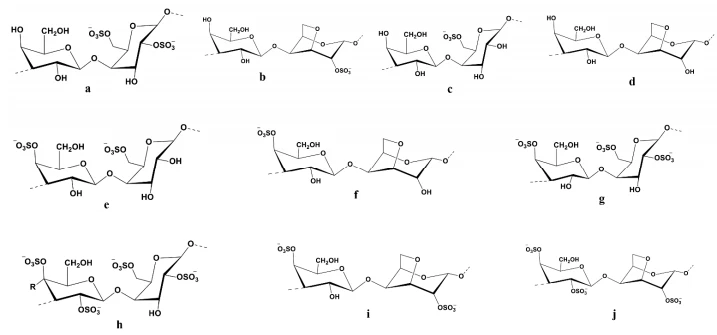
Gambar 5. Struktur molekul berbagai jenis karagenan dengan potensi efek terapeutik digambarkan dalam ChemDraw 12.0 Ultra. Struktur Polimer dari struktur molekul karagenan yang berbeda sebagai Υ-karagenan (a); -karagenan (b); δ-karagenan (c); -karagenan (d); µ-karagenan (e); κ-karagenan (f); ν-karagenan (g); ι-karagenan (h); λ-karagenan (i); dan θ-karagenan (j).
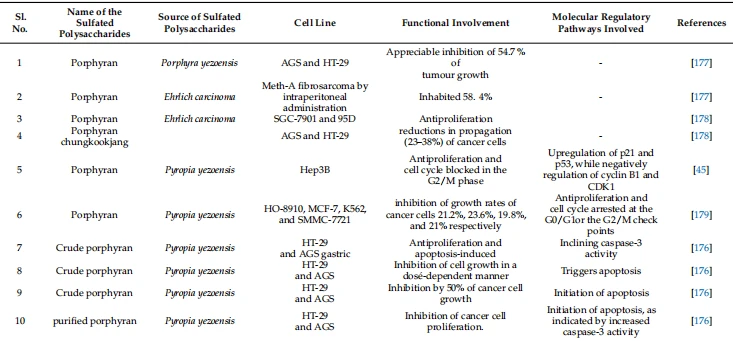
Kanker diketahui dipercepat oleh radikal bebas dan ROS (spesies oksigen reaktif). Obat kemopreventif sintetik biasanya menimbulkan efek samping yang tidak diinginkan pada lingkungan tumor karena selektivitasnya yang rendah dan biodistribusi yang luas (173). Porphyrin adalah agen kemopreventif yang poten karena pengaruhnya terhadap proliferasi sel, siklus sel, dan induksi apoptosis (174). Alga merah Porphyra yezoensis dapat menginduksi kematian sel apoptosis pada garis sel kanker secara in vitro namun tidak menyebabkan sitotoksisitas pada sel normal. Secara umum, porfirin tidak beracun bagi sel sehat, namun beracun bagi sel kanker, menyebabkan kematian sel tergantung dosis [175]. Selain itu, telah dibuktikan bahwa porfirin menghambat pertumbuhan sel secara keseluruhan sambil menginduksi apoptosis pada sel kanker perut manusia AGS (175). Dalam sel AGS, jalur Akt/reseptor faktor pertumbuhan-I seperti insulin meningkatkan pembelahan PARP dan aktivasi caspase-3, yang mendorong kematian sel [175]. Sejumlah penelitian telah menunjukkan sifat antitumor dan antikanker dari porfirin dan oligosakaridanya. Porphyrin dapat mendorong pembelahan poli (ADP-ribosa) polimerase dan aktivasi caspase 3 pada sel kanker lambung. Dengan mengurangi tingkat ekspresi sel AGS (kanker lambung), porfirin dapat memperlambat pertumbuhan sel kanker. Hal ini kemudian akan mencegah fosforilasi IGF-IR dan mengaktifkan caspase 3 (175). Porfirin kasar dan murni memiliki aktivitas antiproliferatif pada sel HT-29 dan AGS secara in vitro. Apoptosis diinduksi oleh komponen polisakarida porfirin mentah, seperti yang ditunjukkan oleh peningkatan aktivasi caspase-3 [176]. Porphyrin menghambat proliferasi sel HT-29 dengan mengaktifkan caspase-3 [176]. Porphyrin telah terbukti efektif melawan karsinoma sel Ehrlich (EAC) dan fibrosarkoma Meth-A pada model tumor tikus (177).
Cistanche yang hidup di gurunTubulosa
Klik di sini untuk melihat produk Cistanche
【Minta lebih lanjut】 Email:cindy.xue@wecistanche.com / Aplikasi WhatsApp: 0086 18599088692 / Wechat: 18599088692
Porfirin alami ditemukan tidak berpengaruh pada MDA-MB-231, sedangkan dua produk penguraian berdampak ketika porfirin dan dua OP (Oligo-porfirin) yang dihasilkan oleh iradiasi gamma diuji aktivitas antikankernya. Dengan mencegah siklus sel memasuki fase G2/M, OP memiliki kapasitas untuk mengurangi pertumbuhan sel [45]. Hasilnya, UM porphyran menunjukkan dampak yang signifikan terhadap kemanjuran antikankernya. OP dengan upah rendah khususnya efektif melawan kanker; Namun, porfirin makromolekul tidak memiliki aktivitas antitumor. Selain itu, aktivitas antikanker porfirin ditemukan, dengan porfirin terutama bertindak sebagai obat antikanker dengan menghambat pertumbuhan sel dan merangsang apoptosis [180]. Karagenan telah ditunjukkan dalam banyak penelitian memiliki aktivitas antiproliferatif pada lini sel kanker secara in vitro dan efektivitas penghambatan pertumbuhan tumor pada tikus [181-183]. Mereka juga memiliki efek antimetastatik dengan mencegah sel kanker terhubung dengan membran basal dan membatasi penyebaran dan adhesi sel tumor ke substrat yang berbeda; namun, mekanisme tindakan yang tepat masih belum diketahui. Karagenan dari Kappaphycus alvarezii ditemukan dapat mencegah pertumbuhan sel kanker dari hati, usus besar, payudara, dan osteosarkoma [184]. Yamamoto dkk. (1986) menemukan bahwa mengonsumsi berbagai rumput laut secara oral secara signifikan mengurangi terjadinya karsinogenesis in vivo [185]. Hagiwara dkk. (2001) [186] meneliti efek karagenan pada karsinogenesis kolon pada tikus jantan. Pengobatan tidak berpengaruh pada gejala klinis atau berat badan. Menurut penelitian histologis, karagenan tidak memiliki aktivitas karsinogenesis kolorektal yang mendorong pada asupan makanan maksimum 5,0% dalam pengaturan percobaan yang ada [186]. Karagenan telah terbukti dalam beberapa penelitian memiliki efek sitotoksik spesifik pada sel kanker. Dalam penelitian tersebut, dosis 250-2500 µg/mL k-karagenan dan λ-karagenan menghambat sel kanker serviks manusia dengan menghentikan siklus sel pada tahap tertentu dan menunda penyelesaiannya [47]. k-karagenan menunda siklus sel (tahap G2/M), sedangkan λ-karagenan menunda tahap G1 dan G2/M. Namun, k-selenocarrageenan (selenocarrageenan yang mengandung selenium) menghambat perbanyakan sel dalam sel hepatoma manusia. Siklus sel dihentikan selama fase S dari siklus sel [187]. Namun penelitian in vivo dan in vitro mengungkap bahwa karagenan asli tidak memiliki efek anti-proliferasi yang terlihat pada garis sel osteosarkoma manusia. Karena penurunan jalur pensinyalan Wnt/-catenin, apoptosis terdegradasi yang diinduksi karagenan menghambat pertumbuhan tumor, dan menghentikan fase G1 dari siklus sel, yang semuanya meningkatkan jumlah tikus yang mengandung tumor (188). Angiogenesis adalah langkah penting dalam perkembangan kanker. Akibatnya, aktivitas anti-angiogenik dalam pengobatan kanker sedang diteliti secara ekstensif. Karagenan adalah penghambat angiogenesis karena aktivitas anti-angiogeniknya lebih tinggi dibandingkan suramin [189,190]. Dalam model CAM (membran chorioallantoic ayam), hasil anti-angiogenik oligosakarida k-karagenan pada sel ECV304 ditunjukkan membatasi proliferasi, migrasi, dan pembentukan tabung sel [191]. Lebih jauh lagi, dengan mengatur secara negatif bFGFR manusia, bFGF, CD105, dan VEGF, oligosakarida menghambat pembentukan pembuluh darah baru pada tumor MCF-7 xenograft. Sel endotel vena umbilikalis manusia diobati dengan oligosakarida λ-karagenan pada konsentrasi yang relatif rendah (150-300 µg/mL), yang memiliki dampak buruk pada perkembangan sel endotel pembuluh darah tumor [192]. Jumlah dan posisi sulfasi, serta berat molekul, mempengaruhi aktivitas biologis polisakarida tersulfasi. Perubahan kimia, dengan kata lain, mengubah aktivitas biologis karbohidrat [193]. Misalnya, λ-karagenan dapat dipecah menjadi lima senyawa berbeda dengan berat molekul berbeda-beda, yang semuanya memiliki sifat antikanker, kemungkinan besar disebabkan oleh imunomodulasi. Produk dengan berat molekul lebih rendah, seperti produk dengan berat molekul 15 dan 9,3 kDa, menunjukkan sifat antikanker dan imunomodulator yang unggul [193]. Sulfasi, asetilasi, dan fosforilasi meningkatkan sifat anti kanker dan imunomodulator oligosakarida k-karagenan dari Kappaphycus striatum. Modifikasi kimia juga meningkatkan aktivitas oksidan oligosakarida k-karagenan [194]. Polisakarida sulfat dari ganggang merah dan modulasi apoptosisnya dalam terapi kanker ditampilkan pada Tabel 3. Induksi apoptosis adalah mekanisme yang diadopsi oleh kemopreventif. Polisakarida sulfat berbeda yang berasal dari rumput laut berbeda memicu apoptosis pada beragam lini sel kanker (Gambar 6). Polisakarida sulfat menunjukkan peran kemopreventif yang berbeda pada kanker (Gambar 7).

Gambar 6. Modulasi apoptosis oleh polisakarida sulfat berbeda yang berasal dari rumput laut berbeda dalam pencegahan kanker.

Gambar 7. Polisakarida sulfat menunjukkan peran kemopreventif yang berbeda pada kanker.
Tabel 3. Polisakarida sulfat dari alga merah dan modulasi apoptosisnya pada terapi kanker

5. Sintesis Nanopartikel dengan Menggunakan Polisakarida Sulfat dan Dampaknya terhadap Khasiat Terapi Kanker
Tiga pengobatan kanker utama yang tersedia saat ini adalah pembedahan, kemoterapi, dan terapi radiasi; Namun, kemoterapi belum menjadi pengobatan utama kanker dalam beberapa tahun terakhir karena tingkat bahayanya terhadap sel-sel normal yang sehat. Nanopartikel telah muncul sebagai teknik alternatif untuk mengatasi sel kanker saja, meningkatkan ketersediaan obat untuk sel kanker sekaligus menyelamatkan sel sehat dari bahaya [195]. Rumput laut merupakan sumber umum polisakarida sulfat alami, namun ada juga sumber lain. Banyak aplikasi biologis dan biomedis telah diselidiki untuk Ivan, karagenan, porfirin, fukoidan, dan turunannya lainnya dalam pengelolaan luka, rekayasa jaringan, penghantaran obat, dan biosensor [196]. Polisakarida rumput laut mudah berinteraksi dengan jaringan biologis karena mereka memiliki kelompok permukaan hidrofilik seperti karboksil, hidroksil, dan sulfat [197]. Teknik persiapan yang menghasilkan nanopartikel polisakarida tersulfasi dengan sifat yang diinginkan untuk sistem penghantaran obat yang efisien telah mendapat banyak perhatian [198,199]. Gelasi ionik biasanya merupakan proses yang mudah dan lembut untuk membuat nanopartikel polisakarida tersulfasi. Namun, untuk membuat nanopartikel berbasis ulvan, fukoidan, porfirin, dan karagenan dengan bentuk yang diinginkan, optimalisasi proses sangatlah penting. Optimalisasi dapat dilakukan dengan mengatur pH, suhu, konsentrasi ion kalsium, konsentrasi polisakarida sulfat, kecepatan penambahan, dan kecepatan pengadukan. Sel MCF7 dan HepG2 dihambat untuk berproliferasi oleh van dalam albumin nanopartikel karena peningkatan kadar caspase-8 dan caspase-9, yang menunjukkan induksi apoptosis [129]. Saat membuat nanopartikel emas (AuNps), yang digunakan sebagai sistem penghantaran obat untuk pengobatan antikanker, porfirin juga dapat digunakan sebagai zat pereduksi. Misalnya, garis sel glioma manusia lebih beracun terhadap AuNps yang dilapisi porfirin (LN-229). Hasilnya, AuNps yang tertutup porfirin dikembangkan dan digunakan sebagai pembawa obat antikanker doxorubicin hidroklorida [200]. Inhibitor timidilat sintase yang disebut 5-fluorouracil (5-FU) telah digunakan untuk mengobati kanker sejak lama, namun penggunaannya telah dibatasi karena efek sampingnya [201]. Untuk membuat makromolekul yang larut dalam air untuk prodrug 5-FU, AuNps yang tertutup porfirin dapat digunakan sebagai pembawa obat, menunda pelepasan 5-FU dan meminimalkan efek samping [202]. AuNP yang tertutup porfiran ditemukan aman dalam studi sitotoksisitas in vitro, menunjukkan bahwa mereka dapat digunakan sebagai sistem penghantaran obat (203). Oleh karena itu, penggunaan porfirin sebagai pembawa zat pereduksi dalam penghantaran obat tidak menimbulkan efek buruk dan memungkinkan obat antikanker bekerja lebih cepat. Porphyran fucoidan, dan nanopartikel berbasis karagenan khususnya telah diselidiki secara menyeluruh untuk pemberian obat anti kanker (Tabel 4).
Tabel 4. Sintesis nanopartikel dengan menggunakan polisakarida sulfat dan dampaknya terhadap kemanjuran terapi kanker.

6. Keterbatasan Penelitian Polisakarida Sulfat dan Perluasan Masa Depan dalam Pencegahan Kanker
Meskipun polisakarida sulfat mempunyai banyak kegunaan dalam pengobatan, kemampuan bioavailnya yang rendah membuat polisakarida tersebut tidak praktis untuk digunakan dalam kehidupan sehari-hari. Struktur polisakarida sulfat yang berbeda mempengaruhi seberapa baik mereka diserap di berbagai organ [7]. Selain itu, fluktuasi terus menerus dalam dosis efektif baik dalam aplikasi in vitro dan in vivo membahayakan uji klinis mereka [7]. Efektivitas polisakarida sulfat in vitro sering tidak direplikasi dalam studi praklinis atau klinis [215]. Selain itu, metabolisme intraselulernya yang lambat dan kelarutannya yang terbatas membuat aplikasi klinis menjadi lebih menantang [216]. Lebih penting lagi, aplikasi terapeutiknya yang luas adalah hasil dari spesifisitas seluler dan selektivitas target molekulernya. Tergantung pada kondisi seluler, jaringan, dan tumor, bahan kimia bioaktif ini memiliki cara berbeda dalam menyebabkan kematian sel [216]. Selain itu, studi klinis akan lebih berhasil ketika fungsi kerja monospesifik dan multispesifik dipahami [216]. Analog sintetik dari polisakarida tersulfasi mungkin lebih tersedia secara hayati jika dibuat dan diuji [217]. Untuk meningkatkan bioavailabilitas dan spesifisitas target, polisakarida tersulfasi dan ekuivalen sintetiknya dapat memperoleh manfaat dari penggunaan mikroemulsi, pembawa nano, polimer, liposom, dan misel (218). Teknik-teknik ini, menurut pendapat kami, akan lebih sering digunakan di masa depan untuk membuat nanopartikel berbasis polisakarida. Dalam hal memberikan obat antikanker dengan peningkatan bioavailabilitas, nanopartikel berbasis polisakarida rumput laut telah menunjukkan hasil yang menjanjikan (170). Teknik-teknik ini juga akan meningkatkan metabolisme mereka dalam sistem inang dan kelarutannya [170]. Selain itu, kemanjuran apoptosis praklinis dan klinis akan ditingkatkan dengan spesifisitas targetnya. Menggabungkan polisakarida sulfat dengan obat yang telah mendapat persetujuan FDA dapat meningkatkan efektivitas klinis secara signifikan [170]. Selain itu, polisakarida sulfat, bila ditambahkan atau digunakan sebagai bahan pembantu dalam makanan, akan meningkatkan kemanjuran terapeutik obat-obatan modern [170].
Manfaat cistanche tubulosa-Antitumor
7. Kesimpulan dan Perspektif Masa Depan
Sistem terapi kanker saat ini telah mengidentifikasi polisakarida sulfat sebagai sumber terpercaya untuk menemukan molekul obat bioaktif dengan berbagai efek kemoterapi pada berbagai penyakit ganas. Lebih dari separuh obat-obatan yang disetujui FDA dalam beberapa tahun terakhir telah diekstraksi langsung dari sumber laut atau dibuat menggunakan bahan kimia. Isolasi dan penggunaan senyawa sulfat ini dari sumber laut memiliki bioavailabilitas yang lebih besar, komposisi kimia yang terdiversifikasi, dan sitotoksisitas non-reduktor. Karena karakteristik ini, polisakarida sulfat yang berasal dari rumput laut bertindak sebagai farmakofor utama dalam mengobati berbagai penyakit ganas. Namun, hambatan yang signifikan terhadap pemanfaatan farmasi adalah ketersediaan hayati, peningkatan pemisahan, kebersihan isolat, dan selektivitas target sebagai spesifisitas multi-target obat dan konteks sel/jaringan/kanker. Selain itu, mereka memainkan peran penting sebagai mediator yang dapat memberikan obat karena beragamnya intervensi terapeutik, produksi komersial berbiaya rendah, dan aplikasi pra-klinis dan klinis yang menjanjikan. Sementara itu, ada optimisme untuk mengkomersialkan polisakarida tersulfasi dari rumput laut laut karena banyaknya organisme yang dipanen di dalam dan di luar lokasi serta biaya pemeliharaan budidaya yang rendah. Selain itu, pembuatan polisakarida sulfat dalam skala besar untuk kemoterapi menjadi lebih efektif dengan penerapan sintesis kimia polisakarida ini di luar jangkauan. Dengan munculnya prospek baru untuk isolasi dan skrining polisakarida tersulfasi dari rumput laut sebagai agen farmakologi inovatif melawan berbagai jenis kanker, penggunaan kemoterapi dari agen prospektif tersebut kemungkinan akan berkembang dalam waktu dekat. Selain itu, nanopartikel berbasis polisakarida sulfat yang dimediasi nanopartikel mampu melepaskan obat secara berkelanjutan, stabilitas tinggi, dan biokompatibilitas, yang semuanya akan digunakan dalam uji klinis di masa depan. Bagian yang ditargetkan akan meningkatkan kemanjuran terapeutik nanopartikel berbasis polisakarida sekaligus meminimalkan efek samping yang tidak diinginkan. Selain itu, menciptakan kandidat obat semacam itu akan meningkatkan obat-obatan yang tersedia saat ini demi kemajuan pengobatan yang dipersonalisasi dan presisi.
Referensi
1. Younossi, ZM; Corey, KE; Lim, JK AGA pembaruan praktik klinis tentang modifikasi gaya hidup menggunakan diet dan olahraga untuk mencapai penurunan berat badan dalam pengelolaan penyakit hati berlemak nonalkohol: Tinjauan ahli. Gastroenterologi 2021, 160, 912–918. [Ref Silang] [PubMed]
2. Blix, H. Verifikasi non-proliferasi nuklir: Mengamankan masa depan. Banteng IAEA. 1992, 34, 2–5.
3. Organisasi Kesehatan Dunia. Laporan Status Global tentang Alkohol dan Kesehatan 2018; Organisasi Kesehatan Dunia: Jenewa, Swiss, 2019.
4. Edwards, BK; Tidak ada, saya; Mariotto, AB; Simard, EP; Boscoe, FP; Henley, SJ; Jemal, A.; Cho, H.; Anderson, RN; Kohler, BA Laporan Tahunan kepada Negara tentang status kanker, 1975–2010, menampilkan prevalensi penyakit penyerta dan dampak terhadap kelangsungan hidup di antara penderita kanker paru-paru, kolorektal, payudara, atau prostat. Kanker 2014, 120, 1290–1314. [Ref Silang] [PubMed]
5. Delgermaa, V.; Takahashi, K.; Park, E.-K.; Le, GV; Hara, T.; Sorahan, T. Kematian mesothelioma global dilaporkan ke Organisasi Kesehatan Dunia antara tahun 1994 dan 2008. Bull. Organ Kesehatan Dunia. 2011, 89, 716–724. [Ref Silang] [PubMed]
6. Pradhan, B.; Nayak, R.; Patra, S.; Jit, BP; Ragusa, A. Metabolit Bioaktif dari Alga Laut sebagai Farmakofor Ampuh Melawan Penyakit Manusia Terkait Stres Oksidatif: Tinjauan Komprehensif. Molekul 2020, 26, 37. [CrossRef]
7. Pradhan, B.; Patra, S.; Nayak, R.; Behera, C.; Dash, SR; Nayak, S.; Sahu, BB; Bhutia, SK; Jena, M. Peran multifungsi fucoidan, polisakarida tersulfasi dalam kesehatan dan penyakit manusia: Sebuah perjalanan di bawah laut untuk mencari agen terapi yang ampuh. Int. J.Biol. makromol. 2020, 164, 4263–4278. [Referensi Silang]
8. Patra, S.; Bhol, CS; Panigrahi, DP; Praharaj, PP; Pradhan, B.; Jena, M.; Bhutia, Iradiasi SK Gamma meningkatkan potensi sensitisasi kemo asam galat melalui pelemahan fluks autophagic untuk memicu apoptosis dalam jalur sinyal inaktivasi NRF2. Radikal Bebas. biologi. medis. 2020, 160, 111–124. [Referensi Silang]
9. Srivastava, A.; Rikhari, D.; Pradhan, B.; Bharadwaj, KK; Gaballo, A.; Kuarta, A.; Jena, M.; Srivastava, S.; Ragusa, A. Wawasan tentang Inhibitor Neuropeptida dalam Biologi Kanker Kolorektal: Perspektif Peluang dan Translasional. Aplikasi. Sains. 2022, 12, 8990. [Referensi Silang]
10. Gutiérrez-Rodríguez, AG; Juárez-Portilla, C.; Olivares-Bañuelos, T.; Zepeda, RC Aktivitas antikanker rumput laut. Penemuan Narkoba. Hari ini 2018, 23, 434–447. [Referensi Silang]
11. Jit, BP; Pattnaik, S.; Arya, R.; Dash, R.; Sahoo, SS; Pradhan, B.; Bhuyan, PP; Behera, PK; Jena, M.; Sharma, A.; dkk. Fitokimia: Agen generasi berikutnya yang potensial untuk proteksi radio. fitom. Int. J. Phytother. Fitofarm. 2022, 2022, 154188. [CrossRef] [PubMed]
12. Jit, BP; Pradhan, B.; Dash, R.; Bhuyan, PP; Behera, C.; Behera, RK; Sharma, A.; Alcaraz, M.; Jena, M. Fitokimia: Modulator Terapi Potensial Jalur Sinyal yang Diinduksi Radiasi. Antioksidan 2022, 11, 49. [CrossRef] [PubMed]
13. Panigrahi, GK; Yadav, A.; Mandal, P.; Tripati, A.; Das, M. Potensi imunomodulator rhein, bagian antrakuinon dari biji Cassia occidentalis. beracun. Biarkan. 2016, 245, 15–23. [Ref Silang] [PubMed]
14. Ovadje, P.; Roma, A.; Steckle, M.; Nicoletti, L.; Arnason, JT; Pandey, S. Kemajuan dalam penelitian dan pengembangan produk kesehatan alami sebagai terapi kanker utama. Jelas. Pelengkap Berbasis. Alternatif. medis. 2015, 2015, 751348. [CrossRef] [PubMed]
15. Patra, S.; Nayak, R.; Patro, S.; Pradhan, B.; Sahu, B.; Behera, C.; Bhutia, SK; Jena, M. Keanekaragaman kimia fitokimia makanan dan cara kemoprevensinya. Bioteknologi. Rep.(Amst.Net.) 2021, 30, e00633. [Referensi Silang]
16. Patra, S.; Pradhan, B.; Nayak, R.; Behera, C.; Das, S.; Patra, SK; Efferth, T.; Jena, M.; Bhutia, SK Polifenol makanan dalam kemoprevensi dan efek sinergis pada kanker: Bukti klinis dan mekanisme aksi molekuler. fitom. Int. J. Phytother. Fitofarm. 2021, 90, 153554. [CrossRef] [PubMed]
17. Patra, S.; Pradhan, B.; Nayak, R.; Behera, C.; Panda, KC; Das, S.; Jena, M. Apoptosis dan autophagy memodulasi fitokimia makanan dalam terapi kanker: Bukti saat ini dan perspektif masa depan. fitother. Res. 2021, 35, 4194–4214. [Referensi Silang]
18. Patra, S.; Pradhan, B.; Nayak, R.; Behera, C.; Rute, L.; Jena, M.; Efferth, T.; Bhutia, SK Khasiat kemoterapi kurkumin dan resveratrol terhadap kanker: Kemoprevensi, kemoproteksi, sinergisme obat dan farmakokinetik klinis. Dalam Prosiding Seminar Biologi Kanker; Pers Akademik: Cambridge, MA, AS, 2021; hal.310–320.
19.Wilson, RM; Danishefsky, SJ Produk alami molekul kecil dalam penemuan agen terapeutik: Hubungan sintesis. J.Org. kimia. 2006, 71, 8329–8351. [Ref Silang] [PubMed]
20. Simmons, TL; Andrianasolo, E.; McPhail, K.; Datar, P.; Gerwick, WH Produk alami kelautan sebagai obat antikanker. mol. Kanker Ada. 2005, 4, 333–342. [Referensi Silang]
21. Carroll, AR; Polisi, BR; Davis, RA; Keyzer, RA; Prinsep, MR Produk Alami Kelautan. Nat. Melecut. Ulangan 2019, 36, 122–173. [Ref Silang] [PubMed]
22. Shinde, P.; Banerjee, P.; Mandhare, A. Produk alami laut sebagai sumber obat baru: Tinjauan paten (2015–2018). Pendapat Ahli. Ada. Menepuk. 2019, 29, 283–309. [CrossRef] 23. Pradhan, B.; Kim, H.; Abbasi, S.; Ki, J.-S. Efek Toksik dan Aktivitas Promosi Tumor Racun Fitoplankton Laut: Suatu Tinjauan. Racun 2022, 14, 397. [CrossRef]
24. Pradhan, B.; Nayak, R.; Bhuyan, PP; Patra, S.; Behera, C.; Sahoo, S.; Ki, J.-S.; Kuarta, A.; Ragusa, A.; Jena, M. Algal Phlorotannins sebagai Agen Antibakteri Baru mengenai Modulasi Antioksidan: Kemajuan Saat Ini dan Arah Masa Depan. Maret Narkoba 2022, 20, 403. [CrossRef] [PubMed]
25. Pradhan, B.; Ki, J.-S. Racun Fitoplankton dan Potensi Aplikasi Terapinya: Perjalanan Menuju Pencarian Obat-obatan yang Ampuh. Maret Narkoba 2022, 20, 271. [CrossRef] [PubMed]
26. Pradhan, B.; Maharana, S.; Bhakta, S.; Jena, M. Keanekaragaman fitoplankton laut di pantai Odisha, India dengan referensi khusus pada catatan baru diatom dan dinoflagellata. Sayuran 2021, 35, 330–344. [Referensi Silang]
27. Behera, C.; Dash, SR; Pradhan, B.; Jena, M.; Adhikary, SP Keanekaragaman Alga danau Ansupa, Odisha, India. Nelumbo 2020, 62, 207–220. [Referensi Silang]
28. Behera, C.; Pradhan, B.; Panda, R.; Nayak, R.; Nayak, S.; Jena, M. Keanekaragaman Alga di Saltpans, Huma (Ganjam), India. J. Bot India. sosial. 2021, 101, 107–120. [Referensi Silang]
29. Dash, S.; Pradhan, B.; Behera, C.; Jena, M. Keanekaragaman Alga Danau Kanjiahata, Nandankanan, Odisha, India. J. Bot India. sosial. 2020, 99, 11–24. [Referensi Silang]
30. Dash, S.; Pradhan, B.; Behera, C.; Nayak, R.; Jena, M. Flora Algal Danau Tampara, Chhatrapur, Odisha, India. J. Bot India. sosial. 2021, 101, 1–15. [Referensi Silang]
31. Maharana, S.; Pradhan, B.; Jena, M.; Misra, MK Keanekaragaman Fitoplankton di Laguna Chilika, Odisha, India. Mengepung. Ekol 2019, 37, 737–746.
32. Mohanty, S.; Pradhan, B.; Patra, S.; Behera, C.; Nayak, R.; Jena, M. Skrining senyawa bioaktif nutrisi pada beberapa strain alga yang diisolasi dari pesisir Odisha. J.Adv. Ilmu Tanaman. 2020, 10, 1–8.
33. Pradhan, B.; Patra, S.; Dash, SR; Satapati, Y.; Nayak, S.; Mandal, AK; Jena, M. Aktivitas in vitro, antidiabetik, anti-inflamasi, dan antibakteri kompres Enteromorpha alga laut yang dikumpulkan dari laguna Chilika, Odisha, India. Sayuran 2022, 35, 614–621. [Referensi Silang]
34. Pradhan, B.; Nayak, R.; Patra, S.; Bhuyan, PP; Behera, PK; Mandal, AK; Behera, C.; Ki, J.-S.; Adhikary, SP; Mubarak Ali, D.; dkk. Tinjauan mutakhir tentang fucoidan sebagai agen antivirus untuk memerangi infeksi virus. Karbohidrat. Polim. 2022, 2022, 119551. [CrossRef] [PubMed]
35. Pradhan, B.; Nayak, R.; Patra, S.; Bhuyan, PP; Dash, SR; Ki, J.-S.; Adhikary, SP; Ragusa, A.; Jena, M. Cyanobacteria dan Metabolit Bioaktif Berasal Alga sebagai Agen Antiviral: Bukti, Cara Kerja, dan Ruang Lingkup untuk Perluasan Lebih Lanjut; Tinjauan Komprehensif Sehubungan dengan Wabah SARS-CoV-2. Antioksidan 2022, 11, 354. [CrossRef] [PubMed]
36. Pradhan, B.; Patra, S.; Dash, SR; Nayak, R.; Behera, C.; Jena, M. Evaluasi aktivitas anti-bakteri ekstrak metanol Chlorella vulgaris Beyerinck [Beijerinck] dengan referensi khusus untuk modulasi antioksidan. Masa Depan J. Farmasi. Sains. 2021, 7, 17. [Referensi Silang]
37. Pradhan, B.; Patra, S.; Behera, C.; Nayak, R.; Jit, BP; Ragusa, A. Investigasi Awal Aktivitas Antioksidan, Anti-Diabetes, dan Anti-Inflamasi Ekstrak Enteromorpha intestina lis. Molekul 2021, 26, 1171. [CrossRef]
38. Pradhan, B.; Patra, S.; Behera, C.; Nayak, R.; Patil, S.; Bhutia, SK; Jena, M. Enteromorpha kompres ekstrak menginduksi aktivitas antikanker melalui apoptosis dan autophagy pada kanker mulut. mol. biologi. Rep.2020, 47, 9567–9578. [Referensi Silang]
39. Cumashi, A.; Ushakova, NA; Preobrazhenskaya, SAYA; D'Incecco, A.; Piccoli, A.; Totani, L.; Tinari, N.; Morozevich, GE; Berman, AE; Bilan, MI Sebuah studi perbandingan aktivitas anti-inflamasi, antikoagulan, antiangiogenik, dan antiadhesif dari sembilan fukoidan berbeda dari rumput laut coklat. Glikobiologi 2007, 17, 541–552. [Referensi Silang]
40. Taman, HY; Han, MH; Taman, C.; Jin, C.-Y.; Kim, G.-Y.; Choi, I.-W.; Kim, ND; Nam, T.-J.; Kwon, TK; Choi, YH Efek anti-inflamasi fucoidan melalui penghambatan aktivasi NF-κB, MAPK dan Akt dalam sel mikroglia BV2 yang diinduksi lipopolisakarida. Kimia Makanan. beracun. 2011, 49, 1745–1752. [Referensi Silang]