BAGIAN2 A Cistanches Herba Fraction/𝛽-Sitosterol Menyebabkan Induksi Redoks-Sensitif Pemisahan Mitokondria Dan Aktivasi Adenosine Monophosphate-Dependent Protein Kinase/Peroxisome Proliferator-Activated Receptor Coactivator-1 di C2C12 Myotubes: Mekanisme Pembobotan yang Mungkin Mendasari Efek Pengurangan
Mar 05, 2022
Untuk informasi lebih lanjut silahkan hubungi:{0}}
4. Diskusi
HCF1, fraksi semi murni dariCistanchesjamu, terbukti menghasilkan penurunan berat badan pada obesitas yang diinduksi HFD


tikus. Penurunan berat badan dikaitkan dengan induksi uncoupling mitokondria dan perubahan aktivitas enzim metabolisme energi pada otot rangka tikus [4]. HCF1 dan komponen aktifnya, BSS, telah terbukti menurunkan efisiensi kopling mitokondria sekunder untuk produksi spesies oksigen reaktif mitokondria (ROS) di kardiomiosit H9c2 dan jantung tikus [17]. Dalam penelitian ini, untuk menjelaskan mekanisme biokimia yang mendasari HCF1-menginduksi pelepasan mitokondria pada otot rangka tikus, efek HCF1 dan BSS pada MMP di myotube C2C12 diselidiki. MMP dihasilkan di IMM sebagai konsekuensi dari pemompaan proton oleh rantai transpor elektron mitokondria. Perubahan MMP mencerminkan interaksi transpor elektron mitokondria dan disipasi gradien proton oleh berbagai proses, seperti ATP yang dimediasi ATP sintase.Benteng

Cistanche deserticola memiliki banyak efek, klik di sini untuk tahu lebih banyak
generasi, kebocoran proton melalui IMM, atau uncoupling mitokondria yang dimediasi UCP [18, 19]. Inkubasi HCF1/BSS menyebabkan peningkatan sementara pada MMP pada myotube C2C12. Kemampuan rotenone, inhibitor kompleks pernapasan mitokondria I, untuk menekan peningkatan MMP yang diinduksi HCF1/BSS menunjukkan bahwa proses ini kemungkinan dimediasi oleh peningkatan transpor elektron mitokondria. Hal ini konsisten dengan temuan kami sebelumnya bahwa HCF1/BSS meningkatkan respirasi keadaan mitokondria 3 pada kardiomiosit H9c2 dan jantung tikus [17]. Selain itu, Shi et al. (2013) [20] melaporkan bahwa penggabungan BSS ke dalam membran mitokondria khusus fluidizes IMM, dengan peningkatan konsekuen di mitokondria
potensial membran dan kandungan ATP mitokondria. Temuan kami bahwa inkubasi bersama dengan kolesterol, danBentengpenambah kekakuan membran [21], menghapuskan peningkatan MMP yang diinduksi HCF1/BSS menunjukkan keterlibatan peningkatan fluiditas membran mitokondria dalam peningkatan MMP yang diinduksi HCF1/BSS. Kemampuan rotenone dan GDP untuk membatalkan penurunan MMP yang diinduksi HCF1/BSS yang dapat diamati pada periode inkubasi HCF1/BSS selanjutnya menunjukkan induksiBentengsebuah UCP3-dimediasi mitokondria uncoupling sekunder untuk stimulasi dalam transpor elektron mitokondria. DMTU, suatu antioksidan, mencegah pelepasan mitokondria yang diinduksi HCF1/BSS, menunjukkan aktivasi UCP3 yang sensitif terhadap redoks dalam myotube C2C12, yang kemungkinan dimediasi oleh glutaredoxin 2 (GRx2) yang diinduksi S-deglutathionylation dari UCP3. GRx2 adalah matriks oksidoreduktase, yang memodulasi aktivitas UCPs melalui reversibel S-glutathionylation dalam menanggapi perubahan lingkungan redoks seluler [18, 22, 23].

Bentengmemiliki efek mengencangkanginjal, meningkatkanfungsi seksual,danpenurunan berat badan
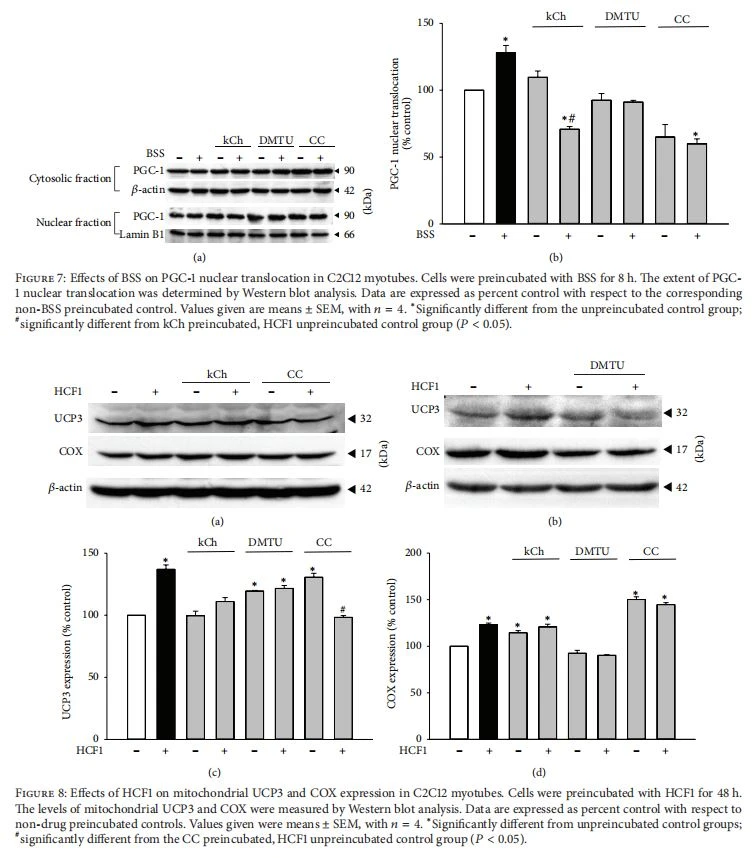
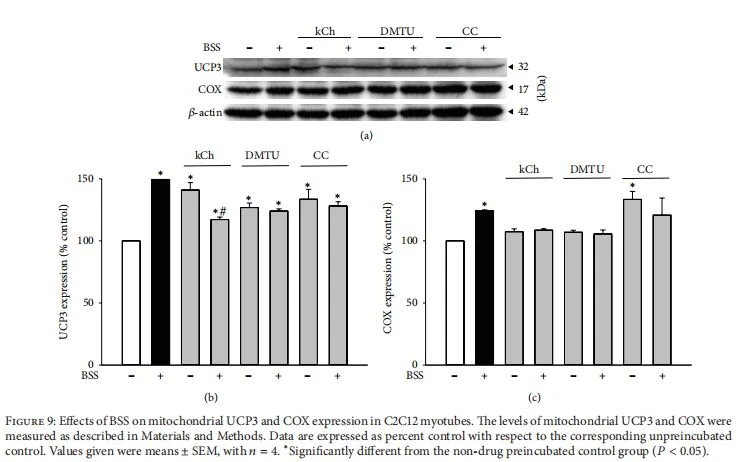
Secara keseluruhan, temuan kami menunjukkan bahwa HCF1 / BSS dapat memfluidisasi IMM, menghasilkan stimulasi transpor elektron mitokondria, dengan peningkatan yang dihasilkan dalam produksi ROS mitokondria. ROS mitokondria yang meningkat, pada gilirannya, akan memicu aktivasi redoks-sensitif dari pelepasan mitokondria dalam myotube C2C12. Mengingat HCF1-menginduksi perubahan aktivitas enzim metabolisme energi di otot rangka tikus yang diberi makan HFD, efek HCF1/BSS pada jalur pensinyalan AMPK/PGC-1, yang berpartisipasi aktif dalam kontrol homeostasis energi seluler [7, 8], diperiksa. Temuan bahwa HCF1/BSS menginduksi aktivasi AMPK yang peka terhadap DMTU menunjukkan kemampuan HCF1/BSS untuk memicu aktivasi AMPK yang peka terhadap redoks pada myotube C2C12. Baru-baru ini, AMPK telah dilaporkan diaktifkan oleh ROS serta spesies nitrogen reaktif (RNS), dengan peningkatan sel yang dihasilkanBentengkelangsungan hidup dalam kondisi stres oksidatif. Paparan AMPK terhadap stres oksidatif menyebabkan oksidasi residu sistein dari subunit dan , dengan penataan ulang alosterik yang dihasilkan dari kompleks heterotrimerik dan dengan demikian aktivasi aktivitas kinase [24, 25]. Selain itu, S-glutathionylation AMPK, sebagai dikatalisis oleh glutathione transferase (GST) dan GRx, setelah paparan H2O2 ditemukan untuk merangsang aktivitas kinase [26]. Secara keseluruhan, temuan kami mendukung gagasan bahwa HCF1/BSS dapat mengaktifkan AMPK melalui produksi ROS mitokondria. Aktivasi AMPK yang diinduksi HCF1/BSS juga ditemukan terkait dengan peningkatan translokasi nuklir PGC-1. Dalam hal ini, AMPK dapat mengaktifkan PGC-1 pascatranslasi melalui fosforilasi Thr177/Ser538 dari PGC-1 dan dengan demikian memfasilitasi deasetilasi PGC-1 oleh sirtuin 1 (SIRT1), yang merupakan langkah penting untuk aktivasi PGC-1𝛼 [7]. PGC yang diaktifkan-1𝛼, pada gilirannya, berinteraksi dengan reseptor nuklir seperti peroksisom proliferator-activated receptor (PPAR𝛾), faktor pernafasan nuklir (NRFs), dan faktor penambah miosit 2C (MEF2C), dengan translokasi nuklir yang dihasilkan dan koaktivasi ekspresi gen [27-29]. Penghambatan translokasi nuklir PGC-1 yang diinduksi HCF1/BSS oleh DMTU dan penghambat AMPK, CC, menunjukkan bahwa aktivasi PGC- 1 adalah peristiwa sekunder dari aktivasi AMPK yang diinduksi ROS. Dengan mengaktifkan beberapa faktor transkripsi, AMPK/PGC-1 memberikan spektrum aksi yang luas dalam mengendalikan ekspresi gen Pengobatan Alternatif dan Pengobatan Alternatif 11 Berbasis Bukti yang terkait dengan pergantian tipe serat otot, penyerapan dan pemanfaatan molekul bahan bakar, dan metabolisme mitokondria, semuanya menyediakan jaringan yang diatur untuk mengatur metabolisme energi seluler dan dengan demikian meningkatkan kebugaran metabolisme secara keseluruhan [30-32]. Dalam hubungan ini, temuan kami menunjukkan kemungkinan keterlibatan AMPK/PGC- 1 dalam efek menguntungkan yang dihasilkan oleh HCF1 pada metabolisme glukosa dan asam lemak pada tikus yang diberi makan ND dan tikus yang diberi HFD [4]. Inkubasi HCF1/BSS juga meningkatkan ekspresi UCP3 dan merangsang biogenesis mitokondria melalui aktivasi sensitif redoks AMPK/PGC-1 di C2C12 myotubes. Peningkatan ekspresi UCP3 sebagai respons terhadap HCF1/BSS, yang juga diamati pada otot rangka tikus tikus yang diberi makan ND dan HFD, menunjukkan keterlibatan jalur AMPK/PGC-1 dalam upregulasi ekspresi UCP3 di otot rangka tikus. Lebih lanjut, peningkatan biogenesis mitokondria yang diinduksi oleh HCF1/BSS menunjukkan peningkatan kapasitas oksidatif mitokondria dengan peningkatan yang dihasilkan dalam kebugaran metabolik. Mengingat bahwa aktivasi redoks-sensitif dari jalur pensinyalan AMPK/PGC-1 sangat penting dalam bertahan melawan cedera oksidan di berbagai jaringan [24, 33, 34], HCF1/BSS dapat menawarkan pendekatan alternatif untuk mengurangi obesitas terkait stres oksidatif. Eksplorasi intervensi farmakologis yang ditujukan untuk memperbaiki obesitas telah menjadi bidang penelitian intensif. Saat ini, sebagian besar agen pelangsing terutama pengganti makanan, penekan nafsu makan, dan senyawa fungsional yang merangsang sistem saraf simpatik (SNS) [35]. Temuan bahwa HCF1 menghasilkan pengurangan berat badan pada obesitas yang diinduksi HFD melalui induksi pelepasan mitokondria yang peka terhadap redoks menawarkan pendekatan alternatif untuk pengendalian berat badan. Uncoupling mitokondria telah lama terbukti efektif dalam mendorong penurunan berat badan pada hewan dan manusia [36]. Temuan dari penelitian kami sebelumnya dan sekarang dengan tegas membuktikan kemampuan HCF1 untuk menghasilkan pengurangan berat badan melalui induksi pelepasan mitokondria.

Cistanche memiliki efek penurunan berat badan
5. Kesimpulan
Fraksi Cistanches Herba (HCF1)/BSS menyebabkan induksi peka redoks dari pelepasan mitokondria dan aktivasi AMPK/PGC-1 di myotube C2C12. Perawatan HCF1 dapat meningkatkan konsumsi energi tubuh, terutama pada otot rangka, dengan penurunan berat badan dan adipositas yang dihasilkan pada tikus yang diberi HFD.
Konflik kepentingan
Para penulis menyatakan bahwa tidak ada konflik kepentingan mengenai publikasi makalah ini.

Bentengmemiliki efek mengencangkanginjaldanpenurunan berat badan
Referensi
[1] J. Arnl ov, E. Ingelsson, J. Sundstr om, dan L. Lind, "Dampak indeks massa tubuh dan sindrom metabolik pada risiko penyakit kardiovaskular dan kematian pada pria paruh baya," Sirkulasi, vol. 121, tidak. 2, pp. 230-236, 2010. [2] S. Mottillo, KB Filion, J. Genest, dkk., "Sindrom metabolik dan risiko kardiovaskular: tinjauan sistematis dan meta-analisis," Journal of American College Kardiologi, vol. 56, tidak. 14, pp. 1113-1132, 2010. [3] SAA van den Berg, W. van Marken Lichtenbelt, K. Willems van Dijk, dan P. Schrauwen, "Pelepasan mitokondria otot rangka, termogenesis adaptif, dan pengeluaran energi," Saat ini Opini dalam Nutrisi Klinis dan Perawatan Metabolik, vol. 14, tidak. 3, hlm. 243–249, 2011. [4] HS Wong, J. Chen, PK Leong, HY Leung, WM Chan, dan KM Ko, "Cistanches Herba mengurangi penambahan berat badan pada tikus obesitas yang diinduksi diet tinggi lemak mungkin melalui pelepasan mitokondria," Journal of Functional Foods, vol. 10, pp. 292–304, 2014. [5] D. Ricquier dan F. Bouillaud, "Protein pelepasan mitokondria: dari mitokondria hingga regulasi keseimbangan energi," Journal of Physiology, vol. 529, tidak. 1, pp. 3-10, 2000. [6] AS Divakaruni dan MD Brand, "Regulasi dan fisiologi kebocoran proton mitokondria," Physiology, vol. 26, tidak. 3, pp. 192-205, 2011. [7] A. Gruzman, G. Babai, dan S. Sasson, "Adenosine monophosphate-activated protein kinase (AMPK) sebagai target baru untuk obat antidiabetes: ulasan tentang metabolisme, farmakologis dan pertimbangan kimia," Review of Diabetic Studies, vol. 6, tidak. 1, pp. 13-36, 2009. [8] GR Steinberg dan BE Kemp, "AMPK dalam kesehatan dan penyakit," Ulasan Fisiologis, vol. 89, tidak. 3, hlm. 1025–1078, 2009. [9] C. Canto dan J. Auwerx, "PGC-1 , SIRT1 dan AMPK, jaringan penginderaan energi yang mengontrol pengeluaran energi," Opini Saat Ini dalam Lipidologi, jilid 20, tidak. 2, pp. 98–105, 2009. [10] RC Scarpulla, "Kontrol metabolik biogenesis mitokondria melalui jaringan regulasi keluarga PGC-1," Biochimica et Biophysica Acta—Molecular Cell Research, vol. 1813, tidak. 7, hlm. 1269–1278, 2011. [11] HY Leung dan KM Ko, "jamucistancheekstrak meningkatkan generasi ATP mitokondria di hati tikus dan sel H9c2," Pharmaceutical Biology, vol. 46, no. 6, pp. 418-424, 2008. [12] HS Wong dan KM Ko, "Herba Cistanches merangsang siklus redoks glutathione seluler dengan spesies oksigen reaktif yang dihasilkan dari respirasi mitokondria dalam kardiomiosit H9c2," Pharmaceutical Biology, vol. 51, no. 1, pp. 64-73, 2013. [13] D. Yaffe dan O. Saxel, "Serial passing dan diferensiasi sel miogenik diisolasi dari otot tikus distrofik," Nature, vol. 270, no. 5639, pp. 725-727, 1977. [14] A. Cossarizza, M. Baccarani-Contri, G. Kalashnikova, dan C. Franceschi, "A new metode untuk analisis sitofluorimetri potensi membran mitokondria menggunakan J-agregat pembentuk kation lipofilik 5,5',6,6'-tetrachloro-1,1',3,3'- tetraethylbenzimidazolcarbocyanine iodide (JC{{34} })," Komunikasi Riset Biokimia dan Biofisika, vol. 197, no. 1, hlm. 40–45, 1993. [15] PK Leong, HY Leung, HS Wong, dkk., "Pengobatan jangka panjang dengan n formula herbal MCC mengurangi kenaikan berat badan pada tikus obesitas yang diinduksi diet tinggi lemak," Pengobatan Cina, vol. 4, tidak. 3, pp. 63-71, 2013. [16] N. Jiang, G. Zhang, H. Bo et al., "Upregulasi protein uncoupling-3 di otot rangka selama latihan: fungsi antioksidan potensial," Biologi dan Kedokteran Radikal Bebas, vol. 46, tidak. 2, pp. 138–145, 2009. [17] HS Wong, N. Chen, PK Leong, dan KM Ko, "𝛽-sitosterol meningkatkan siklus redoks glutathione seluler oleh spesies oksigen reaktif yang dihasilkan dari respirasi mitokondria: perlindungan terhadap cedera oksidan pada Sel H9c2 dan jantung tikus," Phytotherapy Research, vol. 28, tidak. 7, pp. 999–1006, 2014.12 Pengobatan Pelengkap dan Alternatif Berbasis Bukti [18] KS Echtay, D. Roussel, J. St-Pierre, et al., "Superoksida mengaktifkan protein mitokondria uncoupling," Nature, vol. 415, tidak. 6867, pp. 96-99, 2002. [19] I. Lee, E. Bender, dan B. Kadenbach, "Kontrol potensi membran mitokondria dan pembentukan ROS dengan fosforilasi reversibel sitokrom c oksidase," Biokimia Molekuler dan Seluler, vol . 234-235, tidak. 1, pp. 63-70, 2002. [20] C. Shi, F. Wu, dan J. Xu, "Penggabungan -sitosterol ke dalam membran mitokondria meningkatkan fungsi mitokondria dengan mempromosikan fluiditas membran mitokondria bagian dalam," Journal of Bioenergetics and Biomembran, vol. 45, tidak. 3, pp. 301–305, 2013. [21] I. Tabas, "Konsekuensi akumulasi kolesterol seluler: konsep dasar dan implikasi fisiologis," Journal of Clinical Investigation, vol. 110, tidak. 7, pp. 905-911, 2002. [22] DFS Rolfe dan GC Brown, "Pemanfaatan energi seluler dan asal molekuler tingkat metabolisme standar pada mamalia," Tinjauan Fisiologis, vol. 77, tidak. 3, hlm. 731–758, 1997. [23] RJ Mailloux, JY Xuan, B. Beauchamp, L. Jui, M. Lou, dan M.-E. Harper, "Glutaredoxin-2 diperlukan untuk mengontrol kebocoran proton melalui uncoupling protein-3," The Journal of Biological Chemistry, vol. 288, tidak. 12, pp. 8365–8379, 2013. [24] S. Cardaci, G. Filomena, dan MR Cirilo, "Implikasi redoks dari transduksi sinyal yang dimediasi AMPK di luar petunjuk energik," Journal of Cell Science, vol. 125, tidak. 9, pp. 2115–2125, 2012. [25] SB Wu, YT Wu, TP Wu, dan YH Wei, "Peran respons adaptif yang dimediasi AMPK dalam sel manusia dengan disfungsi mitokondria terhadap stres oksidatif," Biochimica et Biophysica Acta, jilid 1840, tidak. 4, pp. 1331-1344, 2014. [26] A. Salminen dan K. Kaarniranta, "AMP-activated protein kinase (AMPK) mengontrol proses penuaan melalui jaringan sinyal terintegrasi," Aging Research Review, vol. 11, tidak. 2, pp. 230–241, 2012. [27] I. Kim, S. Rodriguez-Enriquez, dan JJ Lemasters, "Degradasi selektif mitokondria oleh mitofag," Arsip Biokimia dan Biofisika, vol. 462, tidak. 2, hlm. 245–253, 2007. [28] J. Kim, M. Kundu, B. Viollet, dan K.-L. Guan, "AMPK dan mTOR mengatur autophagy melalui fosforilasi langsung Ulk1," Nature Cell Biology, vol. 13, tidak. 2, pp. 132–141, 2011. [29] MM Mihaylova dan RJ Shaw, "Jalur pensinyalan AMPK mengoordinasikan pertumbuhan sel, autofagi, dan metabolisme," Nature Cell Biology, vol. 13, tidak. 9, hlm. 1016–1023, 2011. [30] KSC Rockl, MF Hirshman, J. Brandauer, N. Fujii, LA Witters, dan LJ Goodyear, "Adaptasi otot rangka untuk latihan olahraga: AMP-activated protein kinase menengahi pergeseran jenis serat otot," Diabetes, vol. 56, tidak. 8, pp. 2062-2069, 2007. [31] HM O'Neill, SJ Maarbjerg, JD Crane et al., "AMP-activated protein kinase (AMPK) 1𝛽2 muscle null mice mengungkapkan peran penting AMPK dalam mempertahankan konten mitokondria dan penyerapan glukosa selama latihan," Proceedings of the National Academy of Sciences of the United States of America, vol. 108, tidak. 38, pp. 16092–16097, 2011. [32] Z. Yan, M. Okutsu, YN Akhtar, dan VA Lira, "Peraturan transformasi tipe serat yang diinduksi oleh olahraga, biogenesis mitokondria, dan angiogenesis pada otot rangka," Journal of Fisiologi Terapan, vol. 110, tidak. 1, pp. 264-274, 2011. [33] S. Ditch dan TT Paull, "The ATM protein kinase dan pensinyalan redoks seluler: di luar respons kerusakan DNA," Trends in Biochemical Sciences, vol. 37, tidak. 1, pp. 15-22, 2012. [34] PD Ray, BW Huang, dan Y. Tsuji, "Homeostasis spesies oksigen reaktif (ROS) dan regulasi redoks dalam pensinyalan seluler," Cellular Signalling, vol. 24, tidak. 5, hlm. 981–990, 2012. [35] S. Cho, Pengendalian Berat Badan dan Bahan Pelangsing dalam Teknologi Pangan, Wiley-Blackwell, Ames, Iowa, AS, 2010. [36] SS Korshunov, VP Skulachev, dan AA Starkov , "Potensi proton tinggi menggerakkan mekanisme produksi spesies oksigen reaktif di mitokondria," FEBS Letters, vol. 416, tidak. 1, hlm. 15–18, 1997.