
BAGIAN 1 Mengungkap Dampak Lingkungan Terhadap Cistanche Salsa: Dari Regionalisasi Ekologi Global Hingga Karakteristik Komunitas Mikroba Tanah
Mar 03, 2022
ABSTRAK:Untuk memahami hubungan regulasi antara lingkungan danCistanche salsa, di sini kami mengintegrasikan metode dimensi makro dan mikro. Dari perspektif makro, model MaxEnt menunjukkan bahwa negara-negara di sepanjang Inisiatif Sabuk dan Jalan, seperti Cina, Mesir, dan Libya, sangat cocok untuk pertumbuhanC.salsadari zaman kuno (Maksimum Glasial Terakhir dan pertengahan Holosen) hingga masa depan (2050 dan 2070). Uji Jackknife mengungkapkan bahwa curah hujan merupakan faktor ekologi penting yang mempengaruhi distribusi C. salsa. Dari perspektif makro, data sekuensing amplikon 16S rRNA menunjukkan bahwa komunitas mikroba tanah dari tiga ekotipe (gurun-stepa, padang rumput, dan kerikil-gurun) berbeda secara signifikan (p <0,001). analisis="" mikrobioma="" inti="" menunjukkan="" bahwa="" genera="" bakteri="" arthrobacter,="" sphingomonas,="" dan="" bacillus="" diperkaya="" taksa="" inti="">C.salsa. LEfSe dan hutan acak digunakan untuk menggali Gillisia (gurun-stepa), Flavisolibacter (padang rumput), dan Variibacter(gravel−desert) sebagai biomarker yang dapat membedakan komunitas mikroba dari ketiga ekotipe tersebut. Profil prediksi menunjukkan bahwa fungsi metabolisme komunitas mikroba diperkaya dalam jalur metabolisme dan pemrosesan informasi lingkungan. Analisis korelasi mengungkapkan bahwa ketinggian, presipitasi kuartal terpanas (bio18), kisaran harian rata-rata (bio2), dan suhu rata-rata kuartal terpanas (bio10) merupakan faktor ekologi penting yang mempengaruhi komposisi komunitas mikroba tanah. Pekerjaan ini memberikan wawasan baru ke dalam hubungan peraturan antara distribusi yang sesuaiC.salsa, komunitas mikroba tanah, dan penggerak ekologi. Selain itu, ini memperdalam pemahaman tentang interaksi antara tanaman gurun dan faktor ekologis di lingkungan kering.
KATA KUNCI:Cistanche salsa, MaxEnt, pengurutan amplikon 16S rRNA, komunitas mikroba tanah, dampak lingkungan.

Cistanche deserticola memiliki banyak efek, klik di sini untuk tahu lebih banyak
Untuk informasi lebih lanjut silahkan hubungi:{0}}
1. PERKENALAN
Nilai ekonomi tanaman obat telah meningkat pesat dalam beberapa tahun terakhir dengan pengembangan dan pemanfaatan tanaman alami di seluruh dunia. Batang berdaging dariCistanche salsaadalah organ tumbuhan yang dapat dimakan dan berkhasiat obat yang biasa digunakan sebagai tonik ginjal, afrodisiak, pengobatan antipenuaan dan antioksidan, pencahar usus, pengobatan perlindungan hati, dan pengobatan anti-radiasi. Studi fitokimia modern pada C. salsa telah menghasilkan identifikasi dan isolasi sejumlah besar senyawa bioaktif, seperti berbagai glikosida fenilethanoid, iridoid, alditol, dan lignin, yang memiliki nilai medis dan dapat dimakan yang penting.1 Dengan perkembangan pasar yang pesat. untuk obat-obatan dan makanan sehat, permintaan untukC.salsameningkat tajam dan disertai dengan eksploitasi berlebihan dan penjarahan sumber daya alam. Oleh karena itu, pengenalan dan budidaya buatan skala besarC.salsatelah menjadi ukuran penting untuk melindungi sumber daya alam liar dan memperlambat penggurunan ekologis. Namun, penelitian tentang budidaya buatanC.salsatetap terbatas.
Lingkungan memiliki dampak besar pada pertumbuhan dan perkembangan C. salsa.2 Tanaman tumbuh di lingkungan yang berbeda, membentuk ekotipe yang berbeda yang menunjukkan perubahan signifikan bahan aktif dan ekspresi gen.3,4 Pada tingkat makro, penelitian telah menemukan bahwa suhu, cahaya, curah hujan, dan jenis tanah semuanya memiliki efek pada pertumbuhan tanaman dan bahan aktifnya.5,6 Studi tentang interaksi antara lingkungan dan tanaman dan karakterisasi komprehensif dari berbagai ekotipe tanaman bermanfaat untuk pemilihan dan budidaya tinggi varietas berkualitas.7 Dari perspektif makro, tanaman dapat memiliki dampak yang cukup besar pada organisme tanah bahkan jika mereka memiliki sedikit atau tidak ada kontak langsung dengan sistem tanah melalui akarnya.8,9 Namun, penelitian saat ini tentang hubungan antara tanaman dan lingkungan, termasuk faktor iklim dan komunitas mikroba tanah, masih belum jelas.
Model distribusi spesies (SDM) adalah model statistik yang dibuat dengan menggunakan data distribusi spesies yang ada dan variabel lingkungan untuk menyimpulkan kebutuhan ekologis spesies dan memproyeksikan potensi area distribusinya,10,11 mengeksplorasi area pertumbuhan yang sesuai dengan menggabungkan faktor iklim dan tanah, menentukan lingkungan yang sesuai untuk tanaman obat, dan secara ilmiah melindungi dan menumbuhkan tanaman yang terancam punah.12,13 SDM, seperti MaxEnt dan biomod2, telah berhasil menanggapi prediksi tren distribusi yang dikenakan pada tanaman yang terancam punah dan ekologi selama perubahan iklim.14,15

Pengurutan amplikon 16S rRNA sampel tanah rizosfer tanaman telah dilakukan untuk mengeksplorasi keragaman komunitas mikroba, memberikan wawasan baru tentang hubungan antara tanaman dan komunitas mikroba tanah.16,17
Dalam penelitian ini, kami mengeksplorasi hubungan antara lingkungan danC.salsadari dimensi makro dan mikro. Kami melakukan yang berikut ini. (1) Kami menggunakan model MaxEnt untuk memprediksi area pertumbuhan global yang cocok dariC.salsadari zaman kuno ke masa depan (lima periode: Maksimum Glasial Terakhir [LGM], pertengahan Holosen [MH], sekarang, 2050, dan 2070) dan menghitung area yang sesuai dengan tingkat yang berbeda dan tingkat kontribusi dan kisaran variabel bioklimatik yang mempengaruhi distribusi dariC.salsa.(2) Dalam kombinasi dengan kerja lapangan, kami mengumpulkan tiga sampel tanah ekotipe (gurun−stepa, padang rumput, dan kerikil−gurun) dari daerah pertumbuhan terbaik (Tacheng dan Xinjiang) di
C.salsa. Kami melakukan pengurutan amplikon 16S rRNA untuk mengeksplorasi karakteristik komunitas mikroba tanah. Kami juga membandingkan perbedaan mikrobioma tanah di ketiga ekotipe dan menentukan mikrobioma inti dan biomarker yang dapat membedakan di antara ketiga ekotipe. (3) Kami melakukan analisis korelasi dan analisis redundan berdasarkan kelimpahan mikrobioma inti, biomarker, dan variabel bioklimatik untuk mengeksplorasi hubungan regulasi antaraC.salsadan lingkungan.

Bentengmemiliki banyak efek anti-kelelahan
2. BAHAN-BAHAN DAN METODE-METODE
2.1. Pemodelan Ceruk Ekologis.
Dalam penelitian ini, lima sumber digunakan untuk mencari situs-situs saat iniC.salsadi seluruh dunia: (1) GBIF ; (3) Infrastruktur Informasi Spesimen Nasional (4) literatur yang diterbitkan; dan (5) kerja lapangan. Data sampel tanpa garis lintang dan garis bujur didasarkan pada peta online garis lintang dan garis bujur. Metode analisis buffer digunakan untuk mengoreksi dan menyaring titik distribusi yang diperoleh untuk menghilangkan efek simulasi overfitting yang disebabkan oleh korelasi spasial yang besar. Resolusi spasial variabel bioklimatik adalah 2,5 arc-min (sekitar 4,5 km2), dan jarak penyangga ditetapkan 3 km. Hanya satu titik distribusi yang dipertahankan jika jarak antar titik distribusi kurang dari 3 km. Setelah titik duplikat dihilangkan, 76 kejadian, semuanya dari area produksi asli C. salsa, dikumpulkan dan digunakan untuk analisis (Gambar 1a, File Tambahan 1).
Kami menggunakan 19 variabel bioklimatik WorldClim sebagai prediktor lingkungan. Data variabel bioklimatik penelitian ini dikumpulkan dari data pemantauan database WorldClim versi 1.418 selama 1960-1990 dengan resolusi 2,5 arc-min. Variabel bioklimatik kuno (LGM dan MH) dan masa depan (masa depan 2050 dan masa depan 2070) yang tersedia di WorldClim versi 1.4 pada resolusi 2,5 busur-menit digunakan sebagai prediktor model distribusi spesies. Untuk menghindari multikolinearitas, kami menjalankan analisis korelasi pada titik latar belakang dan menghilangkan salah satu variabel di setiap pasangan dengan Pearson

nilai korelasi > 0.819 (Gambar S1). Delapan variabel bioklimatik yang akhirnya dimasukkan dalam model adalah rentang harian rata-rata (bio2), suhu rata-rata kuartal terbasah (bio8), suhu rata-rata kuartal terkering (bio9), suhu rata-rata kuartal terpanas (bio10) , curah hujan tahunan (bio12), curah hujan kuartal terkering (bio17), curah hujan kuartal terpanas (bio18), dan curah hujan kuartal terdingin (bio19).
Kami menggunakan model entropi maksimum paket perangkat lunak sumber terbuka (MaxEnt v.3.4.0),20 yang dapat diunduh untuk membangun model distribusi spesies untukC.salsa. Parameter berikut digunakan dalam pengaturan dasar: benih acak dan persentase uji acak 25 dan 10 ulangan. Dengan menetapkan persentase tes acak menjadi 25 persen, kami secara acak memilih 75 persen dari titik distribusi untuk set pelatihan. Dengan mengatur jumlah ulangan menjadi 10, kami menjalankan model 10 kali dengan pengaturan yang sama dan membuat rata-rata output dari semua proses untuk mendapatkan hasil akhir. Area di bawah kurva operator penerima (AUC) digunakan untuk mengevaluasi kecocokan model, dan model dengan nilai AUC tertinggi dianggap sebagai yang berkinerja terbaik. Prosedur jackknife digunakan untuk menilai pentingnya variabel. Kurva respon digunakan untuk mendapatkan kisaran variabel bioklimatik.
ArcGIS digunakan untuk menganalisis variabel-variabel bioklimatik yang mempengaruhi distribusi C. salsa dan untuk mengklasifikasikan dan menghitung daerah yang cocok untuk produksi.
2.2. Pengumpulan dan Deskripsi Sampel Tanah. C.salsa
terdistribusi secara alami di tiga ekotipe kerikil−gurun, padang rumput, dan padang pasir−stepa. Pada bulan April 2017, kami mengumpulkan sampel batang dan tanah berdaging yang mewakili ekotipe utama C. salsa di Tacheng, Xinjiang, Cina (Gambar 1b, Tabel 1). Sampel gurun kerikil dikumpulkan dari Hejiaoke, Kabupaten Toli (HJ1, HJ2, dan HJ3). Sampel padang rumput dikumpulkan dari Kabupaten Yumin (YM1, YM2, YM3, dan YM4). Sampel stepa gurun dikumpulkan dari Jiang Alhan (JA1, JA2, JA3, JA4, JA5, dan JA6). Sampel tanah yang kami kumpulkan semuanya berasal dari tanah di permukaan C. salsa dan situs parasit inangnya. Spesimen voucher dengan
nomor voucher dari 20170510079-DT hingga 20170510091-DT disimpan di herbarium Institut Pengembangan Tanaman Obat di Akademi Ilmu Kedokteran China di Beijing, China. Setelah dibersihkan, jaringan batang sukulen dipotong kecil-kecil, segera dibekukan dalam nitrogen cair, dan kemudian disimpan pada suhu 80 derajat hingga diproses lebih lanjut. Inti tanah diambil pada kedalaman 20 cm menggunakan
bor silinder stainless steel dengan diameter 5 cm dan kemudian disimpan pada 20 derajat dalam lemari es portabel. Setelah diangkut ke laboratorium, sampel tanah dilewatkan melalui saringan 2 mm untuk menghilangkan jaringan tanaman, akar, batu, dan kotoran lainnya dan kemudian disimpan pada suhu 20 di lemari es sebelum percobaan lebih lanjut.
2.3. Ekstraksi DNA dan Sekuensing 16S rRNA.
DNA tanah diekstraksi menggunakan Kit Isolasi DNA PowerSoil (MoBio Laboratories, Carlsbad, CA) sesuai dengan manual. Kemurnian dan kualitas DNA genom diperiksa pada 0,8 persen gel agarosa. Daerah hipervariabel V3-4 dari gen 16S rRNA bakteri diamplifikasi dengan primer 338F (ACTCCTACGGGGAGGCAGCAG) dan 806R (GGACTACHVGGGTWTCTAAT).21 Untuk setiap sampel tanah, urutan kode batang 10- digit ditambahkan ke 5 ujung primer maju dan mundur (Allwegene Co., Beijing). PCR dilakukan pada Mastercycler Gradient (Eppendorf, Jerman) menggunakan 25 L volume reaksi yang mengandung 12,5 L KAPA 2G Robust HotStart ReadyMix, 1 L forwarding primer (5 M), 1 L reverse primer (5 M), 5 L primer DNA (jumlah template total adalah 30 ng), dan 5,5 L H2O. Parameter bersepeda adalah sebagai berikut: 95 derajat selama 5 menit, diikuti oleh 28 siklus 95 derajat selama 45 detik, 55 derajat selama 50 detik, dan 72 derajat selama 45 detik, dengan ekstensi akhir pada 72 derajat selama 10 menit. Tiga produk PCR per sampel dikumpulkan untuk mengurangi bias PCR tingkat reaksi. Produk PCR dimurnikan menggunakan Kit Ekstraksi Gel QIAquick (QIAGEN, Jerman) dan kemudian dikuantifikasi menggunakan PCR waktu nyata. Pengurutan mendalam dilakukan pada platform MiSeq oleh Allwegene Co. (Beijing). Setelah dijalankan, dilakukan analisis citra, pemanggilan basis, dan estimasi error menggunakan Illumina Analysis Pipeline Versi 2.6.
2.4. Analisis Data Sekuensing Amplikon 16S rRNA.
Semua data pengurutan dikirimkan ke NCBI Short Archive (SRA) di bawah pengiriman SRA SUB7456002. Data mentah pertama kali disaring, dan sekuens dihilangkan berdasarkan pertimbangan berikut: sekuens yang lebih pendek dari 200 bp dengan skor kualitas rendah (Kurang dari atau sama dengan 20) dan mengandung basa ambigu atau tidak cocok dengan sekuens primer dan tag barcode. Pembacaan yang memenuhi syarat dipisahkan menggunakan urutan kode batang khusus sampel dan dipangkas dengan Pipa Analisis Illumina Versi 2.6. Kemudian kumpulan data dianalisis menggunakan QIIME. Urutan dikelompokkan ke dalam unit taksonomi operasional (OTUs) pada tingkat kesamaan 97 persen 22 untuk menghasilkan kurva penghalusan dan menghitung indeks kekayaan dan keragaman. Alat Pengklasifikasi Proyek Basis Data Ribosomal digunakan untuk mengklasifikasikan semua urutan ke dalam kelompok taksonomi yang berbeda, di mana ambang batas kepercayaan diatur ke 0.7.23 Analisis pengelompokan dilakukan berdasarkan informasi OTU dari setiap sampel dengan menggunakan R 3.6.1 untuk memeriksa kesamaan antara sampel yang berbeda.24 Matriks jarak UniFrac antara komunitas mikroba dari setiap sampel dihitung menggunakan koefisien Tayc dan direpresentasikan sebagai metode grup pasangan tidak tertimbang dengan pohon pengelompokan rata-rata aritmatika, yang menggambarkan ketidakmiripan (1- kesamaan) di antara beberapa sampel.25 Sebuah file pohon format Newick juga dihasilkan melalui analisis ini. Keragaman alfa diterapkan untuk menganalisis kompleksitas keanekaragaman spesies untuk sampel menggunakan empat indeks, yaitu, Chao1, spesies yang diamati, dan Shannon dan Fisher.


indeks keanekaragaman. Indeks ini dihitung menggunakan perangkat lunak QIIME (Boulder, CO, USA) dengan Python (v.1.8.0) (La Jolla, CA, USA).26 Analisis keragaman beta digunakan untuk mengevaluasi perbedaan sampel dalam hal kompleksitas spesies. Keragaman beta dihitung menggunakan analisis koordinat utama (PCoA) dan analisis klaster di QIIME.27 Analisis varians molekuler (AMOVA) dilakukan menggunakan induk.28 Uji Kruskal−Wallis digunakan untuk menghitung perbedaan OTU antar kelompok (nilai-p<0.05), and="" heat="" maps="" were="" drawn="" using="" pheatmap="" (r="" package).="" core="" microbiome="" analysis="" was="" adopted="" from="" the="" core="" function="" in="" the="" r="" package="" microbiome="" (sample="" prevalence="20%," relative="" abundance="0.01%)" by="" microbiomeanalyst29="" (https://www.="">
Metode analisis diskriminan linier (LDA) dan hutan acak (RF) di situs Web MicrobiomeAnalyst digunakan untuk menentukan biomarker mikrobioma. Uji sum-rank Kruskal-Wallis faktorial nonparametrik pertama kali dilakukan untuk mengidentifikasi fitur dengan kelimpahan diferensial yang signifikan dengan mempertimbangkan faktor eksperimental atau kelas yang diminati. Selanjutnya, LDA (ambang batas diatur ke 2) dilakukan untuk menghitung ukuran efek dari setiap fitur yang berlimpah secara berbeda. Fitur dianggap signifikan berdasarkan nilai p yang disesuaikan. Potongan nilai p yang disesuaikan secara default adalah 0.05. Analisis RF dilakukan dengan menggunakan paket RandomForest5. Metode ini menggunakan ansambel pohon klasifikasi, yang masing-masing ditumbuhkan melalui pemilihan fitur acak dari sampel bootstrap di setiap cabang.
Tax4Fun (paket R, http://tax4fun.gobics.de/) digunakan untuk memprediksi profil fungsional mikroba mikrobioma dalam sampel tanah. Tabel OTU Biom dari mikrobioma tanah digunakan sebagai file input untuk imputasi metagenom sampel tanah C. salsa. Kemudian prediksi kelimpahan kelas gen dianalisis pada kelompok KEGG Orthology (KO) level 3. Hasil dari Tax4Fun dianalisis dalam Doby (paket R).
2.5.Analisis Korelasi Komunitas Mikroba Kunci dan Faktor Bioklimatik.
Kami menggunakan ArcGIS untuk mengekstrak faktor bioklimatik kunci secara numerik dari 13 titik pengambilan sampel tanah. Analisis redundansi genera kunci komunitas mikroba (lima biomarker, lima mikrobioma inti) dan faktor bioklimatik dilakukan dengan menggunakan
Perangkat lunak canoco5. Konversi data log2 dilakukan secara seragam sebelum analisis. Koefisien korelasi Spearman dihitung untuk kelimpahan lima biomarker, lima mikrobioma inti, dan integrasi data faktor bioklimatik dengan menerapkan SPSS. Hasil analisis korelasi digambar dengan pheatmap (paket R).

Bentengdapat menahan penuaan
3. HASIL
Prediksi Pergeseran Distribusi Global C. salsa di Berbagai Periode. ROC yang dihitung menunjukkan
bahwa nilai AUC adalah {{0}}.977 (Gambar S2), menunjukkan bahwa model sesuai dengan data.30 Hasil simulasi kesesuaian habitat untuk lima periode (LGM, MH, sekarang, 2050, dan 2070 ) diilustrasikan pada Gambar 2 dan Tabel 2. Kesesuaian budidaya salsa dibagi menjadi lima kategori berdasarkan ambang batas statistik: tidak sesuai (kelas 5: 0-20 persen), marginal (kelas 4: 20-50 persen), cukup (kelas 3: 50−75 persen ), baik (kelas 2: 75−
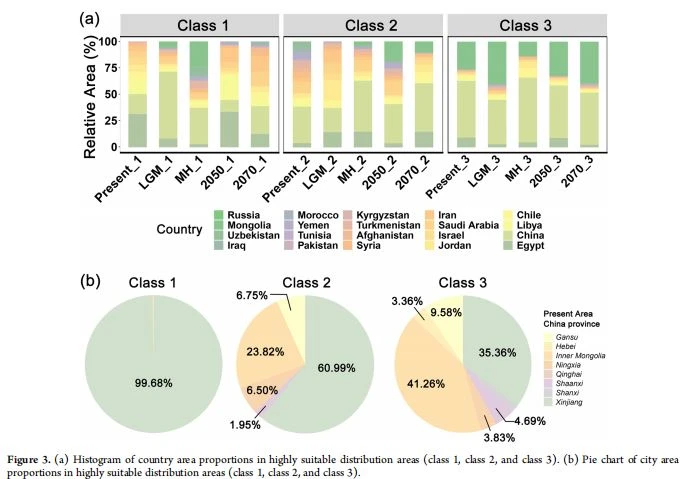
90 persen), dan sangat baik (kelas 1: 90−100 persen). Artikel ini hanya membahas daerah sebaran yang sesuai untuk kelas 1, kelas 2, dan kelas 3. Potensi penyebaran C. salsa saat ini menunjukkan bahwa spesies ini tersebar luas di tiga zona iklim: iklim gurun sedang, iklim Mediterania subtropis, dan gurun tropis. daerah iklim. Semua benua, kecuali Antartika, memiliki wilayah yang cocok untuk C. salsa. Wilayah ini terutama didistribusikan di Asia tengah dan barat dan Afrika utara dan tersebar di Amerika Utara bagian tengah dan barat, Amerika Selatan bagian tengah, dan Oseania barat. Daerah yang sesuai sangat baik (kelas 1) paling banyak tersebar di Mesir (76 750 km2), sedangkan daerah yang sesuai dengan baik (kelas 2) dan sedang (kelas 3) paling banyak tersebar di Cina (kelas 2: {{ 13}} km2 dan kelas 3: 1 024 600 km2). Daerah yang cocok secara ekologis di Asia terutama terbatas pada Cina (kelas 1: 45 775 km2), Yordania (kelas 1: 16 075 km2), Israel (kelas 1: 14 975 km2), Saudi Arabia (kelas 1: 14 925 km2), dan Iran (kelas 1: 12 600 km2). Daerah yang cocok untuk C. salsa di Afrika terutama tersebar di Mesir, Libya (kelas 1: 34 400 km2), dan Tunisia (kelas 1: 275 km2). Daerah yang cocok untuk C. salsa di Amerika Selatan sebagian besar tersebar di Chili (kelas 1: 16 550 km2).
Dari perspektif spasial (Gambar 2), tren perubahan wilayah yang sesuai untuk lima periode pertama meningkat dan kemudian menurun dengan luas terbesar pada tahun 2050 (Gambar 3a, Gambar S3). Kami melihat penurunan besar dalam area C. salsa yang sesuai dalam LGM dibandingkan dengan empat periode lainnya. Dibandingkan dengan saat ini (4 358 775 km2), area yang sesuai berkurang sebesar 50 persen (2 160 975 km2) pada periode LGM, sebesar 10 persen (MH: 3 910 350 km2) pada periode MH, dan sebesar 1 persen (4 328 800 km2) pada periode 2070 dan meningkat sebesar 2 persen (4 428 950 km2) pada periode 2050. Khususnya, dari sekarang ke masa depan (dari 1960 hingga 2080), area unggulan (kelas 1) untuk C. salsa secara bertahap menyusut (sekarang, 243 200 km2; 2050, 232 425 km2; 2070, { {29}} km2).

Bentengekstrak memiliki banyakkesehatanmanfaat
3.2. Prediksi Daerah Distribusi yang Cocok dari C. salsa di Cina dan Kisaran Variabel Bioklimatik.
Daerah yang cocok untuk pertumbuhan C. salsa di Cina terutama terbatas pada Xinjiang barat laut, Mongolia Dalam bagian tengah, Shaanxi utara, Shanxi utara, Qinghai timur laut, Gansu utara, dan sebagian besar Ningxia (Gambar 2b). Daerah yang paling cocok di Cina terutama didistribusikan di Xinjiang, di mana daerah yang sangat baik (kelas 1) meliputi 23 650 km2, daerah yang baik (kelas
2) meliputi 220 950 km2, dan daerah wajar (kelas 3) meliputi 189 975 km2. Di antara daerah yang baik (kelas 2), Xinjiang menyumbang 60,99 persen , diikuti oleh Mongolia Dalam (86 300 km2) dan Gansu (24 450 km2) dengan masing-masing 23,82 persen dan 6,75 persen (Gambar 3b). Hasil model MaxEnt menunjukkan bahwa Xinjiang sangat cocok untuk pertumbuhan C. salsa. Namun, habitat yang berbeda, seperti kerikil-gurun, padang rumput, dan gurun-stepa, ditemukan di daerah yang sama selama kunjungan lapangan. Oleh karena itu, kami sangat tertarik pada karakteristik komunitas mikroba tanah dan hubungannya dengan lingkungan di berbagai ekotipe C. salsa di Tacheng, Xinjiang, Cina.
Pentingnya masing-masing variabel bioklimatik terhadap distribusi C. salsa ditunjukkan pada Tabel 2. Semua nilai merupakan mean dari 10 ulangan. Tiga variabel bioklimatik teratas dengan pengaruh terbesar pada distribusi C. salsa adalah curah hujan kuartal terkering (bio17), curah hujan kuartal terpanas (bio18), dan kisaran diurnal rata-rata (bio2) dengan tingkat kontribusi relatif 25,81 persen , 17,65 persen , dan 13,70 persen . Seperti yang ditunjukkan oleh kurva respons yang diperoleh oleh model MaxEnt, kisaran faktor bio dapat dihitung ketika probabilitas prediksi melebihi 0,5. Misalnya, kisaran bio17 dari 135,30 hingga 11,34 mm, bio 18 dari −206,60 hingga 4,40 mm, dan bio2 dari 11,65 hingga 12,50 derajat .

3.3. Mikrobioma Tanah Dari Tiga Ekotipe C. salsa Menunjukkan Komunitas Mikroba yang Berbeda dan Tumpang Tindih.
Urutan 16S rRNA menghasilkan 518 217 pembacaan mentah, di antaranya 441 576 disaring untuk kualitas dan panjangnya. Kumpulan data berisi 11 818−26 431 (rata-rata: 20 150) urutan per sampel. Bacaan berkualitas tinggi dikelompokkan berdasarkan
>97 persen identitas urutan menjadi 2 788 OTU mikroba (Tabel 1).
Komunitas mikroba diklasifikasikan menjadi 34 filum dan 321 genera. Pada tingkat filum (Gambar 4a), Actinobacteria (DS, 31,94 persen ; GD; 46,42 persen ; GL, 33,33 persen ), Proteobacteria (DS,
23,25 persen; GD, 22,53 persen; GL, 24,68 persen ), dan Gemmatimonadetes (DS, 17,77 persen ; GD, 8,02 persen ; GL, 8,36 persen ) dominan pada ketiga ekotipe. Pada tingkat genus (Gambar 4b), padang pasir− stepa didominasi oleh Euzebya (4,82 persen ) dan Arthrobacter (1,74 persen ), sedangkan genera yang paling dominan di padang pasir− padang pasir adalah Arthrobacter (8,35 persen ) dan Bacillus (4,95 persen). ). Bacillus (6,89 persen) dan Arthrobacter (5,57 persen) dominan di padang rumput. 10 komunitas mikroba paling melimpah di gurun-stepa diklasifikasikan menjadi delapan filum (Gambar 4c), mereka yang ada di gurun pasir-kerikil diklasifikasikan menjadi tujuh filum (Gambar 4d), dan mereka yang di padang rumput diklasifikasikan menjadi 10 filum (Gambar 4e ).
Pengukuran keragaman dalam sampel ( -diversity) mengungkapkan perubahan keragaman dari padang rumput ke gurun kerikil dan gurun pasir stepa (Gambar 4f). Keanekaragaman komunitas mikroba tanah di setiap sampel dievaluasi pada Shannon, Chao 1, Fisher, dan indeks keanekaragaman spesies yang diamati. Shannon, Chao 1, spesies yang diamati, dan indeks Fisher menyarankan bahwa -keanekaragaman komunitas tanah padang rumput

lebih tinggi dari dua komunitas ekotipe lainnya. Hasil kurva penghalusan (Gambar S5) serupa dengan hasil di atas, kecuali untuk YM1 dan HJ3. Hasil AMOVA (Tabel S3) menunjukkan bahwa terdapat perbedaan yang nyata (p < 0.01)="" di="" antara="" ketiga="" ekotipe.="" hasil="" dari="" pcoa="" tak="" terbatas="" dari="" unweighted="" unweighted="" unifrac="" distance="" 2d="" plot="" (gambar="" 4g)="" menunjukkan="" bahwa="" sampel="" tanah="" mikrobioma="" bakteri="" dari="" ekotipe="" yang="" berbeda,="" kecuali="" ym1="" dan="" hj3,="" berkerumun="" dengan="" baik.="" pengelompokan="" pohon="" keragaman="" jarak="" bray="" berdasarkan="" hasil="" algoritme="" pengelompokan="" tunggal="" (gambar="" 4h)="" dari="" tiga="" sampel="" tanah="" ekotipe="" menunjukkan="" bahwa="" sampel="" padang="" rumput,="" kecuali="" ym2,="" berkerumun="" rapat,="" sampel="" tanah="" gurun-stepa,="" kecuali="" ja1,="" mengelompok="" rapat,="" dan="" sampel="" tanah="" kerikil-gurun="" berkerumun="">
3.4. Skrining Mikrobioma Diferensial Tiga Ekotipe C. salsa.
Peta panas kelimpahan genera yang berbeda (Gambar 5a) menunjukkan bahwa kelimpahan genus sampel dari padang gurun berbeda dari sampel dari dua ekotipe lainnya. Seperti yang ditunjukkan pada hasil
LEfSe (Gambar 5c) dan RF (Gambar 5d), peta panas mini di sebelah kanan menunjukkan kelimpahan fitur mikroba dalam tiga ekotipe di tingkat genus. Genera yang dapat mewakili ekotipe padang pasir−stepa termasuk Gillisia, Illumtobacter, Salegentibacter, Marinimicrobium, dll. Variibacter adalah simbol


tingkat genus yang dapat mewakili ekotipe padang pasir kerikil. Biomarker pada ekotipe padang rumput mengandung Flavisolibacter dan Agromyces. Setelah hasil kedua metode digabungkan, 11 biomarker dipilih (Tabel S4). Gambar 5b menunjukkan peta panas kelimpahan 11 biomarker.
3.5. Skrining Mikrobioma Inti dan Prediksi Fungsi Metabolik Tiga Ekotipe C. salsa.
Diagram Venn (Gambar 5e) diplot untuk OTU yang diperoleh dari semua sampel tanah, dan hasilnya menunjukkan bahwa ketiga ekotipe berbagi 1712 OTU. Metode persistensi diadopsi dari fungsi inti dalam mikrobioma paket R untuk mengidentifikasi mikrobioma inti dalam tiga ekotipe C. salsa. Mikrobioma bakteri inti ini mengandung enam OTU dan berhubungan dengan 19,64 persen dari keseluruhan mikrobioma. Dengan mengesampingkan genera yang tidak terdefinisi dan terduplikasi, OTU ini diklasifikasikan menjadi enam genera, dan kelimpahannya digambarkan dalam peta panas (Gambar 5f).
Hasil prediksi fungsional (Gambar 6, File Tambahan 2) menunjukkan bahwa jalur metabolisme fungsional mikrobioma tanah di tiga ekotipe C. salsa identik dalam karbohidrat dan bahwa metabolisme asam amino berlimpah di antara jalur metabolisme. Transpor membran dan transduksi sinyal juga berlimpah dalam pemrosesan informasi lingkungan.
3.6.Analisis Korelasi Komunitas Mikroba dengan Variabel Bioklimatik Tiga Ekotipe C. salsa.
Analisis redundan dari inti, kelimpahan mikrobioma biomarker, dan variabel bioklimatik dilakukan pada tingkat genus, dan analisis ulang dilakukan berdasarkan efek. Interpretasi varians yang disesuaikan adalah 32,5 persen. Curah hujan kuartal terpanas (bio18) menjelaskan 23,9 persen komunitas mikroba (p=0.07). Suhu rata-rata kuartal terpanas (bio10) dan kisaran harian rata-rata (bio2) berkorelasi positif dengan Illumatobacter dan berkorelasi negatif dengan Bacillus (Gambar 7a).
Analisis korelasi dilakukan untuk inti, kelimpahan mikrobioma biomarker, dan tujuh variabel bioklimatik. Hasil jaringan korelasi (Gambar 7b) mengungkapkan bahwa Illumatobacter dan Salegentibacter (biomarker di gurun-stepa) secara signifikan berkorelasi positif dengan kisaran diurnal rata-rata (bio2) dan suhu rata-rata kuartal terpanas (bio10) tetapi secara signifikan berkorelasi negatif dengan ketinggian ( alt) dan curah hujan kuartal terpanas (bio18). Sebaliknya, Agromyces (biomarker di padang rumput) berkorelasi positif dengan ketinggian (alt) dan curah hujan kuartal terpanas (bio18) tetapi berkorelasi negatif dengan rentang harian rata-rata (bio2) dan suhu rata-rata kuartal terpanas (bio10). Selain itu, Arthrobacter (mikrobioma inti) secara signifikan berkorelasi negatif dengan kisaran diurnal rata-rata (bio2) dan suhu rata-rata kuartal terpanas (bio10). Rubrobacter secara signifikan berkorelasi positif dengan curah hujan tahunan (bio12).