

Puasa dan Makan Berlebih Mempengaruhi Ekspresi Gen Terkait Imunitas atau Peradangan pada Hati Unggas Melalui Retrovirus Endogen
Nov 03, 2023
ABSTRAK
Diketahui bahwa nutrisi dan imunitas saling berhubungan, namun mekanismenya tidak begitu jelas. Retrovirus endogen (ERV) mencakup 8 hingga 10% genom manusia dan tikus dan memainkan peran penting dalam beberapa proses biologis hewan. Penelitian terbaru menunjukkan bahwa aktivasi ERV dapat mempengaruhi ekspresi gen yang berhubungan dengan imunitas atau peradangan, dan aktivitas ERV dipengaruhi oleh banyak faktor termasuk faktor nutrisi. Oleh karena itu, kami berhipotesis bahwa status gizi dapat mempengaruhi ekspresi gen terkait imunitas atau peradangan melalui ERV. Untuk memverifikasi hipotesis ini, status nutrisi hewan diubah oleh puasa atau makan berlebihan, dan ekspresi ERV utuh (ERVK18P, ERVK25P) dan gen terkait imunitas atau peradangan (DDX41, IFIH1, IFNG, IRF7, STAT3) di hati. ditentukan dengan PCR kuantitatif, diikuti dengan ekspresi berlebih ERVK25P pada hepatosit primer angsa dan menentukan ekspresi gen yang berhubungan dengan kekebalan atau peradangan. Data menunjukkan bahwa dibandingkan dengan kelompok kontrol (tidak berpuasa), ekspresi ERV dan gen terkait imunitas atau peradangan meningkat pada hati ayam yang dipuasakan namun menurun pada hati angsa yang dipuasakan. Selain itu, dibandingkan dengan kelompok kontrol (yang diberi makan secara rutin), ekspresi ERV dan gen yang terkait dengan imunitas atau peradangan meningkat pada hati angsa yang diberi makan berlebihan. Selain itu, ekspresi ERVK25P yang berlebihan pada hepatosit primer angsa dapat menginduksi ekspresi gen yang berhubungan dengan imunitas atau peradangan. Sebagai kesimpulan, temuan ini menunjukkan bahwa ERV memediasi efek puasa dan makan berlebihan pada ekspresi gen yang berhubungan dengan imunitas atau peradangan, mediasi tersebut bervariasi tergantung spesies unggas, dan ERV serta gen yang berhubungan dengan imunitas atau peradangan mungkin terlibat dalam hal ini. perkembangan hati berlemak angsa. Studi ini memberikan mekanisme potensial untuk hubungan antara nutrisi dan kekebalan.

Cistanche deserticola ma-Menjaga hati
Kata kunci: nutrisi, imunitas, unggas, perlemakan hati, retrovirus endogen
PERKENALAN
Retrovirus endogen (ERV) dianggap sebagai sisa-sisa retrovirus eksogen (provirus). Sebagian besar rangkaian 'fosil' yang tersisa ini mengandung beberapa mutasi yang telah terakumulasi dalam proses evolusi jangka panjang sejak integrasinya ke dalam genom inang (Cañadas et al., 2018). Mereka ada di hampir semua hewan mamalia (seperti manusia, tikus, kucing, dan domba) dan vertebrata lainnya (seperti ayam) (Melanie dan Nair, 2014; Xu et al., 2014). Pada ayam, ERV menyumbang lebih dari 3% genom ayam (Huda et al., 2008). Meskipun ERV berlimpah dalam genom hewan, banyak ERV yang tidak utuh. ERV utuh mengacu pada virus yang strukturnya tidak mudah dibedakan dari retrovirus eksogen. ERV ini biasanya mengandung 2 long terminal repeats (LTR) yang memiliki elemen untuk regulasi transkripsional, rangkaian pengkodean protein virus (antigen spesifik kelompok [Gag], transkriptase balik [Pol], dan protein envelope [Env]), rangkaian jalur polipurin. , dan urutan genom pendek yang mengapit sel inangnya (Jern dan Coffin, 2008; Dolei et al., 2015; K€ury et al., 2018). Sejauh ini, terdapat sekitar 500 ERV yang relatif utuh yang ditemukan dalam genom ayam (Bolisetty et al., 2012). Selain ERV yang relatif utuh, ada jenis ERV lain, termasuk ERV 'ramping' yang tidak memiliki satu atau lebih gen pengkode yang diperlukan untuk replikasi diri (biasanya gen Env) dan ERV 'solo LTR'. Jumlah ERV 'LTR tunggal' adalah sekitar 60 kali lipat jumlah ERV yang relatif utuh (Bolisetty et al., 2012). Analisis filogenetik menunjukkan bahwa proretrovirus unggas (yaitu, ERV) dapat diklasifikasikan menjadi proretrovirus kelas I (mirip gamma), kelas II (mirip alfa dan beta), dan kelas III (mirip spuma). Proretrovirus mirip alfa kalah jumlah dengan proretrovirus mirip beta, mirip gamma, dan alfabeta (Bolisetty dkk., 2012). Dibandingkan dengan proretrovirus mamalia, proretrovirus unggas lebih heterogen. Retrovirus pro mirip beta telah mengalami transisi evolusioner dari mirip beta menjadi mirip alfabet dan kemudian menjadi retrovirus pro mirip alfa, dengan hilangnya penanda retroviral beta secara bertahap. Proretrovirus alfabet adalah perantara antara virus mirip alfa dan beta, termasuk beberapa proretrovirus unggas yang telah dikenal sebelumnya. Retrovirus pro kelas III tampaknya merupakan yang tertua, diikuti oleh retrovirus pro mirip beta dan mirip gamma, sedangkan retrovirus pro mirip alfabet dan alfa tampaknya menjadi yang termuda. Sebagian besar proretrovirus diintegrasikan ke dalam gen inang dalam orientasi indra (Bolisetty et al., 2012).
Manfaat cistanche tubulosa-Menjaga liver
Seperti transposon non-LTR (misalnya, elemen inti yang panjang atau pendek), ERV adalah elemen bergerak yang dapat mengubah posisinya dalam bentuk rangkaian DNA dari satu lokasi ke lokasi lain dalam genom inang. Transposisi ini dimediasi oleh perantara RNA. Meskipun ERV sebagai retrotransposon memiliki kemampuan transposable yang kuat pada tahap awal evolusi, sebagian besar dari mereka kini telah kehilangan kemampuan tersebut (Jern dan Coffin, 2008). Selain itu, studi pengurutan mendalam menunjukkan bahwa banyak ERV umumnya tidak bersuara. Misalnya, hanya sekitar 20% ERV yang ditranskripsi dalam fibroblas embrio ayam, dan sebagian darinya juga ditranskripsi secara in vivo (Bolisetty et al., 2012). Selain itu, penelitian terbaru menunjukkan bahwa beberapa ERV diam dapat diaktifkan dan diekspresikan dalam kondisi tertentu (Crichton et al., 2014), dan ekspresinya dipengaruhi oleh banyak faktor, seperti tipe sel atau tipe jaringan (terutama plasenta dan sel germinal) , diferensiasi sel dan proses penuaan, sitokin, faktor-faktor yang mengganggu fungsi normal sel, dan faktor nutrisi (Taruscio dan Mantovani, 2004; Denner, 2016; Elaheh et al., 2018). Dalam beberapa dekade terakhir, fungsi biologis ERV secara bertahap terungkap: 1) Transposisi ERV dapat mengganggu kestabilan genom inang, namun ERV sebagai materi genetik asli memungkinkan hewan inang untuk meningkatkan keanekaragaman di antara dan di dalam spesies, meningkatkan kemampuan beradaptasi terhadap lingkungan, dan mempertahankan kelangsungan hidup. evolusi (Zhang dkk., 2008); 2) Promotor dan peningkat di wilayah LTR ERV dapat memengaruhi transkripsi gen yang berdekatan dan mengubah status epigenetik wilayah yang berdekatan (seperti metilasi DNA dan modifikasi histon) (Thompson et al., 2016); 3) Dengan mengikat protein Env ke reseptor inang, ERV dapat memblokir pengikatan virus eksogen ke reseptor yang sama, sehingga memberikan sel inang kemampuan untuk melawan virus eksogen (Nadeau et al., 2015); 4) Transkrip ERV dapat mengaktifkan sistem imun bawaan dan menginduksi produksi sitokin seperti IFN melalui jalur pensinyalan TLR3/MDA5 yang bergantung pada RNA untai ganda, sehingga menghambat tumor (Chiappinelli et al., 2015); dan 5) ERV juga terlibat dalam terjadinya dan perkembangan beberapa penyakit, seperti penuaan, autoimunitas, dan penyakit saraf degeneratif (Mager dan Stoye, 2015; Nadeau et al., 2015).
Grup retrovirus endogen K (ERVK) adalah virus endogen yang paling baru di antara berbagai kelompok ERV (ERVW, ERVH, ERVK, dan sebagainya). Ini berisi urutan pengkodean untuk protein fungsional, sehingga dianggap sebagai kelompok ERV yang paling utuh dan aktif secara biologis (Hohn et al., 2013). Ekspresi ERVK yang diregulasi telah dikaitkan dengan penyakit inflamasi, penyakit neurologis, penyakit autoimun, dan sebagainya (Haraguchi et al., 1992; Tolosa et al., 2012). Studi terbaru menunjukkan bahwa aktivasi ERVK oleh inhibitor DNA methyltransferase, 5-aza-2-deoxycytidine, dapat meningkatkan imunitas bawaan seluler (Nogues et al., 2018). Dibandingkan dengan ERVK manusia yang memiliki banyak anggota, avian ERVK hanya memiliki beberapa anggota yang dijelaskan di GenBank. Anggota ERVK beranotasi yang dibagikan oleh ayam dan angsa hanyalah ERVK18P (LOC106029425) dan ERVK25P (LOC106046236). Saat ini, peran biologis atau patologis ERVK unggas masih belum diketahui. Status nutrisi dan energi merupakan faktor penting yang mempengaruhi pertumbuhan, reproduksi, dan kekebalan hewan. Seperti disebutkan sebelumnya, faktor nutrisi dapat mengaktifkan ekspresi ERV, dan ERV dapat mengatur ekspresi gen yang berhubungan dengan imunitas atau peradangan dalam berbagai cara. Oleh karena itu, kami berspekulasi bahwa tingkat nutrisi atau energi dapat mempengaruhi ekspresi gen terkait imunitas atau peradangan melalui ERV. Untuk memverifikasi spekulasi ini, status gizi diubah dengan berpuasa atau memberi makan berlebihan pada ayam atau angsa percobaan, dan ekspresi ERV dan gen yang berhubungan dengan kekebalan atau peradangan di hati kemudian ditentukan. Selain itu, ekspresi berlebih ERVK25P pada hepatosit primer angsa juga dilakukan untuk mengatasi hubungan antara ERV dan gen terkait imunitas (atau peradangan). Studi ini memberikan wawasan baru mengenai mekanisme hubungan antara nutrisi dan imunitas.

cistanche tubulosa-meningkatkan sistem kekebalan tubuh
Klik di sini untuk melihat produk Cistanche Meningkatkan Imunitas
【Minta lebih lanjut】 Email:cindy.xue@wecistanche.com / Aplikasi WhatsApp: 0086 18599088692 / Wechat: 18599088692
BAHAN DAN METODE
Hewan Eksperimental
Semua protokol hewan mematuhi pedoman institusional tentang penggunaan hewan ternak dalam penelitian dan disetujui oleh Komite Perawatan dan Penggunaan Hewan di Universitas Yangzhou di Tiongkok.
Anak angsa Jurong Siji dari kelompok penetasan yang sama dipelihara di tanah dengan pencahayaan alami dan manajemen peternakan konvensional di Peternakan Percobaan Mali (Jurong, Jiangsu, Tiongkok). Pada umur 70 hari, 16 angsa sehat dibagi secara acak menjadi 2 kelompok: kelompok puasa (angsa berpuasa selama 24 jam dengan akses bebas terhadap air) dan kelompok kontrol (tidak berpuasa, akses ad libitum terhadap pakan dan air). Setelah 24 jam puasa, semua individu percobaan dikorbankan, dan sampel hati dikumpulkan, dibekukan dalam nitrogen cair, dan dipindahkan pada suhu 270 C untuk disimpan. Demikian pula, ayam Rhode Island Red sehat berumur enam belas 20-minggu dikorbankan untuk percobaan puasa. Berbeda dengan puasa, enam belas 70-angsa Landes sehat berumur 70-hari (disediakan oleh Licheng Animal and Poultry Co., Ltd., Huaian, Jiangsu, Cina) dibagi secara acak dan merata ke dalam pemberian makan berlebih (24 hari pemberian makan berlebihan) dan kelompok kontrol (memberi makan secara rutin). Protokol pemberian makan berlebihan telah dijelaskan sebelumnya oleh Geng et al., 2016a. Pada hari ke 24 pemberian makan berlebihan, sampel hati diambil dari kelompok kontrol dan kelompok pemberian makan berlebihan dan disimpan pada suhu 270 C.
Isolasi dan Kultur Hepatosit Primer Angsa dan Ekspresi ERV Berlebihan
Hepatosit primer angsa diisolasi dan dikultur dari embrio angsa pada hari ke-22 atau ke-23 penetasan seperti yang dijelaskan sebelumnya oleh Osman et al., 2016. Vektor ekspresi berlebih yang disesuaikan dari gen angsa LOC106046236 (atau anggota ERVK seperti protein 25 Pol, ERVK25P ) dan vektor kosong dibeli dari Suzhou Jima Gene Co., Ltd. (Suzhou, Cina). Vektor ekspresi berlebih dibuat menggunakan vektor pcDNA3.1 yang mengandung promotor CMV dan fragmen DNA yang disisipkan yang merupakan urutan pengkodean gen polimerase ERVK25. Vektor ekspresi berlebih dan vektor kosong secara terpisah ditransfusikan ke hepatosit primer angsa yang telah diisolasi dan dikultur selama 24 jam dengan Lipofectamine 2000 (kucing# 11,668-019, Invitrogen, Co., Ltd., Camarillo). Setelah 32 jam transfeksi, sel dikumpulkan untuk analisis ekspresi gen dengan PCR fluoresensi kuantitatif. Transfeksi dilakukan seperti yang dijelaskan sebelumnya oleh Geng et al., 2013.
Pemurnian RNA dan Sintesis cDNA
Total RNA diisolasi dari sampel hati menggunakan kit TRIzol (cat# DP424; Tiangen Biotech (Beijing) Co., Ltd., Beijing, Cina). Sampel RNA yang dimurnikan ditranskripsi terbalik menjadi cDNA menggunakan kit transkripsi terbalik HiS criptTM Q RTSuperMix (cat# R123-01; Vazyme Biotech Co., Ltd., Nanjing, Cina). Transkripsi terbalik dilakukan sesuai dengan instruksi pabrik.
Manfaat cistanche tubulosa-Menjaga hati
Analisis PCR Kuantitatif
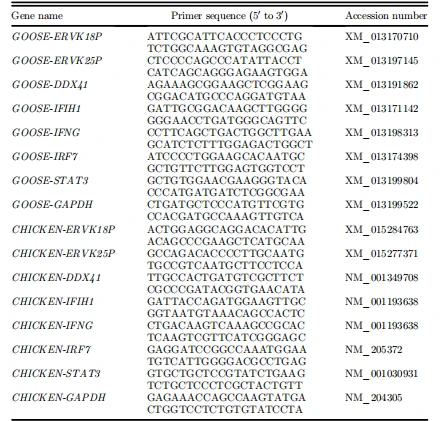
Berdasarkan urutan referensi setiap gen di GenBank, primer PCR kuantitatif untuk gen yang diminati dan gen referensi internal, GAPDH dirancang menggunakan perangkat lunak Primer 3.0 online (Whitehead Institute for Biomedical Research, Cambridge), dan spesifisitas urutan dikonfirmasi menggunakan program Primer-BLAST (Pusat Nasional Informasi Bioteknologi, Bethesda) di situs NCBI. Urutan primer tercantum dalam Tabel 1. Menurut instruksi pabrik, PCR kuantitatif dilakukan dengan menggunakan kit Vazyme AceQ qPCR SYBR Green Master Mix (cat# Q111-02/03; Vazyme Biotech Co., Ltd., Nanjing, Cina) dan sampel cDNA. Ekspresi relatif gen yang diminati dihitung menggunakan metode 22OOCT seperti yang dijelaskan sebelumnya oleh Geng et al., 2016b.
Analisis Imunoblotting
Sampel jaringan hati dilisiskan dalam buffer yang mengandung 50 mmol Tris, pH 7,5, 120 mmol NaCl, 1 mmol EDTA, 15 mmol Na4P2O7, 20 mmol NaF, 1% Nonidet , 0.1% fenilmetil sulfluorida, dan inhibitor protease (0.08 mmol aprotinin, 0.02 mmol leupeptin, 0.04 mmol bestatin, dan 15 mmol pepstatin). Kandungan protein dalam setiap lisat ditentukan menggunakan alat uji protein Bio-Rad RC DC (cat no. 500-0119; Bio-Rad, Hercules) sesuai dengan instruksi pabrik. Protein (10 mg) dari lisat jaringan dipisahkan oleh SDS PAGE dan kemudian dipindahkan ke membran nitroselulosa, yang diinkubasi semalaman dalam susu 5% dalam PBS yang mengandung 0,1% Tween 20. Membran tersebut kemudian diinkubasi dengan antibodi primer semalaman pada suhu 4 C. antibodi berikut digunakan pada pengenceran 1:1000 dalam penelitian ini: anti-STAT3 (kucing no. bs- 1141R; Beijing Biosynthesis Biotechnology Co., Ltd., Beijing, Cina), anti-IFIH1 (cat no. bs-18740R; Beijing Biosynthesis Biotechnology Co., Ltd., Beijing, Cina), anti-aktin (cat no. bsm-33036M; Beijing Biosynthesis Biotechnology Co., Ltd., Beijing, Tiongkok), dan anti-GAPDH (cat no. NB300-221; Novus Biologicals Co., Ltd., CO). Antibodi sekunder yang terkonjugasi dengan peroksidase lobak kuda digunakan pada pengenceran 1:10.000. Protein dideteksi dengan peningkatan chemiluminescence dan sistem deteksi Western blotting (Amersham Biosciences, Beijing, China).
Analisis statistik
Uji-t Student digunakan untuk menganalisis signifikansi statistik dari perbedaan ekspresi gen antara kelompok perlakuan dan kelompok kontrol, dan P,0.05 ditetapkan sebagai kriteria signifikansi statistik. Semua data disajikan sebagai rata-rata 6 SEM.
HASIL
Puasa Menekan Ekspresi ERV dan Gen Terkait Kekebalan Tubuh di Hati Angsa
Primer PCR kuantitatif untuk gen ERV angsa (ERVK18P atau LOC1{{10}}6029425, ERVK25P atau LOC106046236) dirancang berdasarkan urutan referensi di GenBank. Analisis PCR kuantitatif menunjukkan bahwa tingkat ekspresi ERVK18P pada hati angsa mirip dengan ERVK25P (Gambar 1A). Dibandingkan dengan kelompok kontrol (tidak berpuasa), ekspresi ERVK18P dan ERVK25P secara signifikan dihambat dalam hati angsa yang dipuasakan selama 24 jam (P, 0,05 atau 0,01) (Gambar 1B). Oleh karena itu, ekspresi mRNA dari gen yang berhubungan dengan imunitas atau peradangan (DDX41, IFIH1, IFNG, IRF7, STAT3) juga terhambat, dengan perbedaan ekspresi mRNA DDX41 dan IFNG antara angsa yang berpuasa dan angsa kontrol mencapai tingkat yang signifikan secara statistik. (P, 0,05) (Gambar 1B). Analisis imunobloting menunjukkan bahwa kadar protein IFIH1 dalam hati angsa yang dipuasakan tampaknya lebih rendah dibandingkan angsa kontrol (Gambar Tambahan 1).
Tabel 1. Daftar urutan primer untuk PCR kuantitatif.
Puasa Menginduksi Ekspresi ERV dan Gen Terkait Kekebalan Tubuh di Hati Ayam
Analisis PCR kuantitatif menunjukkan bahwa dibandingkan dengan kelompok kontrol (tidak berpuasa), ekspresi mRNA ERVK18P dan ERVK25P yang diinduksi puasa dalam hati ayam, dan induksi mencapai tingkat yang signifikan secara statistik (P, 0.{{5} }5 atau 0.01) (Gambar 2). Demikian pula, puasa juga menginduksi ekspresi mRNA dari gen yang berhubungan dengan imunitas atau peradangan ini, dengan perbedaan ekspresi mRNA IFIH1, IFNG, IRF7, dan STAT3 antar kelompok mencapai tingkat yang signifikan secara statistik (P, 0,05 atau 0,01) (Gambar 2 ). Analisis imunobloting menunjukkan bahwa kadar protein IFIH1 dalam hati angsa yang dipuasakan tampaknya lebih tinggi dibandingkan angsa kontrol (Gambar Tambahan 1).
Pemberian Makan Berlebih Menginduksi Ekspresi ERV dan Gen Terkait Kekebalan Tubuh di Hati Angsa
Analisis PCR kuantitatif menunjukkan bahwa dibandingkan dengan kelompok kontrol (memberi makan secara rutin), ekspresi mRNA ERVK18P dan ERVK25 P di hati angsa yang diberi makan berlebihan selama 24 hari meningkat, dengan perbedaan ekspresi mRNA ERVK18P antara kontrol dan angsa yang diberi makan berlebihan mencapai ke tingkat yang signifikan secara statistik (P, 0.05) (Gambar 3). Oleh karena itu, ekspresi mRNA dari gen yang berhubungan dengan kekebalan atau peradangan pada hati angsa yang diberi makan berlebihan juga meningkat, dengan perbedaan ekspresi mRNA IRF7 antara angsa kontrol dan angsa yang diberi makan berlebihan mencapai tingkat yang signifikan secara statistik (P, 0,05) ( Gambar 3). Analisis imunobloting menunjukkan bahwa tingkat protein IFIH1 dalam hati angsa yang diberi makan berlebihan tampaknya lebih tinggi dibandingkan angsa kontrol (Gambar Tambahan 1).
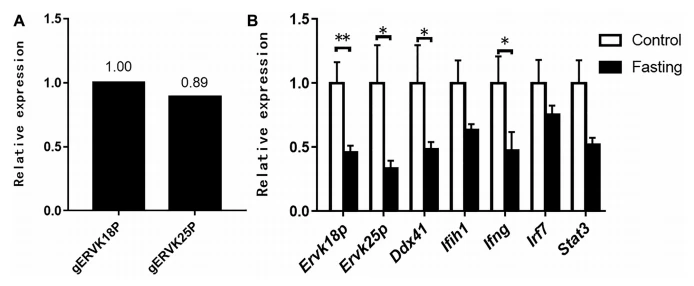
Gambar 1. Ekspresi ERV dan gen terkait kekebalan pada hati angsa dihambat dengan puasa. Ekspresi relatif ERV dan gen yang berhubungan dengan kekebalan ditentukan oleh PCR kuantitatif. (A) Ekspresi ERVK18P dan ERVK25P pada hati angsa dewasa normal. (B) Ekspresi ERVK18P, ERVK25P, DDX41, IFIH1, IFNG, IRF7, dan STAT3 dalam hati angsa yang dipuasakan disajikan sebagai perubahan lipatan pada kontrol (tidak berpuasa), n 5 6. *,** masing-masing menunjukkan P, 0.05, 0,01 vs. kontrol. Semua data ditampilkan sebagai rata-rata 6 SEM. Singkatan: ERV, retrovirus endogen.
Ekspresi Berlebih Retrovirus Endogen Menginduksi Ekspresi Gen Terkait Kekebalan Tubuh
Setelah 32 jam transfeksi hepatosit primer angsa dengan vektor kosong atau vektor ekspresi berlebih yang mengandung urutan pengkodean gen Pol angsa ERVK25P, ekspresi mRNA dari gen Pol dalam sel yang ditransfeksi dengan vektor ekspresi berlebih adalah sekitar 97 kali lebih banyak dari itu. dalam sel yang ditransfeksi dengan vektor kosong (P, 0.01) (Gambar 4). Seperti yang diharapkan, ekspresi gen yang berhubungan dengan imunitas atau peradangan diinduksi oleh ekspresi berlebih ERVK25P, dan induksi IFIH1, IFNG, IRF7, dan STAT3 mencapai tingkat yang signifikan secara statistik (P, 0.05 atau 0.01) (Gambar 4).
DISKUSI
Tingkat nutrisi dan energi merupakan faktor penting yang mempengaruhi pertumbuhan, reproduksi, dan kekebalan hewan. Kelaparan (atau puasa) dan pemberian makan adalah 2 keadaan umum yang mempengaruhi tingkat nutrisi atau energi, sehingga sering digunakan sebagai model penelitian untuk menjelaskan pengaturan nutrisi atau energi pada fungsi fisiologis hewan. Misalnya saja, puasa atau pemberian makan dapat mempengaruhi ekspresi gen terkait pertumbuhan, reproduksi, dan imunitas (Volkoff et al., 2016; Smati et al., 2020). Namun masih belum jelas apakah puasa atau makan dapat mengaktifkan ERV dan memengaruhi ekspresi gen terkait imunitas atau peradangan melalui ERV. Selain itu, pemberian makan berlebihan dalam jangka pendek (3-4 minggu) dapat menyebabkan pembentukan hati berlemak angsa (umumnya dikenal sebagai foie gras), yang mirip dengan penyakit hati berlemak nonalkohol (NAFLD) pada manusia dan hewan pengerat (Nahum et al. , 2010; Wang et al., 2019), namun tidak diketahui apakah ERV diaktifkan karena pemberian makan berlebihan dan terlibat dalam perkembangan perlemakan hati angsa. Dalam penelitian ini, ekspresi ERV dan beberapa gen yang berhubungan dengan imunitas atau peradangan pada hati angsa atau ayam ditentukan setelah mengubah status nutrisi atau energi hewan dengan berpuasa atau memberi makan berlebihan, sehingga hubungan antara status nutrisi (atau energi) dan status energi meningkat. ekspresi ERV dan gen yang berhubungan dengan imunitas (atau peradangan) dapat diklarifikasi. Selain itu, ekspresi berlebih ERVK25P pada hepatosit primer angsa juga dilakukan untuk memverifikasi apakah ekspresi gen yang berhubungan dengan imunitas atau peradangan dipengaruhi oleh ERV. Memang benar, hasil ini memberikan bukti kuat yang mendukung gagasan bahwa status nutrisi atau energi dapat mengatur ekspresi gen terkait imunitas atau peradangan melalui ERV pada unggas. Menariknya, efek puasa terhadap ekspresi mRNA ERV dan gen yang berhubungan dengan imunitas atau inflamasi pada hati berbeda-beda pada setiap spesies unggas, yaitu ekspresi mRNA dari gen pada hati ayam berlawanan dengan ekspresi mRNA pada hati angsa. . Selain itu, ekspresi mRNA gen dalam hati angsa yang berpuasa bertentangan dengan ekspresi angsa yang makan berlebihan. Selain itu, data menunjukkan bahwa gen yang berhubungan dengan kekebalan atau peradangan dapat memediasi regulasi ERV pada perkembangan hati berlemak angsa (atau foie gras).
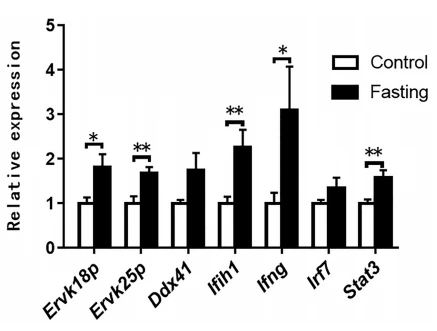
Gambar 2. Ekspresi ERV dan gen yang berhubungan dengan imunitas atau peradangan pada hati ayam diinduksi dengan puasa. Ekspresi relatif ERV dan gen yang berhubungan dengan kekebalan ditentukan oleh PCR kuantitatif. Tingkat ekspresi ERVK18P, ERVK25P, DDX41, IFIH1, IFNG, IRF7, dan STAT3 dalam hati ayam yang dipuasakan disajikan sebagai perubahan lipatan pada kontrol (tidak puasa), n {{10}} . *,** masing-masing menunjukkan P, 0.05, 0.01 vs. kontrol. Semua data ditampilkan sebagai rata-rata 6 SEM. Singkatan: ERV, retrovirus endogen.
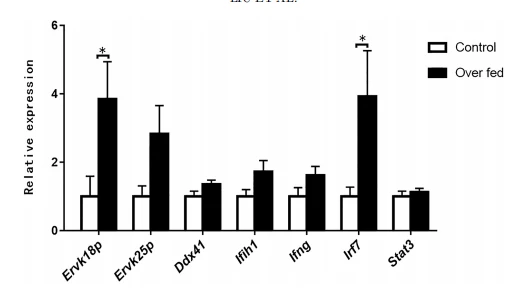
Gambar 3. Ekspresi ERV dan gen yang berhubungan dengan kekebalan atau peradangan pada hati angsa disebabkan oleh pemberian makan yang berlebihan. Ekspresi relatif ERV dan gen yang berhubungan dengan kekebalan ditentukan oleh PCR kuantitatif. Tingkat ekspresi ERVK18P, ERVK25P, DDX41, IFIH1, IFNG, IRF7, dan STAT3 dalam hati angsa yang diberi makan berlebihan disajikan sebagai perubahan lipatan pada kontrol (pemberian makan rutin), n {{10}} . * menunjukkan P, 0,05 vs. kontrol. Semua data ditampilkan sebagai rata-rata 6 SEM. Singkatan: ERV, retrovirus endogen.
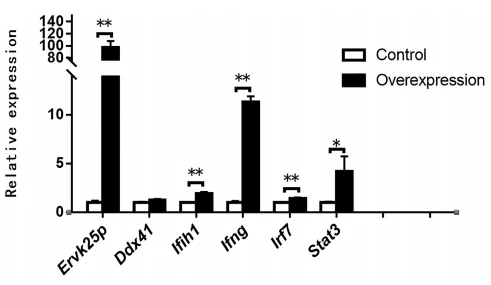
Gambar 4. Ekspresi gen yang berhubungan dengan imunitas atau peradangan disebabkan oleh ekspresi berlebih ERV pada hepatosit primer angsa. Ekspresi relatif ERV dan gen yang berhubungan dengan kekebalan ditentukan oleh PCR kuantitatif. Ekspresi ERVK25P, DDX41, IFIH1, IFNG, IRF7, dan STAT3 pada hepatosit primer angsa yang ditransfeksi dengan vektor ekspresi berlebih ERVK25P disajikan sebagai perubahan lipatan pada kontrol (hepatosit ditransfeksi dengan vektor kosong), n {{1{{11 }}}}. *,** masing-masing menunjukkan P, 0.05, 0.01 vs. kontrol. Semua data ditampilkan sebagai rata-rata 6 SEM. Singkatan: ERV, retrovirus endogen.
Penelitian sebelumnya telah menunjukkan bahwa ERV umumnya dibungkam melalui metilasi DNA dalam sel inang, namun ERV dapat diaktifkan oleh MER48 (Walsh et al., 1998; Gibb et al., 2015). Induksi ERV juga ditunjukkan pada beberapa penyakit, termasuk beberapa penyakit metabolik seperti multiple sclerosis, yang melibatkan gen yang berhubungan dengan imunitas atau peradangan (Perron et al., 2000). Studi mekanistik menunjukkan peradangan memainkan peran penting dalam patogenesis penyakit metabolik yang biasanya disebabkan oleh kelebihan pasokan nutrisi atau energi (Eo et al., 2017). Selain itu, ditemukan bahwa puasa atau makan berlebihan dapat mengubah tingkat metilasi DNA gen reseptor yang diaktifkan proliferator peroksisom (Jacobsen et al., 2014; Hjort et al., 2017). Berdasarkan temuan ini, ada kemungkinan bahwa perubahan nutrisi mengaktifkan ekspresi mRNA ERV melalui regulasi epigenetik. Di sisi lain, perubahan nutrisi dapat menginduksi ekspresi mRNA dari beberapa gen terkait imunitas atau peradangan (Smati et al., 2020). Sejalan dengan temuan ini, penelitian ini menunjukkan bahwa puasa atau makan berlebihan mempengaruhi ekspresi mRNA dari ERV dan gen yang berhubungan dengan imunitas atau peradangan dan bahwa ekspresi mRNA dari ERV berhubungan erat dengan ekspresi mRNA dari gen yang berhubungan dengan imunitas atau peradangan. gen.

manfaat cistanche untuk pria-memperkuat sistem kekebalan tubuh
Karena ERV berlimpah dalam genom hewan, peran ERV dalam pengaturan nutrisi atau energi pada imunitas atau peradangan mungkin diremehkan. Penelitian ini terutama membahas ERVK18 dan ERVK25 yang memediasi efek puasa atau makan berlebihan pada ekspresi mRNA dari gen yang berhubungan dengan imunitas atau peradangan. Gen ERVK saat ini hanyalah ERV yang relatif utuh yang dijelaskan pada genom angsa dan ayam. Selain ERV yang relatif utuh ini, ERV 'ramping' dan ERV 'LTR tunggal' dapat diaktifkan dengan berpuasa atau makan berlebihan dan dengan demikian juga berkontribusi terhadap efek puasa atau makan berlebihan pada ekspresi mRNA dari gen yang berhubungan dengan kekebalan atau peradangan. Karena ERV 'slender' dan 'solo LTR' biasanya terletak di dekat beberapa gen inang (Thompson dkk., 2016), puasa atau makan berlebihan dapat mengatur ekspresi mRNA dari gen yang terkait dengan imunitas atau peradangan melalui efek cis dari gen tersebut. ERV yang diaktifkan. Dari sudut pandang ini, pemeliharaan kekebalan pada tingkat dasar mungkin sebagian disebabkan oleh sebagian kecil dari ERV aktif. Penelitian sebelumnya menunjukkan bahwa beberapa ERV secara teratur ditranskripsikan pada fibroblas embrio ayam (sekitar 20% dari ERV) dan in vivo (Bolisetty et al., 2012). Pengaturan puasa atau makan berlebihan pada ekspresi mRNA ERV kemungkinan besar melalui modifikasi epigenetik (misalnya metilasi DNA) seperti yang disebutkan sebelumnya. Telah dilaporkan bahwa AZA, suatu penghambat DNA metiltransferase, secara signifikan dapat menginduksi ekspresi mRNA ERV dalam sel (Jaenisch et al., 1985; Deborah dan Bestor, 2004). Ekspresi mRNA ERV diatur secara berbeda dalam hati ayam vs. hati angsa dengan berpuasa, menunjukkan bahwa ada tingkat modifikasi epigenetik yang berbeda untuk mengontrol ekspresi ERV antara ayam dan angsa. Kesimpulan ini didukung oleh bukti yang menunjukkan bahwa ekspresi mRNA ERV bergantung pada tipe sel (Nogues et al., 2018). Bagaimana puasa atau makan berlebihan mempengaruhi metilasi DNA ERV, masih harus diklarifikasi. Selain itu, perbedaan genetik antara ayam dan angsa mungkin berkontribusi terhadap perbedaan ekspresi ERV antara kedua spesies, seperti perbedaan respons faktor transkripsi terhadap rangsangan internal atau eksternal. Memang benar, hasil kami sebelumnya menunjukkan bahwa ekspresi mRNA dari banyak gen pada hati berlemak angsa vs. hati normal bertentangan dengan ekspresi mRNA pada manusia (atau tikus) NAFLD vs. hati normal (Liu et al., 2016). Selain itu, faktor lingkungan dan lainnya, seperti umur, pakan, cahaya, dan kondisi peternakan lainnya, mungkin juga bertanggung jawab atas perbedaan ekspresi ERV antara ayam dan angsa.
Dalam penelitian ini, ekspresi berlebih ERVK25P meningkatkan ekspresi gen terkait imunitas atau peradangan, yang memberikan bukti kuat yang mendukung gagasan bahwa puasa atau makan berlebihan mengatur ekspresi mRNA dari gen terkait imunitas atau peradangan di hati melalui ERV. Ada 2 mekanisme potensial dimana ekspresi berlebih dari ERV yang relatif utuh meningkatkan ekspresi mRNA dari gen yang berhubungan dengan imunitas atau peradangan: 1) RNA beruntai ganda yang terbentuk dalam transkrip ERV atau dengan hibridisasi dengan RNA antisense dapat mengaktifkan sinyal NFkB jalur RNA beruntai ganda yang berikatan dengan reseptornya (misalnya TLR3) dan pada gilirannya menginduksi ekspresi gen terkait imunitas atau peradangan (Chiappinelli et al., 2015); 2) ERV yang relatif utuh juga dapat mengekspresikan protein atau polipeptida yang dikodekan, yang mengarah pada aktivasi jalur sinyal hilir dan ekspresi gen yang terkait dengan kekebalan atau peradangan. Meskipun penelitian ini tidak dapat mendeteksi ekspresi protein ERVK18P dan ERVK25P karena kurangnya antibodi yang tepat, penelitian sebelumnya telah menunjukkan bahwa beberapa ERV, terutama ERVK, dapat mensintesis proteinnya dan menginduksi ekspresi gen yang berhubungan dengan kekebalan atau peradangan di saraf. sel (Manghera dkk., 2015). Protein ini dapat dirasakan oleh reseptor hewan seperti RIG-1, protein kinase K, dan molekul tubuh inflamasi NLRP3 (Mitoma et al., 2013; Mu et al., 2016). Hubungan antara nutrisi (atau energi) dan imunitas (atau peradangan) telah ditunjukkan pada beberapa gangguan yang berhubungan dengan nutrisi atau energi, terutama pada penyakit yang berhubungan dengan obesitas termasuk diabetes dan NAFLD. Obesitas telah dianggap sebagai peradangan kronis karena banyak gen yang berhubungan dengan peradangan (misalnya, sitokin proinflamasi tumor necrosis factor-alpha, MCP1, dan IL6) diinduksi pada pasien dengan obesitas vs. kelompok sehat (Ferreira et al., 2016). Sitokin ini dapat menyebabkan resistensi insulin dan memperburuk gangguan metabolisme terkait obesitas (Li et al., 2019). Dalam penelitian ini, data menunjukkan bahwa ERV dan gen yang berhubungan dengan kekebalan atau peradangan diinduksi pada hati berlemak angsa vs hati normal. Hati adalah organ yang sangat kompleks, yang tidak hanya memainkan peran sentral dalam konversi nutrisi dan energi tetapi juga memiliki fungsi detoksifikasi dan pengaturan kekebalan tubuh. Hati mengandung sejumlah besar sel kekebalan, seperti sel Kupffer (makrofag yang menetap), sel pembunuh alami, dan sel T pembunuh alami. Hati juga mensintesis komponen pelengkap dan sejumlah besar reseptor pengenalan patogen terlarut lainnya (Keith et al., 2007). Oleh karena itu, hati saat ini dianggap sebagai organ kekebalan yang penting dan berperan dalam kekebalan bawaan (atau peradangan) (Xia et al., 2008; Trigger, 2010). ERV dan gen-gen yang berhubungan dengan imunitas atau peradangan yang diinduksinya mungkin penting bagi fungsi fisiologis hati dan berfungsi sebagai penghubung antara metabolisme nutrisi dan imunitas (atau peradangan). Dalam penelitian ini, meskipun perubahan nutrisi (atau energi) menginduksi ekspresi mRNA dari ERV dan gen yang berhubungan dengan imunitas atau peradangan pada hati berlemak angsa vs. hati yang normal, patut dicatat bahwa gen yang berhubungan dengan imunitas atau peradangan yang diinduksi oleh ERV mungkin umpan balik mengatur metabolisme nutrisi (Volkman dan Stetson, 2014; Cañadas et al., 2018). Oleh karena itu, penelitian ini memberikan beberapa bukti yang mendukung gagasan bahwa ERV berpartisipasi dalam pengembangan hati berlemak angsa melalui gen yang berhubungan dengan kekebalan atau peradangan.

manfaat suplemen cistanche-cara memperkuat sistem kekebalan tubuh
Dalam penelitian ini, kami juga menentukan kadar protein IFIH1 dalam hati angsa puasa vs angsa kontrol, ayam puasa vs ayam kontrol, dan angsa yang makan berlebihan vs angsa kontrol. Meskipun pola tingkat protein IFIH1 mirip dengan tingkat mRNA IFIH1, perbedaan tingkat protein antara kelompok perlakuan dan kelompok kontrol tidak sejelas pada tingkat mRNA. Penjelasan yang mungkin mencakup bahwa tingkat protein IFIH1 dapat diatur pasca-transkripsi. Kesimpulannya, status nutrisi atau energi mempengaruhi ekspresi beberapa gen yang berhubungan dengan imunitas atau peradangan melalui ERV, yang menyediakan mekanisme potensial yang mendasari hubungan antara nutrisi (atau energi) dan imunitas (atau peradangan). Status nutrisi atau energi dapat mengatur ekspresi ERV melalui metilasi DNA. Terdapat perbedaan dalam regulasi epigenetik antar spesies unggas, dan mekanisme spesifiknya perlu dipelajari lebih lanjut. Gen yang berhubungan dengan imunitas atau peradangan dipengaruhi oleh status nutrisi atau energi tidak hanya berpartisipasi dalam respon imun bawaan tetapi juga berperan dalam peradangan, pertumbuhan hewan dan apoptosis, serta regulasi umpan balik nutrisi atau metabolisme energi. Selain itu, penelitian ini juga untuk pertama kalinya mengungkapkan bahwa ERV dan gen yang terkait dengan imunitas atau peradangan terlibat dalam perkembangan penyakit hati berlemak angsa.
REFERENSI
Bolisetty, M., J. Blomberg, F. Benachenhou, G. Sperber, dan K. Beemon. 2012. Keanekaragaman dan ekspresi retrovirus endogen unggas yang tak terduga. mBio 3 e00344-00312.
Cañadas, I., R. Thummalapalli, JW Kim, S. Kitajima, RW Jenkins, CL Christensen, M. Campisi, Y. Kuang, Y. Zhang, E. Gjini, G. Zhang, T. Tian, DR Sen, D .Miao, Y. Imamura, T. Thai, B. Piel, H. Terai, AR Aref, T. Hagan, S. Koyama, M. Watanabe, H. Baba, AE Adeni, CA Lydon, P. Tamayo, Z. Wei, M. Herlyn, TU Barbie, R. Uppaluri, LM Sholl, E. Sicinska, J. Sands, S. Rodig, KK Wong, CP Paweletz, H. Watanabe, dan DA Barbie. 2018. Imunitas bawaan tumor yang diprioritaskan oleh retrovirus endogen spesifik yang distimulasi interferon. Nat. medis. 24:1143–1150.
Chiappinelli, KB, PL Strissel, D. Alexis, HL Li, H. Christine, A. Benjamin, H. Alexander, NS Rote, LM Cope, S. Alexandra, M. Vladimir, B. Sadna, JS Dennis, DW Jedd, MP Drew, WB Matthias, AZ Cynthia, M. Taha, AC Timothy, BB Stephen, dan S. Reiner. 2015. Menghambat metilasi DNA menyebabkan respons interferon pada kanker melalui dsRNA termasuk retrovirus endogen. Sel 162:974–986.
Crichton, JH, DS Dunican, M. Marie, RR Meehan, dan IR Adams. 2014. Mempertahankan genom dari musuh dalam mekanisme penekanan retrotransposon pada germline tikus. Sel. mol. Ilmu Kehidupan. 71:1581–1605.
Deborah, BH, dan TH Bestor. 2004. Bencana meiosis dan reaktivasi retrotransposon pada sel germinal pria yang kekurangan Dnmt3L. Alam 431:96–99.
Denner, J. 2016. Ekspresi dan fungsi retrovirus endogen di plasenta. APMIS 124:31–43.
Dolei, A., E. Uleri, G. Ibba, M. Caocci, C. Piu, dan C. Serra. 2015. Alien di dalam DNA manusia: HERV-W/MSRV/syncytin-1 retrovirus endogen dan degenerasi saraf. J. Menginfeksi. Dev. Negara. 9:577–587.
Elaheh, K., N. Farzaneh, P. Mirshokraei, SE Tabatabaeizadeh, dan H. Dehghani. 2018. Ekspresi retrovirus endogen pada tahap praimplantasi embrio sapi. mereproduksi. Domestik. animasi. 53:1405–1414.
Eo, H., JE Park, YJ Jeon, dan Y. Lim. 2017. Efek perbaikan ekstrak polifenol cava kolonial pada peradangan ginjal yang terkait dengan metabolisme energi yang menyimpang dan stres oksidatif pada tikus obesitas yang diinduksi diet tinggi lemak. J.Pertanian. Kimia Makanan. 65:3811–3818
Ferreira, PS, LC Spolidorio, JA Manthey, dan TB Cesar. 2016. Flavanon jeruk mencegah peradangan sistemik dan memperbaiki stres oksidatif pada tikus C57BL/6J yang diberi diet tinggi lemak. Fungsi Pangan. 7:2675–2681.
Geng, TY, W. Hu, MH Broadwater, JM Snider, J. Bielawski, SB Russo, JH Schwacke, J. Ross, dan LA Cowart. 2013. Asam lemak mengatur resistensi insulin secara berbeda melalui induksi tribbles yang dimediasi stres retikulum endoplasma homolog 3: hubungan potensial antara komposisi lemak makanan dan hasil patofisiologis obesitas. Diabetologia 56:2078–2087.
Geng, TY, B. Yang, FY Li, LL Xia, Q. Wang, X. Zhao, dan DQ Gong. 2016a. Identifikasi komponen pelindung yang mencegah eksaserbasi perlemakan hati angsa: karakterisasi, ekspresi, dan regulasi reseptor adiponektin. Komp. Biokimia. Fisiol. B Biokimia. mol. biologi. 194:32–38.
Geng, TY, X. Zhao, LL Xia, L. Liu, FY Li, B. Yang, Q. Wang, S. Montgomery, HM Cui, dan DQ Gong. 2016b. Melengkapi gula makanan meningkatkan resistensi insulin dan perlemakan hati pada angsa yang tidak bergantung pada stres retikulum endoplasma. Biokimia. Biofisika. Res. Komunitas. 476:665–669.
Gibb, EA, RL Warren, GW Wilson, SD Brown, GA Robertson, GB Morin, dan RA Holt. 2015. Aktivasi RNA non-coding panjang terkait retrovirus endogen pada adenokarsinoma manusia. Kedokteran Genom. 7:22.
Haraguchi, S., RA Baik, GJ Cianciolo, dan NK Day. 1992. Peptida sintetik yang homolog dengan protein selubung retroviral menurunkan regulasi ekspresi mRNA TNF-a dan IFN-g. J.Leukoc. biologi. 52:469–472.
Hjort, L., SW Jørgensen, L. Gillberg, E. Hall, C. Brøns, J. Frystyk, AA Vaag, dan C. Ling. 2017. Puasa 36 jam pada pria muda memengaruhi metilasi DNA jaringan adiposa LEP dan ADIPOQ yang bergantung pada berat badan lahir. Klinik. Epigenetika 9:40.
Hohn, O., K. Hanke, dan N. Bannert. 2013. HERV-K (HML-2), keluarga HERV yang paling terpelihara: endogenisasi, ekspresi, dan implikasinya pada kesehatan dan penyakit. Depan. Onkol. 3:246.
Huda, A., N. Polavarapu, IK Jordan, dan JF McDonald. 2008. Retrovirus endogen genom ayam. biologi. Langsung 3:9.
Jacobsen, SC, L. Gillberg, J. Bork-Jensen, R. Ribel-Madsen, E. Lara, V. Calvanese, C. Ling, AF Fernandez, MF Fraga, P. Poulsen, C. Brøns, dan A. Vaag . 2014. Laki-laki muda dengan berat badan lahir rendah menunjukkan penurunan plastisitas metilasi DNA otot seluruh genom akibat pemberian makan berlebihan yang tinggi lemak. Diabetologi 57:1154–1158.
Jaenisch, R., A. Schnieke, dan K. Harbers. 1985. Pengobatan tikus dengan 5-azacytidine secara efisien mengaktifkan genom retroviral diam di jaringan berbeda. Proses. Natal. Akademik. Sains. AS 82:1451–1455.
Jern, P., dan JM Peti Mati. 2008. Pengaruh retrovirus pada fungsi genom inang. Ann. Pendeta Genet. 42:709–732.
Keith, EG, RB Jones, DA Meiklejohn, N. Anwar, LC Ndhlovu, JM Chapman, AL Erickson, A. Agrawal, G. Spotts, FM Hecht, NS Rakoff, J. Lenz, MA Ostrowski, dan DF Nixon. 2007. Respons sel T terhadap retrovirus endogen manusia pada infeksi HIV-1. Patog PLoS. 3:e165.
K€ury, P., A. Nath, A. Creange, A. Dolei, P. Marche, J. Gold, G. Giovannoni, HP Hartung, dan H. Perron. 2018. Retrovirus endogen manusia pada penyakit neurologis. Tren Mol. medis. 24:379–394.
Li, JY, YD Wang, XY Qi, L. Ran, T. Hong, J. Yang, B. Yan, ZZ Liao, JH Liu, dan XH Xiao. 2019. Kadar CCN3 serum meningkat pada diabetes melitus tipe 2 dan berhubungan dengan obesitas, resistensi insulin, dan peradangan. Klinik. Chim. Kisah 494:52–57.
Anda Mungkin Juga Menyukai
-

Ekstrak Cistanche Meningkatkan Kekebalan
-

Suplemen Cistanche Untuk Meningkatkan Sistem Kekebalan Tubuh
-

Suplemen Cistanche Tubulosa Meningkatkan Memori
-

Suplemen Memori Enhnche Cistanche Tubulosa
-

Suplemen Makanan Cistanche Imunomodulator Phenylethanoid ...
-

Suplemen Makanan Cistanche Dukungan anti-inflamasi Phenyl...