EDS1-interaksi J Protein 1 Merupakan Regulator Negatif Penting Terhadap Imunitas Bawaan Tumbuhan di Arabidopsis
Nov 10, 2023
Abstrak
Tanaman telah mengembangkan mekanisme yang tepat untuk mengoptimalkan respon imun terhadap patogen. PENINGKATAN KERENTANAN PENYAKIT 1 (EDS1) memainkan peran penting dalam kekebalan bawaan tanaman dengan mengatur resistensi basal dan kekebalan yang dipicu oleh efektor. Perdagangan nukleositoplasma EDS1 diperlukan untuk memperkuat resistensi, tetapi mekanisme molekulernya masih sulit dipahami. Di sini, kami menunjukkan bahwa EDS1-INTERACTING J PROTEIN1 (EIJ1), yang bertindak sebagai pendamping mirip protein DnaJ dalam respons terhadap infeksi patogen, berfungsi sebagai pengatur negatif penting imunitas tanaman dengan berinteraksi dengan EDS1. Hilangnya fungsi mutasi EIJ1 tidak mempengaruhi pertumbuhan tanaman tetapi secara signifikan meningkatkan resistensi patogen. Setelah infeksi patogen, EIJ1 berpindah lokasi dari kloroplas ke sitoplasma, di mana ia berinteraksi dengan EDS1, sehingga membatasi perdagangan EDS1 yang dipicu patogen ke nukleus dan mengganggu resistensi pada tahap awal infeksi. Selama perkembangan penyakit, EIJ1 secara bertahap terdegradasi, memungkinkan akumulasi inti EDS1 untuk memperkuat resistensi transkripsional. Strain avirulen Pst DC3000 (AvrRps4) menghapuskan tindakan represif EIJ1 dengan secara cepat menginduksi degradasinya dalam respon imunitas yang dipicu oleh efektor. Oleh karena itu, temuan kami menunjukkan bahwa EIJ1 merupakan regulator negatif penting yang bergantung pada EDS pada imunitas tanaman bawaan dan memberikan pemahaman mekanistik tentang bagaimana distribusi EDS1 nuklir versus sitoplasma diatur selama respons imun.

manfaat cistanche-memperkuat sistem kekebalan tubuh
Perkenalan
Tumbuhan telah mengembangkan jaringan yang rumit untuk memodulasi respons imunnya. Untuk mempertahankan diri terhadap patogen, tanaman menerapkan dua strategi regulasi utama: imunitas yang dipicu pola (PTI), dan imunitas yang dipicu efektor (ETI). PTI diatur oleh reseptor pengenalan pola (PRR) yang mengenali pola molekuler terkait patogen atau mikroba (Zipfel, 2008). Untuk memfasilitasi infeksi, patogen virulen menekan PTI dengan mengeluarkan efektor patogen, dan mereka memanipulasi sel inang untuk memfasilitasi perolehan nutrisi dan akhirnya reproduksi (Tsuda dan Katagiri, 2010). Resistensi tingkat rendah yang ditunjukkan tanaman terhadap patogen mematikan ini disebut resistensi basal (Jones dan Dangl, 2006; Klessig dkk., 2018). Di sisi lain, ETI dimediasi oleh protein ketahanan penyakit (R) yang dikodekan oleh tanaman, yang secara langsung atau tidak langsung dapat mengenali keberadaan efektor yang disekresikan oleh patogen (Tsuda dan Katagiri, 2010). Kebanyakan protein R mengandung situs pengikatan nukleotida dan domain berulang kaya leusin (NB-LRR). Protein NB-LRR yang mengandung domain interaksi protein-protein N-terminal Toll/Interleukin-1 receptor (TIR) dikenal sebagai protein TIR-NB-LRR (TNL), dan terdiri dari kelompok NB-LRR terbesar. protein LRR (Caplan dkk., 2008). Dibandingkan dengan resistensi basal, ETI menginduksi respons pertahanan yang lebih kuat dan lebih cepat terhadap patogen dan sering kali disertai dengan kematian sel lokal, yang merupakan ciri khas dari respons hipersensitif (HR; Dodds dan Rathjen, 2010). PENINGKATAN KERENTANAN PENYAKIT 1 (EDS1), pengatur utama imunitas tanaman, membantu mengendalikan resistensi basal dengan membatasi invasi patogen biotrofik dan hemibiotrofik (Wiermer et al., 2005). EDS1 juga memainkan peran penting dalam ETI, yang terutama dimediasi oleh protein R kelas TNL (Heidrich et al., 2012). EDS1 bekerja erat dengan koregulatornya PHYTOALEXIN DEFICIENT 4 dan SENESCENCE-ASSOCIATED GENE 101 dalam sitoplasma dan/atau nukleus untuk mengatur produksi spesies oksigen reaktif (ROS) intraseluler, akumulasi asam salisilat (SA), dan proses lainnya, sehingga memperkuat resistensi patogen (Ruste ´rucci dkk., 2001; Rietz dkk., 2011; Wagner dkk., 2013). Oleh karena itu, mutan Arabidopsis eds1 sangat rentan terhadap Pseudomonas syringae pv. strain tomat (Pst) DC3000 dan menunjukkan ETI yang dimediasi TNL, di mana ekspresi ISOCHORISMATE SYNTHASE1 (ICS1; gen biosintetik SA) dan biosintesis SA dihambat (Parker et al., 1996; Feys et al., 2001; Bartsch et al., 2006). Selain itu, EDS1 menunjukkan perdagangan protein antara sitoplasma dan nukleus yang dimediasi oleh reseptor transpor nuklir (Garcı´a et al., 2010). Meskipun fungsi nuklir EDS1 melibatkan resistensi basal dan produksi ROS, kematian sel terprogram dan penguatan resistensi memerlukan koordinasi lokalisasi nuklir versus sitoplasma EDS1 (Heidrich et al., 2011). Keseimbangan antara jumlah EDS1 dalam sitosol dan jumlah dalam nukleus penting untuk efisiensi resistensi basal dan imunitas yang dipicu TNL (Garcı´a et al., 2010). Namun, bagaimana EDS1 mempertahankan pola distribusi nukleositoplasma selama respon imun bawaan tanaman masih belum jelas. Protein DnaJ (atau protein J) adalah protein pendamping (Pulido dan Leister, 2018) yang termasuk dalam superfamili domain kaya sistein (Cys) dan berpartisipasi dalam pelipatan dan perakitan protein yang baru lahir, pengangkutan protein melintasi membran dengan pelipatan ulang berikutnya, dan pembuangan protein yang tidak terlipat atau rusak (Bukau et al., 2006). Proses-proses ini diperlukan agar sebagian besar protein seluler dapat berfungsi normal pada berbagai tahap perkembangan (Pulido dan Leister, 2018). Penelitian pada berbagai organisme menunjukkan bahwa protein DnaJ juga memainkan peran beragam dalam respons stres biotik dan abiotik, terutama dalam respons imun. Pada Nicotiana benthamiana, protein DnaJ Nb-MIP1 berfungsi sebagai cochaperone dalam respon terhadap patogen virus (Du et al., 2013). Kedelai (Glycine max L.) Gm-heat shock protein 40 (HSP40.1), protein DnaJ yang terlokalisasi pada inti, merupakan pengatur positif resistensi terhadap virus mosaik kedelai (Liu dan Whitham, 2013). Pada tomat (Solanum lycopersicum), protein DnaJ yang terlokalisasi kloroplas, Le-CDJ2, dilaporkan meningkatkan resistensi terhadap bakteri patogen, Pseudomonas solanacearum (Wang et al., 2014). Selain itu, protein1 yang berinteraksi dengan Tsi1- (Tsip1), protein DnaJ tembakau (Nicotiana tabacum), dilaporkan mengatur aktivasi transkripsional yang dimediasi Tsi1-sebagai respons terhadap stres (Ham et al., 2006). Hasil ini menunjukkan dengan jelas bahwa protein DnaJ memainkan peran penting dalam kekebalan tanaman, meskipun mekanisme yang mendasarinya memerlukan penyelidikan lebih lanjut. Dalam penelitian ini, kami mengisolasi Arabidopsis thaliana EDS1 INTERACTING J PROTEIN 1 (EIJ1), sebuah protein DnaJ yang mirip HSP, dan menunjukkan bahwa EIJ1 berinteraksi dengan EDS1 di planta. Tanaman mutan eij1 yang kehilangan fungsi menunjukkan pertumbuhan normal, resistensi patogen yang lebih kuat, dan ekspresi gen terkait resistensi yang lebih tinggi setelah terinfeksi patogen dibandingkan dengan tanaman tipe liar. Namun, hilangnya fungsi mutasi EIJ1 tidak menyelamatkan fenotip rentan dari mutan eds1 saat ditantang dengan Pst DC3000. Selain itu, protein EIJ1, yang biasanya terletak di kloroplas, dilepaskan dari kloroplas ke sitoplasma setelah inokulasi patogen, di mana ia berinteraksi dengan EDS1, sehingga mencegah penyelundupan yang dipicu patogen ke nukleus dan akibatnya mengganggu respon resistensi pada tahap awal. tahap infeksi. Temuan ini menjelaskan rincian penting dari mekanisme pengaturan yang mendasari pola distribusi nukleositoplasma EDS1 dan memberikan target yang berpotensi efektif untuk pemuliaan tanaman yang tahan penyakit.

manfaat cistanche-memperkuat sistem kekebalan tubuh
Hasil
EIJ1 berinteraksi dengan EDS1 in vitro dan in vivo
Sebagai komponen penting dalam respons pertahanan tanaman, EDS1 terletak di simpul kunci jaringan sinyal imunitas bawaan tanaman. Untuk mengidentifikasi mitra protein EDS1 yang berpotensi berinteraksi, kami melakukan skrining dua-hibrida ragi. EDS1 menunjukkan interaksi yang kuat dengan protein pendamping seperti Arabidopsis HSP40- (AT2G24860) dengan fungsi yang tidak diketahui (Gambar 1, A dan B), milik superfamili DnaJ (Gambar Tambahan 1A); protein ini selanjutnya disebut sebagai EIJ1. Analisis sekuens menunjukkan bahwa EIJ1 mengandung 144 residu asam amino, termasuk empat motif jari Zn yang kaya Cys (CXXCXGXG; Gambar Tambahan 1A). Meskipun spesies angiospermae lain memiliki homolog EIJ1, homolog terdekat tampaknya terbatas pada Brassicaceae (Gambar Tambahan 1B dan File S1). Khususnya, EIJ1 menunjukkan kesamaan urutan dengan protein N. tabacum Tsip1, yang terlibat dalam resistensi patogen (Gambar Tambahan 1B; Ham et al., 2006). Untuk mengidentifikasi domain fungsional yang bertanggung jawab atas interaksi antara EDS1 dan EIJ1, dua versi terpotong dari protein ini digunakan dalam pengujian dua-hibrida ragi (Gambar 1A; Gambar Tambahan 1A). Terminal N dari EIJ1 menunjukkan interaksi yang kuat dengan terminal EDS1 full-length serta terminal EDS1 N tetapi interaksi yang lemah dengan terminal EDS1 C (Gambar 1B). Hal ini menunjukkan bahwa ujung N EDS1, yang mengandung domain mirip lipase, dan ujung N EIJ1 diperlukan dan cukup untuk interaksinya. Meskipun terminal C EIJ1 berisi domain jari Zn kaya Cys yang dilestarikan yang dapat memfasilitasi pengikatannya dengan DNA atau protein lain, hal ini tidak berkontribusi pada interaksi dengan EDS1. Uji pull-down lebih lanjut memverifikasi interaksi antara EDS1 dan EIJ1 secara in vitro (Gambar 1C), sedangkan uji ko-imunopresipitasi (Co-IP) menggunakan 35Spro: EIJ1- 6HA 35Spro: EDS1-3FLAG tanaman transgenik mengkonfirmasi interaksi mereka di planta (Gambar 1D). Secara keseluruhan, hasil ini menunjukkan bahwa EDS1 berinteraksi dengan EIJ1 baik in vitro dan in vivo. Karakterisasi EIJ1 Untuk menentukan lokalisasi subseluler EIJ1, kami menggabungkan kerangka pembacaan terbuka EIJ1 dengan gen reporter mCherry di bawah kendali promotor virus mosaik kembang kol 35S untuk menghasilkan konstruksi 35Spro: EIJ1-mCherry. Konstruk ini diubah secara sementara menjadi daun N. benthamiana melalui agroinfiltrasi. Mikroskopi fluoresensi menunjukkan bahwa EIJ1-mCherry terlokalisasi pada kloroplas dan nukleus (Gambar 2A). Pola lokalisasi ini dikonfirmasi oleh analisis imunoblot tanaman transgenik 35Spro: EIJ1-6HA (Gambar Tambahan 2). Untuk menyelidiki pola ekspresi EIJ1, urutan genom EIJ1 digabungkan dengan gen reporter ß-glucuronidase (GUS) untuk menghasilkan garis Arabidopsis transgenik EIJ1pro: EIJ1-GUS. Aktivitas GUS yang kuat terdeteksi pada daun dan akar roset; namun, aktivitas GUS lemah pada siliques dan tidak terdeteksi pada batang dan bunga (Gambar 2B). Hasil ini konsisten dengan hasil ekspresi EIJ1, yang diperiksa dengan transkripsi balik kuantitatif-PCR (RT-PCR) di berbagai jaringan (Gambar 2C). Mengingat bahwa EDS1 adalah pengatur utama imunitas tanaman (Saikat et al., 2011), kami menyelidiki apakah EIJ1, yang diduga merupakan kofaktor EDS1, juga terlibat dalam respons terhadap infeksi patogen. Tingkat transkrip EIJ1 diinduksi oleh pengobatan dengan bakteri hemibiotrofik Pst DC3000 atau SA (Gambar 2D). Pewarnaan GUS mengungkapkan bahwa EIJ1 diinduksi dan secara nyata terkonsentrasi di sekitar trikoma pada daun yang diinokulasi Pst DC3000-(Gambar 2E–G), menyiratkan kemungkinan relevansi biologis EIJ1 dalam respons pertahanan (Xin dan He, 2013). Selanjutnya, kami memeriksa tingkat EIJ1 di pabrik 35Spro: EIJ1-HA yang diberi Pst DC3000 atau SA. Menariknya, setelah pengobatan Pst DC3000 atau SA, EIJ1 secara bertahap terdegradasi setelah induksi cepat (Gambar 2, H dan I). Hasil ini tidak konsisten dengan pola ekspresi stabil EIJ1-HA yang diamati pada tanaman 35Spro: EIJ1-HA selama infeksi patogen (Gambar Tambahan 3), yang menunjukkan regulasi EIJ1 pascatranskripsi. Bersama-sama, hasil ini menunjukkan bahwa EIJ1 terlibat dalam respon imun tanaman.

manfaat cistanche untuk pria-memperkuat sistem kekebalan tubuh
Mutasi EIJ1 yang kehilangan fungsi meningkatkan resistensi terhadap Pst DC3000 melalui jalur SA
Untuk menyelidiki peran EIJ1 dalam kekebalan tanaman, kami mengidentifikasi mutan Arabidopsis (SALK_142975) yang mengandung penyisipan T-DNA pada ekson ketiga EIJ1 (Gambar 3, A dan B). Analisis kuantitatif RT-PCR menunjukkan bahwa EIJ1 diekspresikan dengan buruk pada mutan penyisipan T-DNA eij1 ini; oleh karena itu, kami menamai alel EIJ1 ini eij{{10}} (Gambar 3C). Selanjutnya, kami mengevaluasi fenotipe ketahanan terhadap penyakit tanaman mutan berumur 3-eij1-1 berumur seminggu dan tanaman ekotipe Arabidopsis (A. thaliana) Columbia (Col-0; tipe liar) melalui inokulasi dengan Pst DC3000. Penilaian terhadap daun yang terinfeksi pada 5 hari pasca inokulasi (dpi) menunjukkan lebih sedikit lesi nekrotik pada daun eij1-1 dibandingkan pada daun Col-0 (Gambar 3D). Secara konsisten, daun eij1-1 menunjukkan titer bakteri yang jauh lebih rendah dibandingkan daun Col-0 pada 5 dpi, meskipun titer bakteri tidak menunjukkan perbedaan antara daun Col-0 dan eij1-1 pada 0 dpi (Gambar 3E). Selanjutnya, kami membuat garis komplementasi eij1-1 EIJ1pro: EIJ1-6HA dengan mentransformasikan fragmen genom EIJ1 yang digabungkan dengan rangkaian tag 6xHA ke dalam latar belakang eij1-1. Garis komplementasi sepenuhnya menyelamatkan fenotip resistensi patogen eij1-1 (Gambar 3E), mendukung bahwa eij1-1 adalah mutan yang kehilangan fungsi. Untuk menentukan efek EIJ1 pada imunitas apoplastik, fenotip resistensi penyakit dari garis komplementasi ini juga dievaluasi dengan infiltrasi tekanan Pst DC3000, dan hasil serupa diperoleh (Gambar Tambahan 4A). Untuk mengkonfirmasi fungsi EIJ1, kami kemudian mengidentifikasi eij mutan Arabidopsis lainnya1-2 (WiscDsLox343G09), yang berisi penyisipan T-DNA di wilayah promotor EIJ1 (Gambar Tambahan 5, A dan B). Transkrip EIJ1 hampir tidak terdeteksi pada mutan eij1-2, yang menunjukkan bahwa eij1-2 adalah alel nol dari EIJ1. Mirip dengan eij1-1, uji pertumbuhan bakteri menunjukkan bahwa eij1-2 terdapat pada titer bakteri yang jauh lebih rendah dibandingkan Col-0 (Gambar Tambahan 5, D dan E). Singkatnya, hasil ini menunjukkan bahwa EIJ1 memainkan peran represif yang penting dalam respon imun tanaman.
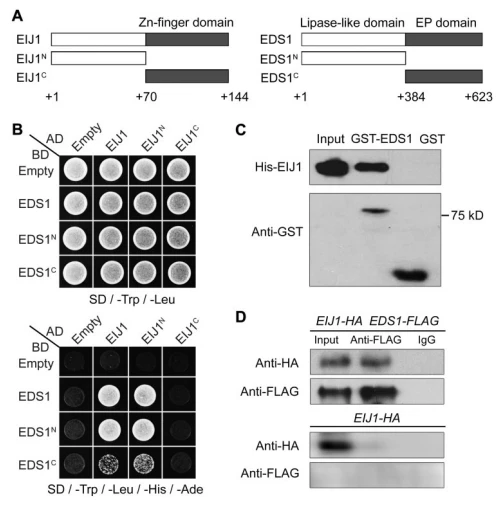
Gambar 1 EIJ1 berinteraksi dengan EDS1 in vitro dan in planta. (A) Diagram skematik menunjukkan domain yang ditemukan di EIJ1, EDS1, dan versi terpotongnya. (B) Uji dua-hibrida ragi menunjukkan interaksi antara EIJ1, EDS1, dan versi terpotongnya. Sel ragi yang telah ditransformasi ditumbuhkan pada media SD/-Trp/-Leu/-His/-Ade dan SD/-Trp/-Leu. Kontrol kosong dan hanya vektor; IKLAN, domain aktivasi; BD, domain pengikatan DNA. (C) Uji pull-down menunjukkan interaksi langsung antara protein fusi His-EIJ1 dan GST-EDS1 in vitro. Protein-EIJ1-nya diinkubasi dengan protein GST atau GST-EDS1 yang diimobilisasi. Fraksi imunopresipitasi masing-masing dideteksi oleh antibodi anti-His dan anti-GST. (D) Co-IP menunjukkan interaksi EIJ1 dan EDS1 pada daun Arabidopsis. Total protein yang diekstraksi dari 3-35Spro: EIJ1-6HA (sebagai kontrol genotipe) berumur seminggu dan 35Spro: EIJ1-6HA 35Spro: EDS1-3Daun FLAG diimunisasi dengan cara baik antibodi anti-FLAG atau serum preimun (IgG). Protein coimmunoprecipitated dideteksi menggunakan antibodi anti-FLAG dan anti-HA. Hasil representatif yang disajikan dalam (B – D) diulang secara independen sebanyak tiga kali.
Produksi hidrogen peroksida (H2O2), sejenis spesies oksigen reaktif, merupakan ciri keberhasilan pengenalan patogen dan aktivasi respons pertahanan tanaman selanjutnya, termasuk kematian sel terprogram terkait HR (Lam et al., 2001; Torres et al., 2006; Nanda dkk., 2010). Oleh karena itu, kami memantau tingkat H2O2 pada 3-Col-0 yang diinokulasi patogen berumur seminggu, eij1-1, dan eij1-1 EIJ1pro: EIJ1-6HA tanaman menggunakan metode pewarnaan 3,3-diaminobenzidine (DAB). Hasilnya menunjukkan bahwa H2O2 terakumulasi dalam jumlah tinggi pada tanaman yang terinfeksi tetapi tidak terdeteksi pada tanaman yang tidak diinokulasi (tiruan) (Gambar 3F). Tingkat H2O2 yang lebih tinggi terdeteksi pada daun eij1-1 dibandingkan pada daun Col- 0 dan garis komplementasi yang diinokulasi dengan Pst DC3000 (Gambar 3F). Lebih lanjut, meskipun pewarnaan tripan-biru mengungkapkan bahwa kematian sel (microHR, Alvarez et al., 1998) terjadi pada daun eij1-1 pada 24-jam pasca inokulasi (HPI) dengan Pst DC3000, namun tidak ada microHR diamati pada tanaman Col-0 dan eij1-1 EIJpro1:EIJ1-6HA (Gambar 3G). Inokulasi dengan Pst DC3000 (AvrRps4) yang avirulen menghasilkan akumulasi H2O2 yang lebih tinggi dan microHR yang lebih banyak, meskipun tidak ada perbedaan nyata yang teramati di antara ketiga genotipe ini (Gambar 3, F, dan G). Hasil ini menyiratkan peran penting EIJ1 dalam resistensi basal terhadap patogen.
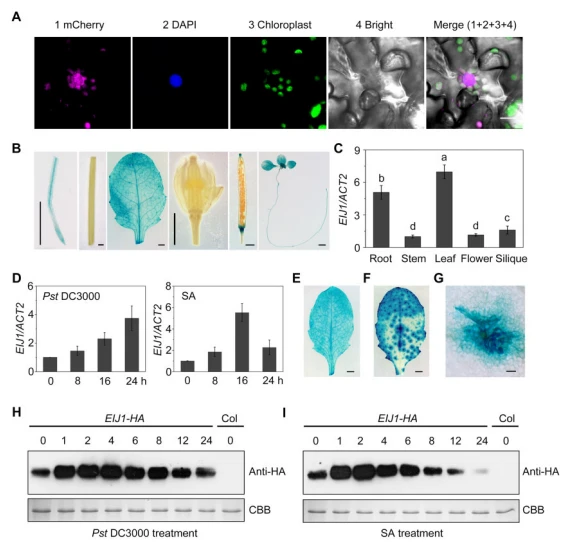
Gambar 2 Pola ekspresi mRNA dan protein EIJ1. (A) Lokalisasi kloroplas dan nukleus EIJ1. Protein fusi EIJ1-mCherry diekspresikan secara sementara dalam daun N. benthamiana dan dianalisis dengan mikroskop confocal. Fluoresensi DAPI menunjukkan nukleus. Fluoresensi klorofil diindikasikan sebagai warna hijau. Batang=10 lm. (B) Pewarnaan GUS menunjukkan ekspresi EIJ1 pada akar, batang, daun roset, bunga, siliques, dan bibit berumur 10-hari (dari kiri ke kanan). Batang=1 mm. (C) Pola ekspresi EIJ1 di berbagai jaringan tanaman Col termasuk akar, batang, daun roset, bunga, dan siliques, yang dideteksi dengan qRT-PCR. Ekspresi relatif dihitung dengan menormalkan tingkat transkripsi gen yang diperiksa terhadap ACTIN2 (sama seperti di bawah). Datanya adalah rata-rata ± SD dari tiga ulangan biologis. Huruf kecil menunjukkan perbedaan yang signifikan (ANOVA satu arah, P 5 0.01; Kumpulan Data Tambahan 1). (D) Analisis ekspresi EIJ1 menggunakan tanaman Col berumur 3-minggu yang diinokulasi dengan Pst DC3000 (OD600=0.1) atau disemprot dengan 0,05 mM SA. Datanya adalah rata-rata ± SD dari tiga ulangan biologis (Kumpulan Data Tambahan 1). Pewarnaan (E – G) GUS menunjukkan induksi ekspresi EIJ1 oleh patogen. Tanaman pEIJ1:EIJ1-GUS berumur tiga minggu diinokulasi tiruan (10 mM MgCl2; E) atau diinokulasi dengan Pst DC3000 (OD600=0.1; F). Batang=1 mm. Gambar yang diperbesar menunjukkan bahwa EIJ1-GUS terkonsentrasi di wilayah trikoma di (G). Batang=100 lm. Daun dengan kecepatan 4 hpi dipanen dan diinkubasi dengan larutan pewarnaan GUS. (H) dan (I) Pola ekspresi EIJ1 setelah pengobatan Pst DC3000 atau SA. Total protein diekstraksi dari tanaman 35Spro: EIJ1-6HA berumur 3-minggu yang diinokulasi dengan Pst DC3000 (OD600=0.1; H) atau disemprot dengan 0,05 mM SA (I), dan dideteksi menggunakan antibodi anti-HA. Panel bawah menunjukkan pewarnaan dengan Coomassie Brilliant Blue (CBB) sebagai kontrol pemuatan. Analisis imunoblot yang disajikan pada (H) dan (I) diulangi secara independen sebanyak tiga kali.
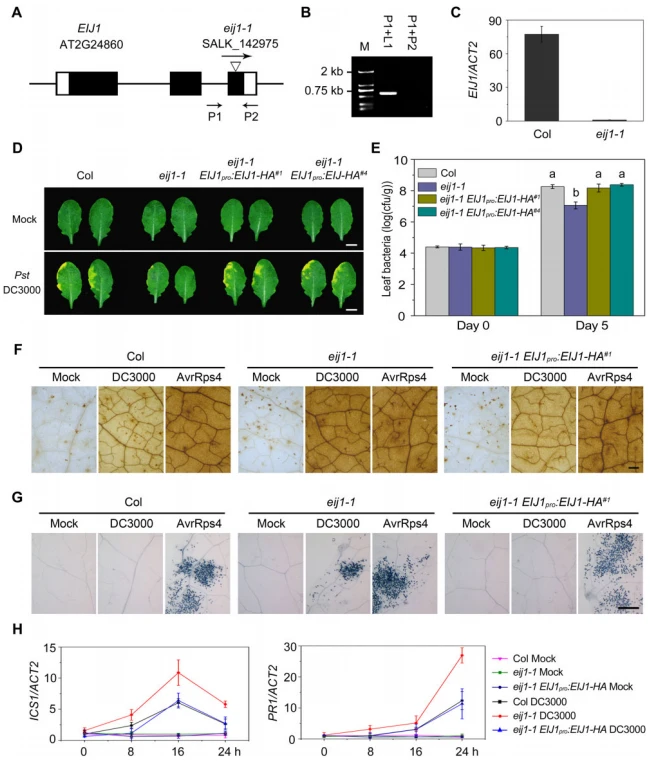
Gambar 3 Identifikasi alel mutasi Arabidopsis EIJ1 eij1-1. (A) Diagram skematik menunjukkan situs penyisipan T-DNA di eij1-1 (SALK_142975). Ekson diwakili oleh kotak dan intron oleh garis di antara kotak. Kotak hitam menunjukkan wilayah pengkodean EIJ1, dan kotak putih mewakili wilayah yang belum diterjemahkan. Segitiga menunjukkan tempat penyisipan T-DNA. (B) Amplifikasi DNA genom PCR menegaskan bahwa eij1-1 adalah mutan penyisipan homozigot. Primer yang digunakan (P1, P2) ditunjukkan pada (A). LB menunjukkan primer batas kiri T-DNA dan M menunjukkan penanda molekuler DNA. (C) analisis qRT-PCR ekspresi EIJ1. Total RNA diekstraksi dari daun eij1 dan Col berumur 3-minggu. Ekspresi relatif EIJ1 dalam eij1-1 ditetapkan ke 1. Data adalah rata-rata ± SD dari tiga ulangan biologis (Kumpulan Data Tambahan 1). (D) Fenotip resistensi penyakit dari Col, eij1-1, dan dua garis transgenik komplementasi EIJ1 yang mewakili eij1 EIJ1pro: EIJ1-6HA. Tanaman berumur tiga minggu diinokulasi dengan Pst DC3000 (OD600=0.05). Daun yang ditampilkan difoto pada 5 dpi. Batangan=5 mm. (E) Pertumbuhan bakteri Pst DC3000 pada tanaman dijelaskan pada (D) pada 0 dan 5 dpi. cfu/g, satuan pembentuk koloni per g berat segar. Datanya adalah rata-rata ± SD dari tiga ulangan biologis. Huruf kecil menunjukkan perbedaan yang signifikan (ANOVA satu arah, P 5 0.01, Kumpulan Data Tambahan 1). (F) Pemeriksaan kadar H2O2 pada daun Kol,
EIJ1 memediasi imunitas tanaman dengan menekan aktivitas EDS1
Untuk memahami hubungan genetik antara EDS1 dan EIJ1, kami menghasilkan garis mutan ganda eij1-1 eds1-22 dengan menyilangkan mutan eij1-1 dengan eds1-22, hilangnya- fungsi alel mutan dari EDS1-90 (AT3G48090; latar belakang Col-0), yang menunjukkan gangguan resistensi patogen (Yang dan Hua, 2004). Tidak ada perbedaan morfologi yang diamati antara tanaman mutan eij1-1, eds1-22, dan eij1-1 eds1-22 dalam kondisi pertumbuhan normal (Gambar 4, A dan B). Setelah inokulasi dengan Pst DC3000, tanaman mutan eij1-1 menunjukkan ketahanan yang lebih kuat dibandingkan tanaman Col-0 pada 5 dpi (Gambar 4, A dan B). Namun, mutan ganda eij1-1 eds1-22 menunjukkan lesi nekrotik yang luar biasa dan titer bakteri yang tinggi, sebanding dengan mutan tunggal eds1-22, yang menunjukkan bahwa alel eij1-1 tidak mampu untuk menyelamatkan fenotip eds yang rentan terhadap penyakit1-22 (Gambar 4, A dan B). Resistensi penyakit juga dievaluasi setelah infiltrasi tekanan Pst DC3000, dan hasil serupa diperoleh (Gambar Tambahan 4B). Selanjutnya, kami menggunakan alel null EDS1, eds1-2; Kol-0 latar belakang; Bartsch et al., 2006), untuk menghasilkan tanaman mutan ganda eij1-1 eds1-2 untuk analisis genetik. Mirip dengan eij1-1 eds1-22, tanaman mutan ganda eij1-1 eds1-2 juga menunjukkan lesi nekrotik yang luar biasa dan titer bakteri yang lebih tinggi daripada eij1-1, yaitu sebanding dengan mutan tunggal eds1-2 (Gambar Tambahan 6). Bukti genetik ini menunjukkan bahwa EDS1 bersifat epistatik terhadap EIJ1. Konsisten dengan pengamatan di atas, H2O2 terakumulasi pada tingkat tinggi pada daun eij1-1 tetapi pada tingkat rendah pada daun eds1- 22 dan eij1-1 eds1-22, dibandingkan dengan Col{{ 53}} daun, setelah inokulasi Pst DC3000 (Gambar 4C). Selain itu, microHR di eij1-1 jelas ditekan oleh hilangnya fungsi EDS1 pada 24 hpi dengan Pst DC3000 atau Pst DC3000 avirulen (AvrRps4; Gambar 4D). Konsisten dengan hasil ini, tingkat ekspresi ICS1 dan PR1 di tanaman eij1-1 eds1-22 dan eds1-22 sebanding tetapi jauh lebih rendah dibandingkan di tanaman eij1-1 dan Col{ {71}} tanaman (Gambar 4E). Hasil ini mendukung bahwa respons imun bawaan yang dimediasi EIJ1-bergantung pada EDS1. Untuk menyelidiki peran interaksi EIJ1-EDS1 dalam respon imun tanaman, kami melakukan analisis RNA-seq daun eij1-1, eds1-22, dan Col-0 pada 24 hpi dengan Pst DC3000 ; dengan daun Col-0 yang tidak diinokulasi digunakan sebagai pengobatan tiruan. Sebanyak 2762, 923, dan 622 gen yang diekspresikan secara berbeda (DEG) diidentifikasi dalam Col_Pst DC3000 versus Col_mock, eij1-1_Pst DC3000 versus Col_ Pst DC3000, dan perbandingan eds1-22_Pst DC3000 versus Col_Pst DC3000. Gen-gen ini selanjutnya disebut sebagai gen yang responsif terhadap patogen, teregulasi EIJ, dan teregulasi EDS (Gambar Tambahan 7A dan Kumpulan Data 2). Di antara gen-gen ini, 471 diatur oleh EIJ1; 396 diatur oleh EDS1 (Gambar 4F; Kumpulan Data Tambahan 2); dan 124 diatur bersama oleh EIJ1 dan EDS1 (Gambar 4F). Analisis cluster menunjukkan bahwa 93,5% (116) dari gen yang terkoregulasi (124) diregulasi ke atas oleh EDS1 dan diregulasi ke bawah oleh EIJ1 (Gambar 4F; Gambar Tambahan 7B dan Kumpulan Data 2), mendukung peran represif EIJ1 pada fungsi EDS1. Analisis ontologi gen (GO) lebih lanjut mengungkapkan bahwa sebagian besar gen yang diatur secara antagonis oleh EIJ1 dan EDS1 terutama terlibat dalam respons stres dan respons imun bawaan (Gambar 4G; Tabel Tambahan S1). Analisis ini menunjukkan bahwa EIJ1 dan EDS1 mengatur gen terkait resistensi dengan cara yang berbeda selama infeksi patogen. Sebagian besar gen yang diatur EDS1-(272/396) tidak diatur oleh EIJ1, mungkin karena perubahan lipatan bawah (52) atau fungsi independen EIJ1-dari EDS1.

cistanche tubulosa-meningkatkan sistem kekebalan tubuh
Klik di sini untuk melihat produk Cistanche Meningkatkan Imunitas
【Minta lebih lanjut】 Email:cindy.xue@wecistanche.com / Aplikasi WhatsApp: 0086 18599088692 / Wechat: 18599088692
EIJ1 berinteraksi dengan EDS1 di sitoplasma dan menghambat perdagangan nuklir EDS1
EIJ1 terlokalisasi pada kloroplas dan inti sel daun (Gambar 2A), sedangkan protein EDS1 menunjukkan pola distribusi nukleositoplasma, terjadi di kedua tempat (Garcı´a et al., 2010). Untuk menyelidiki di mana dan bagaimana EIJ1 berinteraksi dengan EDS1 di planta, kami melakukan uji ekspresi sementara menggunakan protoplas Arabidopsis. Menariknya, meskipun EIJ1 mempertahankan pola lokalisasi subseluler aslinya dalam kloroplas dan nukleus dengan adanya protein fluoresen hijau (GFP; kontrol), EIJ1-mCherry yang terlokalisasi kloroplas tersebar di sitoplasma ketika diekspresikan bersama dengan EDS{ {9}}GFP dalam protoplas (Gambar 5A, lihat replika di File Tambahan 2). Fenomena ini dikonfirmasi dalam sel epidermis N. benthamiana, di mana EIJ1-mCherry secara sementara diekspresikan bersama dengan EDS1-GFP atau kontrol GFP (Gambar Tambahan 8, lihat replika di File Tambahan 2) . Pengamatan ini menunjukkan bahwa ekspresi berlebih EDS1 dapat menyebabkan relokasi subseluler EIJ1. Selanjutnya, untuk menentukan lokasi subseluler di mana EDS1 dan EIJ1 berinteraksi, kami melakukan uji pull-down menggunakan protein fusi (umpan) Glutathione S-Transferase (GST)-EDS1 rekombinan dan ekstrak protein total, fraksi yang kehabisan inti, dan inti- fraksi yang diperkaya dari 35Spro: garis transgenik EIJ1-HA (protein mangsa). Hasil kami menunjukkan bahwa EDS1 diimunisasi dengan EIJ1-HA ketika menggunakan ekstrak protein total dan fraksi 35Spro yang kekurangan inti: EIJ1-HA keluar, tetapi tidak terjadi ketika menggunakan fraksi yang diperkaya inti (Gambar 5B), menunjukkan bahwa interaksi antara EIJ1 dan EDS1 terjadi di sitoplasma.
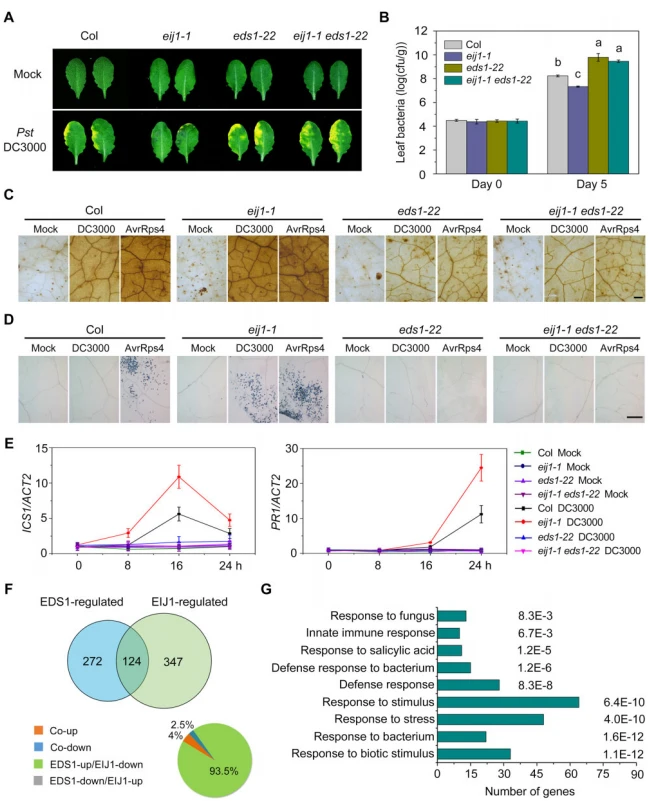
Gambar 4 EIJ1 dan EDS1 mengatur ketahanan tanaman terhadap patogen secara berlawanan. (A) Fenotip ketahanan terhadap penyakit Col, eij1-1, eds1-22, dan eij1-1 eds1-22. Tanaman berumur tiga minggu diinokulasi dengan Pst DC3000 (OD600=0.05). Daun yang ditampilkan difoto pada 5 dpi. Batang=5 mm. (B) Pertumbuhan bakteri Pst DC3000 pada tanaman dijelaskan pada (A) pada 0 dan 5 dpi. Datanya adalah rata-rata ± SD dari tiga ulangan biologis. Huruf kecil menunjukkan perbedaan yang signifikan (ANOVA satu arah, P 5 0.01, Kumpulan Data Tambahan 1). (C) Pemeriksaan kadar H2O2 pada tanaman Col, eij1-1, eds1-22, dan eij1-1 eds1-22. Tanaman berumur tiga minggu diinokulasi dengan Pst DC3000 atau Pst DC3000 (AvrRps4; OD600=0.1), dan kemudian diwarnai dengan DAB pada 24 hpi. Batang=500 lm. (D) Analisis kematian sel tanaman Col, eij1-1, eds1-22, dan eij1-1 eds1-22. Tanaman berumur tiga minggu dipinokulasi dengan Pst DC3000 atau Pst DC3000 (AvrRps4; OD600=0.1), dan kemudian diwarnai dengan trypan blue pada 24 hpi. Batang=500 lm.
Mengingat bahwa EIJ1 secara negatif mengatur respon imun tanaman dengan cara yang bergantung pada EDS (Gambar 4), kami selanjutnya menguji efek patogen pada interaksi antara EIJ1 dan EDS1. Yang mengejutkan, infeksi Pst DC3000 meningkatkan interaksi EDS1-EIJ1 di sitoplasma dibandingkan di kloroplas dan nukleus (Gambar 5C, lihat replikasi di File Tambahan 2). Temuan ini, bersama dengan pola distribusi nukleositoplasma EDS1 dan peran lokalisasi nuklir EDS1 dalam penguatan resistensi patogen pada tingkat transkripsi (Garcı´a et al., 2010), memaksa kami untuk menyelidiki peran EIJ1 dalam perdagangan subseluler EDS1 selama infeksi patogen. Saat kami mengekspresikan EDS1-3FLAG secara sementara pada protoplas Arabidopsis yang diisolasi dari tanaman eij1-1, ekspresi berlebih EIJ1, dan Col-0, EIJ1 secara khusus menekan perdagangan EDS1 ke dalam nukleus (Gambar Tambahan 9) . Lebih lanjut, analisis imunoblot menunjukkan sedikit perbedaan dalam kelimpahan total protein EDS1 antara eds1-22 EDS1pro: EDS1-3FLAG dan eij1-1 eds1-22 EDS1pro: EDS{{30} }Tanaman transgenik FLAG (Gambar 5D, lihat replika pada File Tambahan 2). Namun, dibandingkan dengan tanaman transgenik eds1-22 EDS1pro: EDS1-3FLAG, tanaman transgenik Pst DC3000- yang diinokulasi eij1-1 eds1-22 EDS1pro: EDS13FLAG menunjukkan peningkatan yang nyata pada tingkat protein EDS1 yang diperkaya inti dan penurunan tingkat EDS1 yang terlokalisasi di sitoplasma (Gambar 5D, lihat replikasi di File Tambahan 2), membenarkan peran represif EIJ1 dalam perdagangan EDS1 dari sitoplasma ke nukleus. Selanjutnya, kami menguji apakah proses redistribusi yang dimediasi oleh interaksi EIJ1-EDS1 mempengaruhi regulasi transkripsional gen terkait resistensi pada tanaman. Konstruksi efektor 35Spro: EIJ1-mCherry dan 35Spro: EDS1-3FLAG ditransformasikan secara individual atau bersama-sama dengan konstruksi reporter menjadi sel epidermis daun N. benthamiana (Gambar 5E). Pada 24 hpi dengan Pst DC3000, EDS1 mengaktifkan ekspresi PR1 dan ICS1 (Gambar 5F), sementara EIJ1 secara nyata menghambat ekspresi gen yang diinduksi EDS1-(Gambar 5F). Berbeda dengan EIJ1 full-length, ujung N-terminal dari protein EIJ1, yang tidak terpengaruh pada eij1-1, tidak mampu menghambat ekspresi PR1 yang diinduksi EDS1- (Gambar Tambahan 10, A dan B ), menunjukkan bahwa struktur protein EIJ1 yang utuh diperlukan untuk fungsi represifnya. Secara keseluruhan, hasil ini mendukung bahwa EIJ1 berfungsi sebagai penekan penting dalam respons resistensi yang dimediasi EDS1-dengan mengatur perdagangan nukleositoplasma EDS1. Karena protein EIJ1 secara bertahap terdegradasi di tanaman yang diinokulasi Pst DC3000-atau yang diberi perlakuan SA setelah induksi awal yang cepat (Gambar 2, H dan I), kami menyelidiki apakah EDS1, pada gilirannya, memicu degradasi EIJ1 melalui interaksi protein-protein. Uji degradasi bebas sel dan uji deteksi protein in vivo menggunakan tanaman transgenik eds1-22 35Spro: EIJ1-HA menunjukkan bahwa baik ketiadaan maupun keberadaan EDS1 tidak memengaruhi degradasi EIJ1 (Gambar Tambahan 11), yang menunjukkan bahwa EDS1 tidak terlibat dalam patogen yang memicu degradasi EIJ1.

Manfaat cistanche tubulosa-memperkuat sistem kekebalan tubuh
Infeksi patogen mengubah lokalisasi subseluler EIJ1
Peningkatan interaksi antara EIJ1 dan EDS1 dalam sitoplasma setelah inokulasi patogen (Gambar 5, B, dan C) menyiratkan kemungkinan relokasi EIJ1 yang dipicu oleh patogen dalam sel tanaman. Untuk menguji kemungkinan ini, kami memeriksa lokalisasi subseluler EIJ1 pada daun N. benthamiana yang diinokulasi dengan Pst DC3000. Dalam kondisi tidak terinfeksi, EIJ1-mCherry terlokalisasi pada kloroplas dan nukleus. Namun, pada 24 dpi, sinyal fluoresensi sangat menurun di kloroplas dan ditingkatkan di sitoplasma (Gambar 6A). Untuk menentukan lebih lanjut apakah patogen memicu disosiasi EIJ1 dari kloroplas ke sitoplasma daun, analisis imunoblot protein EIJ1 dilakukan menggunakan tanaman transgenik 35Spro: EIJ1-6HA. Total protein, protein kloroplas, dan protein sitoplasma diisolasi dari tanaman transgenik 35Spro: EIJ1-6HA pada 0 dan 4 hpi dengan Pst DC3000. Kelimpahan EIJ1 sangat meningkat pada fraksi sitoplasma tetapi menurun pada fraksi kloroplas pada 24 dpi (Gambar 6B, lihat replikasi pada File Tambahan 2), menunjukkan korelasi negatif antara kadar protein EIJ1 dalam kloroplas dan sitoplasma.

Gambar 5 EIJ1 Berinteraksi dengan EDS1 di sitoplasma untuk memediasi perdagangan nuklir EDS1. (A) Analisis ekspresi sementara menunjukkan lokalisasi EDS1 dan EIJ1 pada protoplas Arabidopsis. Batang=10 lm. (B) Uji tarik ke bawah interaksi antara EIJ1 dan EDS1. Total protein, fraksi yang kekurangan inti, dan fraksi yang diperkaya inti diekstraksi dari tanaman transgenik HA yang berusia 3-berumur seminggu1-1 35Spro: EIJ1-6HA diinkubasi dengan protein GST-EDS1 atau GST yang diimobilisasi , masing-masing. IP dideteksi menggunakan antibodi anti-HA atau anti-GST. PEPC dan histone H3 masing-masing digunakan sebagai penanda sitoplasma dan nuklir. Tanda bintang menunjukkan pita protein GST-EDS1. (C) Infeksi Pst DC3000 meningkatkan interaksi protein EDS1 dan EIJ1 dalam sitoplasma. Total protein, fraksi yang kekurangan inti, fraksi yang diperkaya inti, dan protein kloroplas diekstraksi dari tanaman EIJ1pro berumur 3-minggu: EIJ1-6HA 35Spro: EDS1-3tanaman BENDERA yang diinokulasi dengan celup Pst DC3000 (OD600=0.1) atau diinokulasi tiruan pada 4 hpi, dan di imunopresipitasi menggunakan antibodi anti-FLAG atau serum praimun (IgG). Protein ko-imunopresipitasi dideteksi menggunakan antibodi anti-HA dan anti-FLAG. Fraksi yang kehabisan N dan inti yang habis; Fraksi yang diperkaya N dan diperkaya inti. PEPC dan histone H3 masing-masing digunakan sebagai penanda sitoplasma dan nuklir. (D) Analisis Immunoblot menunjukkan bahwa EIJ1 memediasi distribusi sitoplasma versus nuklir EDS1. Total protein, fraksi yang kekurangan inti, dan fraksi yang diperkaya inti diekstraksi dari 3-eds berumur seminggu1-22 EDS1pro: EDS1- 3FLAG dan eij1-1 eds{{59 }} EDS1pro: EDS1-3Tanaman transgenik FLAG diinokulasi dengan Pst DC3000 (OD600=0.1) atau diinokulasi tiruan pada 4 hpi, dan dideteksi menggunakan antibodi anti-FLAG. Intensitas relatif protein dari eds1-22 EDS1pro: EDS1-3FLAG dengan perlakuan inokulasi tiruan ditetapkan ke 1. M, tiruan; P, Pst DC3000. PEPC dan histone H3 masing-masing digunakan sebagai penanda sitoplasma dan nuklir. Hasil yang disajikan pada (A), (C), dan (D) diulang secara independen tiga kali (File Tambahan 2). (E) dan (F) Analisis sementara aktivitas promotor PR1 dan ICS1 diatur oleh EIJ1 dan EDS1. Berbagai konstruksi yang digunakan dalam pengujian ekspresi sementara ditunjukkan pada (E). Baik PR1pro: GUS atau ICS1pro: GUS ditransformasikan dengan efektor atau vektor kosong (Kontrol) menjadi daun N. benthamiana yang dimandikan dengan Pst DC3000 (OD600=0.1) selama 24 jam. Aktivitas relatif GUS (GUS/Luciferase) yang menunjukkan tingkat ekspresi PR1 dan ICS1 yang diatur oleh berbagai efektor ditunjukkan pada (F). Datanya adalah rata-rata ± SD dari tiga ulangan biologis (Kumpulan Data Tambahan 1). Huruf kecil menunjukkan perbedaan nyata (ANOVA satu arah, P 5 0.01).
Disosiasi EIJ1 yang dipicu patogen dari kloroplas menunjukkan adanya fungsi potensial EIJ1 dalam sitoplasma. Untuk menguji kemungkinan ini, kami mengimobilisasi protein EIJ1 ke dalam kloroplas dengan menempelkan rangkaian penargetan kloroplas (CTS; Lee et al., 2008) ke ujung N-terminal gen reporter EIJ1-mCherry. Fusi CTS-EIJ1-mCherry kemudian diekspresikan dalam daun N. benthamiana di bawah kendali promotor asli. Fluoresensi hanya terdeteksi pada kloroplas, namun tidak pada sitosol dan inti daun N. benthamiana yang diinokulasi Pst DC3000-(Tambahan Gambar 12A). Pengamatan ini mengkonfirmasi bahwa EIJ1 CTTagged dipertahankan dalam kloroplas dan tidak dipaksa masuk ke sitoplasma oleh infeksi patogen. Kami kemudian membuat lini Arabidopsis transgenik EIJ1pro: CTS-EIJ1-6HA untuk mengevaluasi fungsi biologis CTS-EIJ1 dalam respons imun tanaman. Seperti yang diharapkan, tidak seperti garis eij1-1 EIJ1pro: EIJ1-6HA, garis eij1-1 EIJ1pro: CTS-EIJ1-6HA tidak menunjukkan perbedaan yang signifikan dalam ketahanan terhadap patogen dibandingkan dengan eij1-1, menunjukkan bahwa EIJ1 yang diimobilisasi dalam kloroplas tidak mampu menyelamatkan fenotip eij1-1 yang resistan terhadap penyakit (Gambar 6C). Konsisten dengan pengamatan ini, ekspresi PR1 dipertahankan pada tingkat tinggi di tanaman transgenik eij1-1 EIJ1pro: CTSEIJ1-6HA, mirip dengan eij1-1 (Gambar Tambahan 12B). Selain itu, CTS-EIJ1 menunjukkan lebih sedikit kemampuan untuk menekan aktivitas transkripsi EDS1 dibandingkan EIJ1 (Gambar 6, D, dan E). Hasil ini mengarahkan kami pada kesimpulan bahwa respon awal inang terhadap infeksi patogen memicu relokalisasi subseluler EIJ1, yang pada gilirannya memodulasi respon imun dengan menekan perdagangan EDS1 ke dalam nukleus.
EIJ1 mengatur respons yang dipicu oleh efektor virulensi
Protein efektor AvrRps4 dari P. syringae yang disekresikan oleh sistem sekresi tipe III dikenali oleh reseptor TIR-NB-LRR RPS4 untuk memulai ETI, yang bergantung pada EDS1 (Gassmann et al., 1999; Wirthmueller et al., 2007; Heidrich dkk., 2012). Kami menginokulasi daun eij1-1 dengan Pst DC3000 (AvrRps4) yang avirulen atau Pst DC3000 yang virulen untuk menilai apakah EIJ1 terlibat dalam ETI. Daun eij1-1 menunjukkan resistensi yang lebih besar terhadap Pst DC3000 yang mematikan dibandingkan daun Col-0 (Gambar 7A). Namun, tidak ada perbedaan signifikan yang teramati antara daun Col-0 dan eij1-1 dalam hal ketahanan terhadap avirulen Pst DC3000 (AvrRps4), meskipun kedua genotipe menunjukkan ketahanan yang lebih besar terhadap avirulen Pst DC3000 (AvrRps4) dibandingkan terhadap Pst DC3000 ( Gambar 3, F dan G; Gambar7, A), menunjukkan bahwa EIJ1 mungkin tidak diperlukan untuk ETI yang diinduksi RPS{27}}. Kami juga menentukan ketahanan tanaman terhadap Pst DC3000 hrcC, yang memiliki sistem sekresi tipe III yang rusak dan gagal menyuntikkan efektor ke dalam sel inang untuk menekan PTI (Gassmann et al., 1999; Gloggnitzer et al., 2014). Baik daun eij1-1 mutan maupun Col-0 menunjukkan resistensi serupa terhadap Pst DC3000 hrcC (Gambar Tambahan 13), menunjukkan bahwa EIJ1 tidak terlibat dalam PTI.
Mengingat bahwa akumulasi nuklir EDS1 sangat diperlukan untuk pemrograman ulang ekspresi dan resistensi gen pertahanan yang diinduksi TIR-NB-LRR (Garcı´a et al., 2010), kami memeriksa apakah EIJ1 mengatur distribusi subseluler EDS1 sebagai respons terhadap ETI. Daun tanaman 3-eds berumur seminggu1-22 EDS1pro: EDS1-3FLAG dan eij1-1 eds1-22 EDS1pro: EDS1-3FLAG telah diinokulasi dengan Pst DC3000 atau Pst DC3000 (AvrRps4), dan fraksi yang kehabisan inti dan diperkaya inti diekstraksi pada 0 dan 4 hp. Konsisten dengan penelitian sebelumnya (Garcı´a et al., 2010), peningkatan lokalisasi nuklir EDS1 diamati di pabrik eds1-22 EDS1pro: EDS1-3FLAG yang diinokulasi dengan Pst DC3000 (AvrRps4), tetapi tidak pada mereka yang diinokulasi dengan Pst DC3000. Namun, hilangnya fungsi EIJ1 tidak mempengaruhi akumulasi nuklir EDS1 yang diinduksi ETI (Gambar 7B; lihat replikasi di File Tambahan 2). Hal ini menunjukkan bahwa Pst DC3000 (AvrRps4) yang avirulen memicu perdagangan EDS1 ke dalam nukleus dengan melewati EIJ1 atau menghapuskan fungsi EIJ1 dengan cara yang tidak diketahui. Untuk menguji kemungkinan ini, kami menguji pengaruh Pst DC3000 (AvrRps4) yang avirulen pada tingkat EIJ1. Mirip dengan hasil yang diperoleh dengan menggunakan garis ekspresi berlebih EIJ1 (Gambar 2H), tanaman eij1-1 EIJ1pro: EIJ1-6HA yang diinokulasi dengan Pst DC3000 menunjukkan peningkatan akumulasi EIJ1 pada tahap awal infeksi, meskipun EIJ1 secara bertahap meningkat. terdegradasi setelah 8 hpi (Gambar 7C; lihat replika di File Tambahan 2). Akumulasi EIJ1 cukup untuk mencegah perdagangan EDS1 yang dipicu oleh Pst DC3000-ke dalam nukleus pada tahap infeksi awal (Gambar 5, D, dan 7, B). Konsisten dengan hasil ini, hilangnya fungsi EIJ1 mempercepat translokasi nuklir EDS1 pada pembangkit yang terinfeksi (Gambar Tambahan 14). Sebaliknya, Pst DC3000 (AvrRps4) menghapuskan fungsi EIJ1 dengan secara cepat menginduksi degradasi protein EIJ1, namun tidak dengan menekan transkripsi gen EIJ1 (Gambar 7C; Gambar Tambahan 15), sehingga mendorong lebih banyak translokasi nuklir EDS1 pada tahap awal infeksi (Gambar 7B ). Pengamatan bahwa tanaman eij1-1 yang diinokulasi dengan Pst DC3000 menunjukkan resistensi yang sebanding dengan tanaman Col-0 dan eij1-1 yang diinokulasi dengan Pst DC3000 (AvrRps4) yang avirulen mendukung hipotesis ini. Hal ini mungkin menjelaskan, setidaknya sampai batas tertentu, mengapa strain avirulen, namun bukan strain virulen, yang dapat meningkatkan resistensi untuk memicu respons ETI. Oleh karena itu, pengamatan ini menunjukkan bahwa EIJ1 terlibat dalam respons yang dipicu oleh efektor virulensi dalam sel inang.
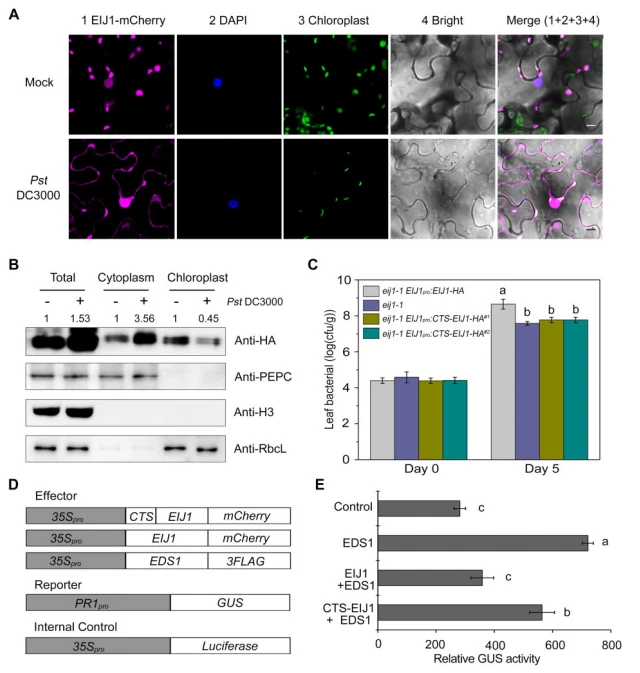
Gambar 6 Relokalisasi EIJ1 ke sitoplasma diperlukan untuk resistensi yang bergantung pada EDS1-. (A) Infeksi Pst DC3000 mengubah lokalisasi subseluler EIJ1. EIJ1-mCherry diekspresikan untuk sementara dalam daun N. benthamiana yang dimandikan dengan Pst DC3000 (OD600=0.1) atau diinokulasi tiruan selama 24 jam. Batang=10 lm. (B) Infeksi Pst DC3000 memicu disosiasi EIJ1 dari kloroplas. Total protein, protein sitoplasma, dan protein kloroplastik diekstraksi dari tanaman EIJ1pro berumur 3-minggu: tanaman EIJ1-6HA yang diinokulasi dengan Pst DC3000 (OD600=0.1) atau diinokulasi tiruan pada 4 hpi dan dideteksi oleh antibodi anti-HA. PEPC, histone H3, dan RbcL masing-masing digunakan sebagai penanda sitoplasma, nuklir, dan kloroplastik. Intensitas relatif protein dengan perlakuan tiruan diatur ke 1. Hasil yang disajikan pada (A) dan (B) diulangi secara independen tiga kali (File Tambahan 2). (C) EIJ1 yang diimobilisasi dalam kloroplas tidak mampu mengembalikan resistensi eij1-1. Tanaman berumur tiga minggu diinokulasi dengan Pst DC3000 (OD600=0.05). Titer bakteri Pst DC3000 pada 0 dan 5 dpi ditentukan. CTS, sinyal lokalisasi kloroplas. Datanya adalah rata-rata ± SD dari tiga ulangan biologis (Kumpulan Data Tambahan 1). (D) dan (E) Analisis sementara aktivitas promotor PR yang diatur oleh EIJ1, CTS-EIJ1, dan EDS1. Berbagai konstruksi yang digunakan dalam pengujian ekspresi sementara ditunjukkan pada (D). PR1pro: GUS ditransformasikan bersama dengan efektor atau vektor kosong (Kontrol) menjadi daun N. benthamiana yang dimandikan dengan Pst DC3000 (OD600=0.1) selama 24 jam. Aktivitas relatif GUS (GUS/Luciferase) yang menunjukkan tingkat ekspresi PR1 yang diatur oleh berbagai efektor ditunjukkan pada (E). Bilah kesalahan mewakili deviasi standar sampel independen rangkap tiga. Datanya adalah rata-rata ± SD dari tiga ulangan biologis. Huruf kecil menunjukkan perbedaan yang signifikan (ANOVA satu arah, P 5 0.01, Kumpulan Data Tambahan 1).
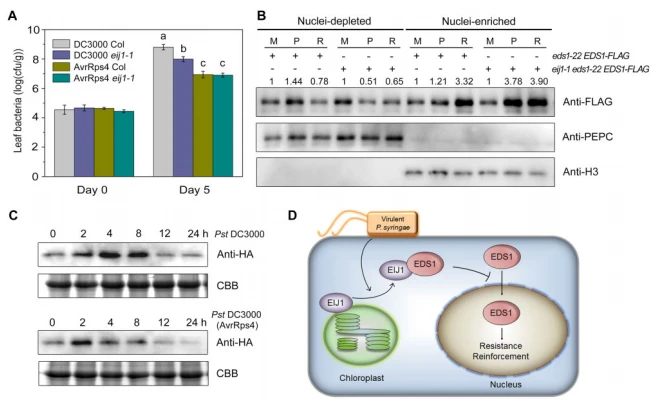
Gambar 7 EIJ1 dan EDS1 memodulasi resistensi basal tanaman. (A) Pertumbuhan bakteri Col dan eij1-1 mutan. Tanaman berumur tiga minggu diinokulasi dengan Pst DC3000 atau Pst DC3000 (AvrRps4; OD600=0.05). Titer bakteri Pst DC3000 pada 0 dan 5 dpi ditentukan. Datanya adalah rata-rata ± SD dari tiga ulangan biologis. Huruf kecil menunjukkan perbedaan yang signifikan (ANOVA satu arah, P 5 0.01, Kumpulan Data Tambahan 1). (B) EIJ1 hampir tidak mempengaruhi akumulasi EDS1 dalam inti yang dipicu oleh Pst DC3000 (AvrRps4). Fraksi yang kekurangan inti dan fraksi yang diperkaya inti diekstraksi dari 3-eds berumur seminggu1-22 EDS1pro: EDS1-3FLAG dan eij1-1 eds1-22 EDS1pro: Tanaman transgenik EDS1-3FLAG diinokulasi dengan Pst DC3000 (OD600=0.1), Pst DC3000 (AvrRps4; OD600=0.1), atau diinokulasi tiruan pada 4 hpi, dan dideteksi menggunakan antibodi anti-FLAG. PEPC dan histone H3 masing-masing digunakan sebagai penanda sitoplasma dan nuklir. Intensitas relatif protein dari tanaman dengan perlakuan tiruan ditetapkan ke 1. M, tiruan; P, Pst DC3000; R, Pst DC3000 (AvrRps4). (C) Infeksi Pst DC3000 (AvrRps4) mendorong degradasi protein EIJ1. Total protein diekstraksi dari tanaman berumur 3-eij1-1 EIJ1pro: EIJ1-6HA yang diinokulasi dengan Pst DC3000 atau Pst DC3000 (AvrRps4; OD600=0.1) , dan dideteksi menggunakan antibodi anti-HA. Panel bawah menunjukkan pewarnaan dengan Coomassie Brilliant Blue (CBB) sebagai kontrol pemuatan. Hasil representatif yang disajikan pada (B) dan (C) diulangi secara independen dua kali lagi dan diperiksa dengan antibodi anti-ACTIN sebagai kontrol pemuatan (File Tambahan 2). (D) Model hipotetis EIJ1 yang mengatur ketahanan basal tanaman yang bergantung pada EDS. Ketika tanaman diserang oleh patogen, EIJ1 dengan cepat dilepaskan dari kloroplas ke sitoplasma tempat ia berinteraksi dengan EDS1. Interaksi EIJ1–EDS1 mencegah perpindahan EDS1 dari sitoplasma ke dalam nukleus dan dengan demikian membatasi resistensi nuklir EDS1, sehingga memungkinkan modulasi respons imun yang dimediasi EDS1-. Garis panah dan garis tumpul masing-masing menunjukkan aktivasi dan represi.
Diskusi
Untuk memaksimalkan kelangsungan hidup, tanaman telah mengembangkan mekanisme yang tepat untuk mengoptimalkan pertumbuhan dan pertahanan terhadap serangan patogen, meskipun banyak rincian mekanisme ini masih belum jelas. EDS1 menempati posisi kunci dalam jaringan sinyal imunitas bawaan tanaman, karena mengatur resistensi terhadap patogen biotrofik dan hemibiotrofik (Wiermer et al., 2005). Dalam penelitian ini, kami mengidentifikasi gen, EIJ1, yang mengkode protein pendamping DnaJ, dan menunjukkan bahwa EIJ1 responsif terhadap infeksi patogen awal dan berperan dalam kekebalan bawaan tanaman dengan berinteraksi langsung dengan EDS1. Berdasarkan temuan ini, kami mengusulkan model regulasi untuk EIJ1 (Gambar 7D). Ketika tanaman diserang oleh patogen, EIJ1 dengan cepat dilepaskan dari kloroplas ke sitoplasma, tempat ia berinteraksi dengan EDS1. Interaksi EIJ1–EDS1 ini mencegah perpindahan EDS1 dari sitoplasma ke dalam nukleus, dan hal ini membatasi resistensi inti EDS1, sehingga memungkinkan modulasi respons imun yang dimediasi EDS1-seperti induksi biosintesis SA dan ekspresi resistensi gen yang terkait. Ketika tanaman menerima rangsangan terus-menerus dari serangan patogen, EIJ1 secara bertahap terdegradasi, menyebabkan peningkatan akumulasi inti EDS1 untuk memperkuat resistensi. Temuan ini menggambarkan peran penting represif EIJ1 selama respon awal inang terhadap invasi patogen, mengisi kesenjangan dalam pemahaman kita tentang bagaimana lokalisasi subseluler EDS1 diatur untuk memberikan resistensi.
Analisis sekuens mengungkapkan bahwa EIJ1 adalah protein DnaJ. Genom Arabidopsis mengkodekan tujuh tipe klasik protein DnaJ yang berbeda (Pulido dan Leister, 2018). Penelitian sebelumnya menunjukkan bahwa protein DnaJ memainkan peran penting dan berbeda dalam kekebalan tanaman. Misalnya, kedelai (Glycine max) GmHSP40 secara positif mengatur kematian sel dan resistensi penyakit (Liu dan Whitham, 2013). Sebaliknya, protein Os-DjA6 pada beras (Oryza sativa L.) secara negatif mengatur imunitas bawaan tanaman melalui jalur degradasi proteasome yang dimediasi di mana-mana (Zhong et al., 2018). Efektor virulensi Hopl1 spesifik P. syringae, yang berisi domain J, ditargetkan ke kloroplas, di mana ia berinteraksi dengan mesin respons stres tanaman (Jelenska et al., 2007). Studi-studi ini menunjukkan bahwa protein DnaJ memainkan beragam peran dalam respon pertahanan tanaman. Tsip1, protein DnaJ N. tabacum yang homolog dengan EIJ1, mengatur aktivasi transkripsi gen yang dimediasi Tsi1-sebagai respons terhadap stres (Ham et al., 2006). Tsi1 mengkodekan faktor transkripsi tipe APETALA2 (AP2) yang berfungsi sebagai pengatur penting dalam respons stres biotik dan abiotik di N. tabacum (Park et al., 2001). SA memicu relokasi Tsip1 dari kloroplas ke sitoplasma, yang memfasilitasi interaksi antara Tsip1 dan Tsi1 dan selanjutnya masuknya kompleks Tsip1-Tsi1 ke dalam nukleus untuk aktivasi transkripsi gen yang berhubungan dengan stres (Ham et al., 2006) . Berbeda dengan Tsip1, EIJ1 terlokalisasi pada kloroplas dan nukleus dalam kondisi normal dalam penelitian ini. Kami menunjukkan bahwa infeksi patogen memicu relokasi EIJ1 dari kloroplas ke sitoplasma dan bahwa interaksi antara EIJ1 dan EDS1 dalam sitoplasma menghambat resistensi nuklir yang dimediasi EDS1-. Konsisten dengan temuan ini, hilangnya fungsi eij1 menunjukkan resistensi yang lebih kuat terhadap patogen dibandingkan tipe liar (Col-0). Hal ini menegaskan bahwa EIJ1 memainkan peran negatif dalam imunitas bawaan tanaman. Menurut penelitian sebelumnya, aktivitas nuklir dan sitoplasma EDS1 yang terkoordinasi sangat penting bagi tanaman untuk melengkapi respon imun bawaan terhadap patogen (Garcı´a et al., 2010; Heidrich et al., 2011). Lokalisasi nuklir EDS1 diperlukan untuk pemrograman ulang transkripsi resistensi yang diinduksi TNL untuk menginduksi respons pertahanan tanaman terkait SA dan lainnya (Wirthmueller et al., 2007). Kelompok EDS1 sitoplasma juga dipertahankan selama proses infeksi untuk resistensi penuh terhadap patogen (Garcı´a et al., 2010). Pengamatan ini menimbulkan kekhawatiran yang signifikan mengenai bagaimana tanaman mengatur secara tepat alokasi EDS1 antara sitoplasma dan nukleus untuk respons pertahanan yang tepat ketika ditantang oleh infeksi patogen. Di sini, kami menunjukkan bahwa alokasi tepat EDS1 ke kompartemen subseluler yang berbeda sebagian diatur oleh EIJ1 melalui interaksi protein-protein. Hilangnya fungsi mutasi EIJ1 terutama mendorong perdagangan EDS1 ke nukleus (Gambar 5, D, dan 7, B), yang menyebabkan peningkatan resistensi penyakit.
Karena EIJ1 dengan cepat diinduksi pada tahap awal infeksi patogen dan kemudian terdegradasi selama perkembangan penyakit, kami berspekulasi bahwa EIJ1 adalah pengatur kekebalan negatif yang penting yang memungkinkan tanaman memperbaiki pertahanan optimalnya. Represi aktivitas EDS1 yang dimediasi EIJ1-dapat mencegah timbulnya respons imun yang tidak perlu terhadap stimulasi jangka pendek seperti serangan sesekali oleh bakteri patogen. Alternatifnya, bakteri patogen dapat memanipulasi imunitas inang dengan memicu disosiasi EIJ1 dari kloroplas, mungkin dengan mengeluarkan efektor yang mematikan. Kami tidak dapat mengesampingkan kemungkinan bahwa EIJ1 melakukan fungsi yang tidak diketahui dalam kloroplas. Seperti yang kita ketahui, SA, hormon tanaman dan molekul pemberi sinyal yang terlibat dalam resistensi terhadap patogen biotrofik, dibiosintesis terutama di kloroplas dan kemudian diekspor ke sitoplasma oleh EDS5, suatu pengangkut multidrug dan toksin (Serrano et al., 2013). EIJ1 kemungkinan merupakan pengatur negatif akumulasi SA, karena ia menurunkan regulasi ekspresi gen biosintetik SA ICS1 pada inokulasi patogen (Gambar 4E). Selain represi transkripsional yang dimediasi EIJ1-melalui interaksinya dengan EDS1, ada kemungkinan bahwa EIJ1 juga memainkan peran langsung dalam biosintesis SA atau transportasi SA dari kloroplas dengan cara yang tidak teridentifikasi. Tidak mengherankan jika proses biosintesis EIJ1 dan SA ditemukan terhubung dalam penelitian selanjutnya. Menariknya, EIJ1 juga terlokalisasi pada nukleus. Meskipun EIJ1 tidak berinteraksi dengan EDS1 di dalam nukleus, mungkin karena kurangnya kofaktor atau modifikasi esensial, fungsi EIJ1 yang terlokalisasi di nukleus layak untuk diselidiki lebih lanjut.

cistanche tubulosa-meningkatkan sistem kekebalan tubuh
Bakteri patogen menghasilkan efektor intraseluler untuk menumbangkan PTI inang dengan menargetkan protein resistensi patogen seperti PRR, sedangkan reseptor mirip NOD sitoplasma tanaman merasakan efektor ini untuk memulai ETI (Dou dan Zhou, 2012; Khan et al., 2016). Penelitian sebelumnya dan hasil kami menunjukkan bahwa Pst DC3000 (AvrRps4) yang avirulen mendorong perdagangan EDS1 sitoplasma ke dalam nukleus (Garcı´a et al., 2010). Selain itu, hasil kami menunjukkan tidak ada perbedaan signifikan pada Pst DC3000 (AvrRps4) yang memicu akumulasi inti EDS1 dan resistensi patogen selanjutnya antara tanaman mutan Col-0 dan eij1-1 (Gambar 7, A, dan B) . Selain itu, resistensi yang ditunjukkan oleh mutan eij1-1 sebanding dengan yang ditunjukkan oleh tanaman Col-0 yang diinokulasi dengan strain Pst DC3000 hrcC yang rusak pada sistem sekresi tipe III (Gambar Tambahan 12). Selain itu, akumulasi EIJ1 jauh lebih rendah pada tanaman yang diinokulasi dengan Pst DC3000 avirulen (AvrRps4) dibandingkan pada tanaman yang diinokulasi dengan Pst DC3000 virulen (Gambar 7C), menunjukkan bahwa EIJ1 adalah pengatur penting respon imun yang dipicu oleh efektor virulensi dalam sel inang. Karena tanaman Pst DC3000-yang diinokulasi eij1-1 meniru fenotip ketahanan tanaman Col-0 yang diinokulasi Pst DC3000 (AvrRps4) (Gambar 3, F, G, 4, C, D, dan 7, A), EIJ1 dapat berfungsi sebagai penghalang untuk mencegah induksi ETI oleh strain virulen. Sebagai kesimpulan, kami telah mengidentifikasi EIJ1, protein pendamping DnaJ, dan menunjukkan bahwa ia terlibat dalam respon imun awal terhadap patogen tanaman. Interaksi antara EIJ1 dan EDS1 menekan perdagangan nuklir EDS1, mungkin untuk mencegah stimulasi jangka pendek melalui respons imun tanaman yang tidak perlu, untuk memfasilitasi invasi patogen melalui mekanisme manipulasi, atau keduanya. Terlepas dari mekanisme yang mendasarinya, alel EIJ1 dapat digunakan sebagai target potensial yang efektif untuk modifikasi imunitas bawaan tanaman dalam pemuliaan yang tahan penyakit. Karena EIJ1 tidak mempengaruhi pertumbuhan normal tanaman, pelemahan fungsi EIJ1 melalui pengeditan genom mungkin secara nyata meningkatkan tingkat ketahanan tanaman terhadap penyakit dengan sedikit pengaruh pada pertumbuhan.
Referensi
Alvarez, ME, Pennell, RI, Meijer, PJ, Ishikawa, A, Dixon, RA, Lamb, C (1998) Zat antara oksigen reaktif memediasi jaringan sinyal sistemik dalam pembentukan kekebalan tanaman. Sel 92: 773–784
An, C, Mou, Z (2011) Asam salisilat dan fungsinya dalam imunitas tanaman. J Integr Pabrik Biol 53: 412–428
Armbruster, U, Carrillo, LR, Venema, K, Pavlovic, L, Schmidtmann, E, Kornfeld, A, Jahns, P, Berry, JA, Kramer, DM, Jonikas, MC (2014) Antiport ion mempercepat aklimasi fotosintesis dalam cahaya yang berfluktuasi lingkungan. Nat Komuni 5: 5439
Bartsch, M, Gobbato, E, Bednarek, P, Debey, S, Schultze, JL, Bautor, J, Parker, JE (2006) PENINGKATAN KEKERASAN PENYAKIT yang tidak bergantung pada asam salisilat1 sinyal dalam imunitas Arabidopsis dan kematian sel diatur oleh monooxygenase FMO1 dan Nudix hidrolase NUDT7. Sel Tumbuhan 18: 1038–1051
Ben Rejeb, K, Lefebvre-De Vos, D, Le Disquet, I, Leprince, AS, Bordenave, M, Maldiney, R, Jdey, A, Abdelly, C, Savoure´, A (2015) Hidrogen peroksida diproduksi oleh NADPH oksidase meningkatkan akumulasi prolin selama stres garam atau manitol di Arabidopsis thaliana. Fitol Baru 208: 1138–1148
Bukau, B, Weissman, J, Horwich, A (2006) Pendamping molekuler dan kontrol kualitas protein. Sel 125: 443–451
Caplan, J, Padmanabhan, M, Dinesh-Kumar, SP (2008) Menanam reseptor imun NB-LRR: dari pengenalan hingga pemrograman ulang transkripsional. Mikroba Inang Sel 3: 126–135 10.1016/j.chom.2008.02.010
Dodds, PN, Rathjen, JP (2010) Imunitas tanaman: menuju pandangan terpadu interaksi patogen tanaman. Nat Rev Genet 11: 539–548
Dou, D, Zhou, JM (2012) Efektor fitopatogen menumbangkan kekebalan inang: musuh berbeda, medan pertempuran serupa. Mikroba Inang Sel 12: 484–495
Du, Y, Zhao, J, Chen, T, Liu, Q, Zhang, H, Wang, Y, Hong, Y, Xiao, F, Zhang, L, Shen, Q (2013) Protein NbMIP1 domain J tipe I adalah diperlukan untuk infeksi virus mosaik tembakau dan kekebalan bawaan tanaman. Jalur PLoS 9: e1003659
Fan, H, Hu, Y, Tudor, M, Ma, H (1997) Interaksi spesifik antara domain K AG dan AGL, anggota keluarga domain MADS dari protein pengikat DNA. Pabrik J 12: 999–1010
Feys, BJ, Moisan, LJ, Newman, MA, Parker, JE (2001) Interaksi langsung antara protein pemberi sinyal resistensi penyakit Arabidopsis, EDS1 dan PAD4. EMBO J 20: 5400–5411
Garcı´a, AV, Blanvillain-Baufume´, S, Huibers, RP, Wiermer, M, Li, G, Gobbato, E, Rietz, S, Parker, JE (2010) Aktivitas nuklir dan sitoplasma yang seimbang dari EDS1 diperlukan untuk a respon imun bawaan tanaman yang lengkap. Jalur PLoS 6: e1000970
Gassmann, W, Hinsch, ME, Staskawicz, BJ (1999) Gen ketahanan bakteri Arabidopsis RPS4 adalah anggota keluarga gen ketahanan penyakit TIR-NBS-LRR. Pabrik J 20: 265–277
Gloggnitzer, J, Akimcheva, S, Srinivasan, A, Kusenda, B, Riehs, N, Stampfl, H, Bautor, J, Dekrout, B, Jonak, C, Jime´nez-Go´mez, JM (2014) Omong kosong- peluruhan mRNA yang dimediasi memodulasi tingkat reseptor kekebalan untuk mengatur pertahanan antibakteri tanaman. Mikroba Inang Sel 16: 376–390
Ham, BK, Park, JM, Lee, SB, Kim, MJ, Lee, IJ, Kim, KJ, Kwon, CS, Paek, KH (2006) Tembakau Tsip1, protein jari Zn tipe DnaJ, direkrut dan dipotensiasi Tsi1-aktivasi transkripsi yang dimediasi. Sel Tumbuhan 18: 2005–2020
Heidrich, K, Blanvillain-Baufume´, S, Parker, JE (2012) Kendala molekuler dan spasial pada pensinyalan reseptor NB-LRR. Biol Tanaman Opin Saat Ini 15: 385–391
Heidrich, K, Wirthmueller, L, Tasset, C, Pouzet, C, Deslandes, L, Parker, JE (2011) Arabidopsis EDS1 menghubungkan pengenalan efektor patogen dengan respon imun spesifik kompartemen sel. Sains 334: 1401–1404
Hu, Y, Zhou, L, Huang, M, He, X, Yang, Y, Liu, X, Li, Y, Hou, X (2018) Giberelin memainkan peran penting dalam embriogenesis akhir Arabidopsis. Tanaman Nat 4: 289–298
Huang, M, Hu, Y, Liu, X, Li, Y, Hou, X. (2015) Arabidopsis LEAFY COTYLEDON1 memediasi perkembangan postembrionik melalui interaksi dengan FAKTOR INTERAKSI PHYTOCHROME4. Sel Tumbuhan 27: 3099–3111
Jelenska, J, Yao, N, Vinatzer, BA, Wright, CM, Brodsky, JL, Greenberg, JT (2007) Efektor virulensi domain AJ dari Pseudomonas syringae merombak kloroplas inang dan menekan pertahanan. Sekarang Biol 17: 499–508
Jones, J, Dangl, J (2006) Sistem kekebalan tanaman. Alam 444: 323–329
Khan, M, Subramaniam, R, Desveaux, D (2016) Penjaga, umpan, umpan, dan perangkap: persepsi patogen pada tanaman oleh sensor efektor tipe III. Mikrobiol Opin Curr 29: 49–55
Kinkema, M, Fan, W, Dong, X (2000) Lokalisasi nuklir NPR1 diperlukan untuk aktivasi ekspresi gen PR. Sel Tumbuhan 12: 2339–2350
Koch, E, Slusarenko, A (1990) Arabidopsis rentan terhadap infeksi jamur bulai. Sel Tumbuhan 2: 437–445
Lam, E, Kato, N, Lawton, M (2001) Kematian sel terprogram, mitokondria, dan respon hipersensitif tanaman. Alam 411: 848–853
Lee, DW, Kim, JK, Lee, S, Choi, S, Kim, S, Hwang, I (2008) Peptida transit plastid berkode nuklir Arabidopsis mengandung beberapa subkelompok urutan dengan motif urutan penargetan kloroplas yang khas. Sel Tumbuhan 20: 1603–1622