

Tinjauan Tahunan Farmakologi Dan Toksikologi Bagian 2
Jul 28, 2023
Flavon isomer menampilkan 2-substituen aril pada 4H-chromen-4-satu inti, dan senyawa ini selanjutnya dimetabolisme menjadi berbagai fitoestrogen. Baicalein terjadi dalam ramuan yang digunakan dalam pengobatan Tiongkok tradisional dan, dengan substituen 2-fenil sederhana, berfungsi sebagai antagonis GPER untuk mengurangi E2-migrasi yang diinduksi, adhesi, dan invasi pada sel kanker payudara (66) dan menekan E2-menginduksi invasi sel dan matriks metalloproteinase-9 ekspresi dan aktivasi (67).
Isoflavon merupakan senyawa alami yang banyak terdapat pada banyak sayuran dan buah-buahan, seperti timun, bawang, asparagus, dan tomat. Dalam beberapa tahun terakhir, semakin banyak penelitian ilmiah yang menunjukkan bahwa isoflavon adalah nutrisi yang sangat bermanfaat yang dapat membantu meningkatkan kekebalan tubuh manusia.
Pertama, isoflavon merupakan antioksidan yang dapat menetralkan radikal bebas, menghambat aktivitas radikal bebas, dan melindungi sel dari kerusakan oksidatif. Efek antioksidan ini dapat secara efektif meningkatkan kekebalan manusia dan mengurangi timbulnya penyakit.
Kedua, flavonoid isomerisasi juga memiliki efek menghambat peradangan. Penelitian telah menunjukkan bahwa peradangan adalah akar dari banyak penyakit, antara lain penyakit jantung, stroke, diabetes, dan kanker. Karena isoflavon dapat menghambat peradangan, ia berperan penting dalam melindungi kesehatan manusia.
Terakhir, isoflavon juga dapat meningkatkan diferensiasi dan proliferasi sel, meningkatkan fungsi kekebalan tubuh, dan membantu tubuh memproduksi lebih banyak antibodi dan sel kekebalan, sehingga memperkuat kekebalan tubuh.
Secara umum, isoflavon merupakan nutrisi yang sangat penting yang dapat meningkatkan kekebalan tubuh manusia dan mengurangi timbulnya penyakit. Oleh karena itu, kita harus memperhatikan kombinasi struktur makanan yang masuk akal dan meningkatkan makanan yang mengandung isoflavon, untuk menjaga kesehatan fisik dan mental. Dari sudut pandang ini, kita perlu meningkatkan kekebalan kita. Cistanche dapat meningkatkan imunitas secara signifikan karena Cistanche juga memiliki efek anti virus dan anti kanker, yang dapat memperkuat kemampuan sistem imun untuk melawan dan meningkatkan imunitas tubuh.

Klik manfaat kesehatan dari cistanche
Katekin polifenol seperti (-)-epicatechin terjadi pada teh hijau, kakao, dan beberapa buah dan telah menarik perhatian yang signifikan mengenai potensi manfaat kesehatannya. (−)-Epicatechin mengaktifkan jalur pensinyalan GPER untuk vasodilatasi mirip dengan G-1 (68) dan menstimulasi biogenesis mitokondria pada otot rangka tikus (69). Turunan eter propargilik sintetik dari (−)-epicatechin mempertahankan aktivitas di jalur eNOS/NO dan, ketika diimobilisasi, berfungsi sebagai kolom afinitas untuk menurunkan GPER dari ekstrak protein sel endotel, selanjutnya memvalidasi (−)-epicatechin sebagai ligan GPER (70).
Anthocyanin adalah kelas beragam flavonoid berwarna tinggi yang ditemukan dalam buah-buahan dan anggur merah yang telah menarik perhatian karena nilai nutraceutical dan manfaat potensial untuk penyakit pembuluh darah. Aglikon delphinidin dan glikosilat delphinidin 3-glukosida memiliki potensi yang sama dalam memunculkan respons vasodilator cepat yang dimediasi NO pada tikus jantan, dan respons ini ditiru oleh perfusi jaringan baik dengan G-1 atau E2 dan berkurang secara signifikan dengan pengobatan dengan G36, yang melibatkan GPER di jalur ini (71).
Zearalenone adalah makrolakton fenolik yang diproduksi oleh mikotoksin dalam biji-bijian dan sereal dan dimetabolisme menjadi alkohol epimer - dan -zearalenon. Dengan kejadian yang meluas, senyawa ini dikonsumsi oleh hewan dan manusia, menimbulkan kekhawatiran tentang efek estrogenik pada sistem reproduksi, toksisitas lain, dan peran potensial dalam perkembangan kanker yang bergantung pada hormon. Zearalenone adalah agonis GPER, dan paparan pada sel dan kelenjar hipofisis babi menyebabkan peningkatan ekspresi RNA messenger GPER, tetapi bukan ER / , bersama dengan aktivasi jalur GPER/PKC/p38 untuk meningkatkan regulasi mikroRNA miR-7, yang menargetkan gen FOS, menyebabkan penghambatan sintesis dan sekresi hormon perangsang folikel dan mengakibatkan cacat reproduksi (72, 73). Dalam garis sel kanker usus besar, yang biasanya tidak dianggap peka terhadap hormon, zearalenone mempromosikan pertumbuhan sel yang tidak bergantung pada jangkar dan perkembangan siklus sel, yang ditekan oleh G15, melalui MAPK dan efektor jalur Hippo YAP1, menyediakan mekanisme untuk mempromosikan pertumbuhan kanker usus besar ( 74).
Beberapa kelas struktural bahan kimia pengganggu endokrin sintetik adalah ligan untuk GPER, dan pendekatan skrining farmakologis dikembangkan untuk membedakan aktivitas agonis / antagonis GPER. Metode ini menggunakan pencitraan sel hidup untuk memantau perubahan morfologi sel fibroblast manusia MR5C sebagai respons terhadap G-1 dan G15 untuk mengevaluasi aktivitas GPER (75). Bisphenol diproduksi secara industri dan dimasukkan ke dalam banyak produk konsumen dalam skala besar di seluruh dunia dan merupakan salah satu kelas senyawa pengganggu endokrin yang paling penting. Analog ini umumnya menunjukkan afinitas pengikatan relatif yang lebih tinggi untuk GPER daripada ER dan menginisiasi jalur pensinyalan ekstranuklear pada dosis rendah yang menantang penandaan klasiknya sebagai estrogen lemah (76, 77). BPAF analog bisfenol terfluorinasi memiliki afinitas sembilan kali lipat lebih tinggi untuk GPER daripada senyawa induk, ditentukan menggunakan uji pengikatan kompetitif fluoresen dalam sel SKBR3 yang mengekspresikan GPER, dan efek nongenomik yang dimediasi GPER diamati pada konsentrasi 10-nM (78) . Saat produsen beralih ke alternatif bebas BPA dengan analog seperti sulfon BPS, kekhawatiran akan aktivitas estrogenik tetap ada dan memerlukan studi lebih lanjut dalam konteks luas reseptor yang terlibat dan peningkatan ketekunan untuk pemantauan dan penilaian risiko.
Senyawa Bertarget GPER Sintetis
Penemuan bahwa GPER dapat berperan dalam aktivitas senyawa estrogenik (19-21, 79) menetapkan kebutuhan kritis akan alat farmakologis baru untuk membedakan antara aktivitas ER / dan GPER. Tantangan untuk mendapatkan struktur resolusi atom untuk GPCR yang terikat membran, dan tidak adanya struktur GPER seperti itu, telah menjadi hambatan signifikan bagi pendekatan berbasis struktur yang berusaha merancang dan mengoptimalkan senyawa yang ditargetkan GPER. Gabungan pendekatan skrining virtual dan biomolekuler menghasilkan penemuan yang pertama dan sampai saat ini yang paling banyak dipelajari, agonis GPER, G-1 (80) (Gambar 3).
Strategi ini menggunakan layar komputasi berbasis ligan dari 10,000-perpustakaan senyawa anggota untuk kesamaan struktural dengan E2 untuk memberi peringkat senyawa untuk uji pengikatan kompetitif sitometri aliran berbasis sel, yang menggunakan sintetik fluoresen E2- probe untuk membedakan senyawa yang menunjukkan pengikatan GPER selektif mengenai subtipe reseptor nuklir (80). Aplikasi selanjutnya dari kimia obat sintetik untuk studi struktur-aktivitas scaffold tetrahydro-3Hcyclopenta[c]quinoline menghasilkan identifikasi antagonis GPER pertama, G15 (81), dan analog yang ditingkatkan, G36 (82). Aktivitas, selektivitas, dan ketergantungan GPER G-1 telah didemonstrasikan dalam beberapa lini sel ER-negatif, termasuk SKBR3 (kanker payudara) (19), Hec50 (kanker endometrium) (83), dan MCF10A (kanker payudara normal) epitel) (84) sel, menggunakan pendekatan knockdown RNA kecil yang mengganggu (32, 83, 84) serta dalam banyak sistem pada tikus knockout (KO) GPER (85).
Sampai saat ini, aktivitas senyawa ini, saat diperiksa, tidak ada dalam sel dan tikus yang kekurangan GPER (85), kecuali untuk efek yang dilaporkan pada tubulin pada konsentrasi tinggi (3–50 μM) (86, 87). Senyawa G-series selektif GPER yang tervalidasi ini tersedia secara komersial sebagai campuran rasemat dan telah memungkinkan penerapan pendekatan biologi molekuler dan beragam studi in vitro dan in vivo untuk mengkarakterisasi ligan baru dan membedakan GPER dari ER / dalam beberapa jalur di beragam jenis sel, jaringan, dan organ. Enansiomer (S, R, R) dari G-1 [1-((3aS,4R,9bR)-4-(6-bromobenzo[d][1,3 ]dioxol5-yl)-3a,4,5,9b-tetrahydro-3H-cyclopenta[c]quinolin-8-yl)ethan-1-one] diperoleh dengan kromatografi kiral (cairan kinerja tinggi) dan telah maju sebagai obat baru investigasi (IND) bertarget GPER pertama, LNS8801 (88), untuk memasuki uji klinis pada manusia (https:// clinicaltrials.gov/ct2/show/ NCT04130516).

Pendekatan yang digunakan untuk mengidentifikasi senyawa seri G juga mengarah pada penemuan senyawa oksabiklik AB-1, yang menunjukkan profil selektivitas unik dan terbalik dibandingkan dengan senyawa seri G, tidak mengikat atau memengaruhi aktivitas GPER sementara bertindak sebagai agonis ER / respon / transkripsi genomik klasik (dan memusuhi jalur pensinyalan nonklasik cepat yang dimediasi oleh ER) (89). Selektivitas ini sangat penting mengingat banyak senyawa yang ditargetkan ER juga berinteraksi dengan GPER; misalnya, modulator reseptor estrogen selektif (SERM) (4-hidroksi)tamoksifen (metabolit aktif tamoksifen yang digunakan dalam percobaan in vitro) adalah agonis kuat GPER (20, 21, 90). Hibrida diphenylacrylamide tamoxifen-raloxifene yang terkait secara struktural, STX, juga mengaktifkan GPER dalam sel klon hippocampal mHippoE-18 (37, 91).
Upaya yang cukup telah difokuskan pada pengembangan model homologi komputasi untuk GPER, yang telah memungkinkan studi docking molekul, simulasi dinamika molekul, dan pendekatan penyaringan virtual, seperti yang dijelaskan dalam ulasan terbaru (92-101). Sementara cakupan mendalam dari subjek ini berada di luar cakupan ulasan ini, dan karakterisasi dari banyak senyawa tetap tidak lengkap, adalah penting untuk mensurvei ligan baru yang telah diidentifikasi dan meringkas wawasan yang menyertainya mengenai pengikatan dan fungsi.
Signifikansi struktural perancah G-1 sebagai farmakofor telah ditetapkan melalui beberapa program sintetik yang menghasilkan turunan yang mempertahankan pengikatan GPER. Gugus siklopenten telah dijenuhkan dan diganti dengan gugus tetrahidrofuran dan tetrahidropiranil (98, 102, 103). Gugus metilena telah digantikan oleh gugus fungsi karboksilat dan karboksamida (97, 104), dan turunan biaril dari gugus 5-bromobenzo[1,3]dioxole telah disiapkan oleh Suzuki–Miyaura cross-coupling (94). Dalam contoh lain, pewarna fluorescent borondipyrromethene difluoride (BODIPY) terkonjugasi ke posisi 6-dari 5-bromobenzo[1,3]dioxole meniru struktur G-1 dan menunjukkan ligan kompetitif mengikat GPER dengan 3H-E2 dan G15 dalam sel SKBR3 (105). SAGZ5 indole-thiazole terkait amida diidentifikasi dengan skrining virtual model farmakofor 3D dan ditemukan sebagai agonis GPER yang mengaktifkan adenilat siklase dan pembentukan cAMP berikutnya dalam sel HL60 dengan nilai EC50 mirip dengan nilai G-1 ( 106). Model docking mengusulkan agar SAGZ5 berikatan di situs hidrofobik yang sama seperti yang dimodelkan untuk G-1.
Beberapa antagonis GPER tambahan dengan beberapa kemiripan struktural dengan G15 dan G36 telah diidentifikasi. Senyawa pyrrolobenzoxazinone PBX1 dan PBX2 diidentifikasi sebagai ligan GPER melalui studi pengikatan kompetitif dan pada konsentrasi 10-μM menghambat proliferasi sel SKBR3 dan migrasi sel fibroblas terkait kanker yang diinduksi oleh 100 nM E2 dan G-1 (107 ). Senyawa struktural terkait tambahan seperti pyrrolo[1,2-a]quinoxaline dan dihydopyrrolo[1,2-a]quinoxaline (PQO-14c dan DHPQO-15g) diidentifikasi sebagai antagonis GPER menggunakan model homologi berdasarkan reseptor kemokin CXCR4 dan dengan menyaring secara virtual senyawa dengan mode pengikatan yang mirip dengan senyawa seri-G (108). Senyawa ini menginduksi kematian sel dalam sel MCF7 dan SKBR3 yang mengekspresikan GPER, dengan analog struktural yang menunjukkan efek diferensial pada ekspresi p53 dan p21. Analog yang terkait secara struktural dari perancah ini menghambat proliferasi sel dalam sel TNBC, dengan peningkatan aktivitas turunan dihydropyrrolo yang diamati (109).
Pendekatan pemodelan homologi digunakan untuk merancang CIMBA benzilik anilin yang menghambat mobilisasi kalsium yang diinduksi G-1-(110). Struktur CIMBA dapat dianggap sebagai analog asiklik dari G36, memberikan peningkatan fleksibilitas konformasi dan kelarutan dalam air dibandingkan dengan perancah quinoline. Injeksi CIMBA intraperitoneal dalam model tikus yang diovariektomi mencegah E2-batu empedu kolesterol yang diinduksi dengan cara yang bergantung pada dosis. Hasil ini mendorong studi lebih lanjut antagonis GPER untuk pengembangan obat baru untuk mengobati penyakit batu empedu kolesterol pada wanita.

Sebuah peptida yang sesuai dengan residu 295–311 dari daerah engsel/domain AF2 ER (disebut ER 17p) menginduksi apoptosis pada sel kanker payudara dan mempromosikan regresi dalam model xenograft tumor negatif ER (111). Peptida ini disarankan sebagai agonis kebalikan dari GPER, menurunkan fosforilasi EGFR dan ERK1/2, menurunkan ekspresi c-fos, dan menginduksi downregulasi GPER yang bergantung pada proteasome (112). Kegiatan ini direplikasi oleh PLMI tetrapeptida sintetik pendek, yang didasarkan pada terminal N dari peptida yang lebih besar, dan sementara pada pertimbangan pertama peptida ini tampak sangat berbeda dari perancah heterosiklik lainnya, studi docking molekuler menyarankan korelasi dalam prediksi pengikatan GPER. situs senyawa antagonis heterosiklik PBX-1 (112).
PELUANG TERAPEUTIK UNTUK GPER-SELECTIVE LIGANDS Cancer
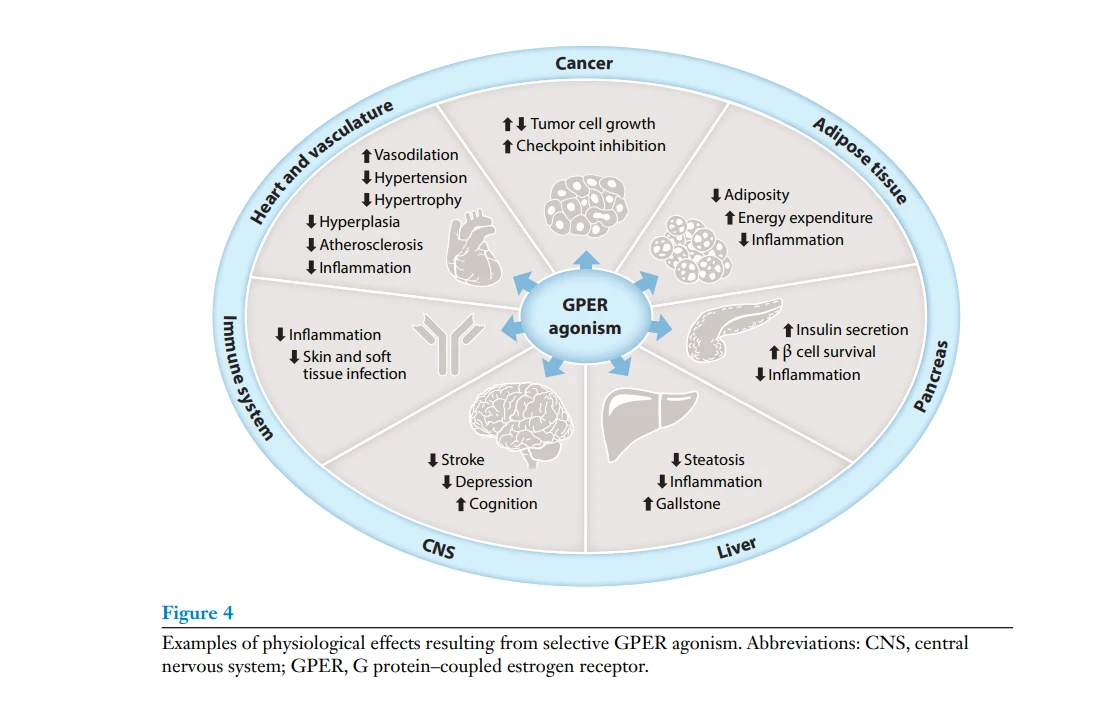
GPER diekspresikan dalam berbagai kanker manusia, menunjukkan peran yang mungkin untuk diagnosis, prognosis, atau menargetkan aktivitas atau ekspresinya sebagai intervensi terapeutik. Ekspresi GPER telah didokumentasikan pada kanker manusia (atau garis sel) seperti payudara, endometrium, ovarium, prostat, pankreas, tiroid, usus besar, paru-paru, ginjal, dan melanoma, di antara banyak lainnya (diulas pada 113). Dalam banyak jalur sel kanker, termasuk payudara (84), endometrium (114), tiroid (115), dan ovarium (116), G-1 mendorong proliferasi dan jalur pensinyalan terkait (Gambar 4). Namun, penghambatan proliferasi juga telah dilaporkan pada payudara (117), melanoma (118), prostat (119, 120), pankreas (121), dan jalur sel kanker lainnya. Dalam model kanker prostat murine xenograft yang mencakup kanker yang sensitif terhadap androgen dan tahan pengebirian, G-1 menghambat perkembangan kanker tetapi hanya pada penyakit yang tahan pengebirian (119, 120). Perbedaan dalam mekanisme proliferasi sel serta konsentrasi G-1 yang digunakan dapat menjelaskan perbedaan in vitro ini.
Pada manusia, ekspresi GPER berkorelasi dengan hasil yang buruk pada kanker payudara (122-124), endometrium (125), dan ovarium (126). Ekspresi GPER meningkat pada metastasis kanker payudara dibandingkan dengan tumor primer yang cocok (127, 128) tetapi, yang menarik, hanya pada wanita yang diobati dengan tamoxifen (128). Ekspresi GPER juga berkorelasi dengan penurunan penghambatan pertumbuhan tumor pada tumor payudara ER-/GPER-positif primer yang diobati dengan tamoxifen dibandingkan dengan penghambatan aromatase. Perbedaan ini tidak ada pada tumor payudara ER-positif primer yang tidak menunjukkan GPER (123, 124). Peran ekspresi GPER global telah dievaluasi dalam model murine MMTV-PyMT dari tumorigenesis mammae spontan. Dibandingkan dengan tikus tipe liar, tikus GPER KO menghasilkan tumor yang lebih kecil dengan metastasis yang berkurang, yang menunjukkan bahwa, in vivo, GPER memiliki fungsi protumorigenik (129). Apakah temuan ini disebabkan oleh ekspresi pada sel tumor atau sel stroma (misalnya, sel imun atau fibroblas) masih belum diketahui.
Sebagai agonis GPER, efek (4-hidroksi)tamoksifen pada kanker payudara (sel) telah diteliti secara luas dan kompleks. Sel-sel MCF7 yang resisten tamoxifen berproliferasi sebagai respons terhadap tamoxifen melalui jalur yang bergantung pada GPER (127, 130), yang diblokir oleh GPER knockdown atau pengobatan G15 (81, 127). Tamoxifen menimbulkan translokasi sitoplasma dari faktor transkripsi proapoptosis Foxo3, yang pada gilirannya dapat berkontribusi pada mekanisme resistensi (32, 90). Tamoxifen juga menginduksi migrasi sel kanker payudara (131) dan meningkatkan ekspresi aromatase dalam sel yang resisten terhadap tamoxifen (132) melalui GPER. In vivo, xenografts MCF7 yang tahan tamoksifen kembali sensitif terhadap tamoksifen setelah pengobatan dengan G15 (127). G15 membuat sel kanker payudara peka terhadap doxorubicin dengan menghambat transisi epithelial-mesenchymal (133). Akhirnya, G-1 (serta tamoxifen dan fulvestrant) meningkatkan pembunuhan yang dimediasi sel pembunuh alami dari sel kanker payudara ER-negatif dan ER-positif, menunjukkan kemungkinan peran lain untuk GPER dalam regulasi kekebalan (134).
In vivo, efek agonis dan antagonis GPER diperumit oleh ekspresi luas GPER di luar sel tumor, termasuk sel imun dan stroma terkait tumor (seperti fibroblas, adiposit, dan sel vaskular). Efek anti-inflamasi dari GPER dan G-1 kemungkinan mempengaruhi inisiasi kanker dan kemajuan awal, sebagaimana dibuktikan oleh tumorigenesis hati yang didorong oleh peradangan yang dipercepat pada tikus yang kekurangan GPER (135). Ekspresi GPER pada fibroblas terkait kanker payudara juga menunjukkan peran dalam perkembangan kanker (136-138), di mana ia mempromosikan migrasi dan invasi sel kanker (139-141). Adiposit dalam jaringan kaya lemak seperti payudara dan obesitas (142) juga berkontribusi pada karsinogenesis beberapa kanker (143). Adiposit mengekspresikan aromatase, menghasilkan peningkatan kadar estrogen lokal serta banyak adipokin dan umumnya sitokin dan hormon proinflamasi yang dapat memicu tumorigenesis. Karena G-1 mengurangi obesitas dan disfungsi metabolisme (144), peradangan (113, 145), dan kardiotoksisitas akibat kemoterapi (146), G-1 dapat mengurangi insiden atau meningkatkan hasil pada kanker payudara dan kanker lainnya melalui beragam mekanisme.
GPER juga memainkan peran penting dalam banyak jenis kanker lainnya. G-1 mengurangi tumorigenesis hati, sebagian dengan menghambat peradangan dan fibrosis (135). Sebaliknya, pada kanker paru bukan sel kecil, beban tumor meningkat dengan pengobatan E2 atau G-1 dan menurun dengan pengobatan G15 (147, 148). Dalam sel melanoma, G-1 (serta tamoxifen) menghambat proliferasi in vitro (149), dan ketika dikombinasikan dengan terapi antibodi anti-PD-1, G-1 priming menyebabkan berkurangnya tumor pertumbuhan, secara substansial meningkatkan kelangsungan hidup tikus pembawa melanoma (118). Kombinasi G-1 dengan terapi penghambatan pos pemeriksaan imun juga menunjukkan kemanjuran pada model kanker pankreas (121). Terapi gabungan ini menyebabkan memori kekebalan, melindungi terhadap tantangan ulang tumor, menunjukkan efek luas pada tumor dan sel kekebalan (118). Studi ini menghasilkan persetujuan IND untuk G-1 pada kanker dan inisiasi selanjutnya dari uji klinis Fase I pertama G-1 pada tahun 2019 (https://clinicaltrials.gov/ct2/ show/NCT04130516).
Sistem kardiovaskular
Estrogen memainkan peran penting dalam pengaturan fungsi kardiovaskular, dan reseptornya, oleh karena itu, merupakan target potensial untuk intervensi terapeutik pada beberapa penyakit kardiovaskular, termasuk infark miokard (penyakit jantung koroner), aterosklerosis, hipertensi arterial dan pulmonal, dan gagal jantung. Peran estrogen dicontohkan oleh insiden hipertensi dan penyakit arteri koroner yang lebih rendah pada wanita premenopause dibandingkan dengan pria dengan usia yang sama dan peningkatan substansial pada kedua penyakit tersebut setelah menopause (150, 151). Peran GPER dalam pengaturan fungsi dan penyakit kardiovaskular telah ditunjukkan secara luas menggunakan G-1 dan mencakup pengaturan tekanan darah, angiogenesis, fungsi miokard, dan peradangan (152).
G-1, seperti E2, menginduksi vasorelaksasi sebagian besar melalui produksi oksida nitrat dalam banyak pembuluh (dari hewan pengerat, babi, dan manusia) dan secara akut menurunkan tekanan darah pada tikus, efek yang tidak ada pada tikus GPER KO (31, 71, 153–155). Pada hipertensi yang bergantung pada garam dengan disfungsi diastolik dini (gagal jantung dengan fraksi ejeksi yang diawetkan), menggunakan tikus mRen2.Lewis, pengobatan G-1 kronis meningkatkan relaksasi miokard pada wanita yang utuh dan diovariektomi ovarium serta mengurangi hipertrofi dan dinding miosit jantung ketebalan, dengan tidak adanya perubahan tekanan darah yang nyata (156, 157). Efek terapeutik serupa dari G-1 terjadi pada tikus tua (158) dan tikus hipertensi yang diinduksi AngII (159).
Pengobatan G-1 (selama 2 minggu pada usia 14 bulan) juga membalikkan hipertensi pada tikus betina dengan pertumbuhan terbatas (yaitu, berat lahir rendah) yang terjadi pada usia lanjut (160). Selain efek agonis GPER melalui G-1, G36 mencegah hipertensi yang diinduksi AngII pada tikus melalui mekanisme unik yang dihasilkan dari penurunan regulasi Nox1 dengan kurangnya produksi spesies oksigen reaktif yang terlibat dalam vasokonstriksi yang diinduksi AngII dan dengan demikian hipertensi (161). Dalam model tikus kardiomiopati diabetik, tekanan arteri rata-rata, berat jantung, dan indeks risiko aterogenik dan kardiovaskular ditingkatkan dengan pengobatan E2 dan G-1, dengan efek bermanfaat dari E2 yang dihambat oleh G15 (162). Selain hipertensi arteri, G-1 efektif dalam mengobati hipertensi arteri pulmonal, membalikkan penyimpangan fungsional otot jantung dan otot rangka pada tikus betina (163) dan jantan (164) yang diovariektomi.
Aterosklerosis, yang dapat menyebabkan penyakit arteri koroner, diakibatkan oleh peningkatan kadar lipid dalam darah dan keadaan peradangan kronis. G-1 terlindungi dari perkembangan aterosklerosis melalui berbagai tindakan baik dalam model yang diinduksi diet (165) maupun model genetik (166). Pertama, G-1 menurunkan kadar kolesterol plasma (lihat di bawah) (144). Kedua, G-1 menginduksi diferensiasi dan menghambat proliferasi sel otot polos koroner (167). Ketiga, G-1 mengurangi peradangan pada model aterosklerosis yang diinduksi diet pada tikus (165). Konsisten dengan peran anti-inflamasi untuk GPER, tikus GPER KO menunjukkan peningkatan akumulasi sel-sel inflamasi serta aterosklerosis pada tikus utuh ovarium dan diovariektomi (165). Keempat, G-1, serta E2, menginduksi produksi oksida nitrat dalam sel endotel manusia (keduanya dihambat oleh G36) (165) dan peningkatan vasodilatasi (166). Disfungsi endotel dan berkurangnya produksi NO merupakan tanda aterosklerosis dan penyakit vaskular (151, 168).
Endokrinologi dan Metabolisme
Homeostasis metabolik diatur secara berbeda pada pria dan wanita (169, 170), dengan wanita premenopause menunjukkan insiden obesitas dan diabetes yang lebih rendah dibandingkan pria dengan usia yang sama. Efek perlindungan ini, diduga akibat estrogen, hilang setelah menopause (171, 172). Perbedaan jenis kelamin ini, serta efek kekurangan estrogen, juga terdapat pada tikus (173, 174). Terapi penggantian estrogen pada wanita pascamenopause, serta pada tikus yang diovariektomi, dapat mengurangi penambahan berat badan dan efek metabolik yang merugikan terkait (173-176).
Ekspresi GPER dikaitkan dengan berat badan, pengeluaran energi, dan homeostasis glukosa. Ini dibuktikan oleh fakta bahwa tikus GPER KO menunjukkan peningkatan berat badan dan adipositas (baik di depot visceral dan subkutan), dislipidemia, dan resistensi insulin dan intoleransi glukosa (153, 177-180). Bahwa GPER memodulasi metabolisme basal disimpulkan dari fakta bahwa tidak ada perubahan dalam asupan makanan sehari-hari atau aktivitas alat gerak yang diamati, tetapi pengeluaran energi menurun pada tikus GPER KO, konsisten dengan pengamatan penurunan ekspresi jaringan adiposa coklat dari gen termogenik. melepaskan protein 1 dan 3-reseptor adrenergik (177, 179). Menariknya, meskipun tidak ada perbedaan keseluruhan dalam asupan makanan, tikus betina GPER KO menunjukkan sensitivitas yang lebih rendah terhadap penghambatan makan jangka pendek leptin dan cholecystokinin (179). Konsisten dengan efek ini, pengobatan G-1 pada tikus yang diovariektomi menyebabkan penurunan asupan makanan sementara yang akut (181).
Menggunakan model obesitas melalui kekurangan estrogen (yaitu, ovariektomi) atau diet tinggi lemak (HFD), pengobatan G-1 kronis setelah penambahan berat badan menyebabkan penurunan berat badan dan jaringan adiposa, peningkatan kadar lipid yang bersirkulasi, dan peningkatan pengeluaran energi tanpa perubahan konsumsi makanan atau penggerak (144). Demikian pula, tidak ada perubahan massa tanpa lemak atau kepadatan tulang/kandungan mineral yang diamati. Pada jaringan adiposa putih dan coklat, serta otot rangka, pengobatan G-1 meningkatkan ekspresi gen yang terlibat dalam biogenesis mitokondria dan oksidasi asam lemak sambil mengurangi ekspresi banyak gen yang terlibat dalam peradangan, hipoksia, dan angiogenesis ( 144). Yang penting, seperti yang diamati sebelumnya (165), pengobatan G-1 pada mencit yang diovariektomi tidak menyebabkan imbibisi uterus (144), seperti yang terjadi pada suplementasi estrogen (182).
Tikus GPER KO juga menunjukkan glukosa plasma yang lebih tinggi dan gangguan sensitivitas insulin dan toleransi glukosa serta sekresi insulin yang distimulasi glukosa dan estrogen yang rusak (177-179). Dalam model diabetes tipe 1 yang diinduksi streptozotocin, tikus GPER KO betina menunjukkan penurunan insulin pankreas dan kandungan sel pankreas serta glukosa darah yang lebih tinggi (183). Selain mempromosikan kelangsungan hidup pulau (183), GPER memediasi sekresi insulin di pulau terisolasi sebagai respons terhadap E2 dan G-1, keduanya dikurangi dengan penghambatan GPER dengan G15 atau di pulau dari tikus GPER KO (184). Terakhir, mencit tipe liar yang diovariektomi tetapi bukan GPER KO merespons pengobatan estrogen akut dan kronis dengan homeostasis glukosa yang lebih baik, yang selanjutnya mengungkap peran GPER dalam fungsi estrogen in vivo (178, 179).
Model yang dijelaskan di atas juga menyebabkan disfungsi metabolik, termasuk resistensi insulin dan intoleransi glukosa. Pengobatan dengan G-1 juga menyebabkan peningkatan homeostasis glukosa, seperti yang diungkapkan oleh tes toleransi glukosa dan insulin dan penurunan glukosa puasa dan konsentrasi insulin (144). Menggunakan ovariektomi, streptozotocin, dan HFD untuk membuat model tikus diabetes tipe 2 pascamenopause yang parah, satu penelitian menemukan bahwa pengobatan estrogen dan G-1 meningkatkan glukosa darah puasa dan HOMA-IR (penilaian model homeostatis untuk resistensi insulin), dengan efek bermanfaat estrogen dibalik oleh G15 (162). Bahwa GPER juga berfungsi untuk meningkatkan sekresi insulin pada manusia telah dibuktikan di pulau pankreas yang diisolasi dari pasien diabetes tipe 2 di mana sekresi insulin yang dirangsang oleh glukosa meningkat, sedangkan sekresi glukagon dan somatostatin menurun, setelah stimulasi G-1 (185, 186) .
Tindakan Ligan Selektif-GPER di Sistem Lain
GPER diekspresikan dan memainkan banyak peran di kulit. Peran GPER dalam melanogenesis yang diinduksi estrogen menunjukkan modulator GPER dapat menemukan aplikasi pada kloasma dan gangguan pigmentasi kulit lainnya (187, 188). Pada infeksi kulit dan jaringan lunak akibat Staphylococcus aureus, G-1 menurunkan nekrosis dermo, kemungkinan melalui penurunan akumulasi neutrofil secara keseluruhan, dan peningkatan pembersihan bakteri tanpa adanya efek bakterisidal langsung (189). Perbedaan jenis kelamin yang diamati dan peran estrogen dalam penyembuhan luka (190, 191), bersama dengan penurunan penyembuhan pada tikus GPER KO (R. Ko, O. Davidson, K. Ahmed, R. Clark, J. Brandenburg, et al., hasil yang tidak dipublikasikan), menyarankan peluang tambahan untuk terapi agonis GPER dalam kondisi kulit dan penyembuhan luka.
Mengenai sistem hepatobilier, estrogen memiliki banyak fungsi di hati dan kandung empedu, melindungi fungsi hati dan mengurangi steatohepatitis, sekaligus meningkatkan pembentukan batu empedu. Estrogen dan genistein, sebagian melalui GPER, melindungi hepatosit dari disfungsi mitokondria dan akumulasi trigliserida (192). DHEA, melalui konversi menjadi estrogen, yang kemudian bekerja melalui GPER, mengurangi steatohepatitis nonalkohol murine (47). Pembentukan batu empedu yang dipicu oleh estrogen melibatkan GPER dan ER , dengan jalur kristalisasi kolesterol yang berbeda untuk dua reseptor yang dijelaskan (193). Selanjutnya, pada tikus GPER KO, pembentukan batu empedu tidak ada, sedangkan itu meningkat dengan pengobatan tikus tipe liar dengan estrogen dan G-1 (193, 194). Sebaliknya, pembentukan batu empedu berkurang oleh antagonis GPER selektif seperti analog G36, CIMBA, menunjukkan bahwa penargetan GPER dengan antagonis dapat mewakili peluang terapeutik untuk kondisi ini (110).
Dalam saluran pencernaan, G-1 mengurangi fungsi motorik (yaitu, kontraktilitas otot dan karena itu motilitas), nyeri visceral (195, 196), dan cedera reperfusi setelah iskemia/reperfusi usus melalui penurunan cedera sel kripta kolon (197). G-1 juga mengurangi mortalitas dan kerusakan jaringan pada model penyakit Crohn (198), dan aktivasi GPER juga melemahkan peradangan usus pada model kolitis akut, menghasilkan peningkatan fungsi penghalang mukosa usus (199, 200). Ekspresi usus GPER tampaknya meningkat pada penyakit Crohn (198), kolitis ulserativa (201), dan sindrom iritasi usus (202).
GPER mengatur berbagai aspek fungsi ginjal, termasuk arteri ginjal dan tonus vaskular arteri interlobular (203, 204). Estrogen dan G-1, melalui aktivasi GPER, menstimulasi aktivitas H plus - ATPase dalam sel interkalasi tubulus ginjal (205) dan mengatur ekskresi Na plus in vivo (206). Icariin, agonis GPER, melindungi podosit ginjal dari apoptosis (207), dan pada nefropati hipertensif, G-1 mengurangi proteinuria, tanpa disertai perubahan tekanan darah (208, 209). G-1 juga mengurangi cedera sel ginjal akibat pengobatan metotreksat (210). Menariknya, tikus GPER KO menunjukkan fibrosis ginjal dan penyakit ginjal terkait usia yang sangat berkurang, kemungkinan melalui regulasi Nox1, seperti yang diamati pada jantung dan pembuluh darah, menunjukkan peran terapeutik untuk antagonis GPER pada penyakit ginjal kronis (161, 211).
Banyak efek menguntungkan dari estrogen pada jaringan dan penyakit nonreproduksi tampaknya melibatkan efek anti-inflamasi yang setidaknya sebagian dimediasi melalui GPER, yang secara luas diekspresikan dalam sel imun (145). Konsisten dengan ini, tikus GPER KO menunjukkan peningkatan peradangan pada banyak model (135, 165, 177, 179, 212), sedangkan pemberian G-1 mengurangi peradangan pada beberapa model murine, termasuk alergi paru-paru dengan hiperresponsif saluran napas (213), obesitas kronis dan diabetes (144), penyakit radang usus (198, 214), dan penyakit saraf kronis (212, 215-218). Di antara aksinya, G-1 mempromosikan produksi sitokin anti-inflamasi IL-10 dalam sel Th17 (219, 220) dan mengurangi produksi sitokin yang diinduksi lipopolisakarida dalam makrofag (217). Aktivitas GPER juga cukup untuk melindungi perkembangan janin dan kelangsungan hidup neonatus pada saat infeksi ibu dan radang plasenta, menunjukkan jalan terapeutik melalui G-1 (221).
GPER memainkan peran ekstensif dalam sistem saraf pusat dan perifer, seperti yang ditunjukkan oleh rangkaian aksi pelindung G-1 pada penyakit neurologis/neurodegeneratif akut dan kronis (218). Dalam model multiple sclerosis (ensefalomielitis autoimun eksperimental), G-1 keduanya mengurangi keparahan dan menunda timbulnya gejala melalui pengurangan reaktivitas imun (212, 217). Dalam model penyakit Alzheimer dan Parkinson dan setelah cedera otak traumatis, G-1 meningkatkan beberapa ukuran fungsi neurologis sebagian dengan mengurangi peradangan saraf (222–225). Dalam model cedera otak traumatis dan sumsum tulang belakang, G-1 memberikan perlindungan (223, 226, 227). Dalam model stroke, G-1 mengurangi ukuran infark, permeabilitas penghalang darah-otak, dan imunosupresi yang diinduksi oleh stroke (228–232) melalui peningkatan pensinyalan kelangsungan hidup saraf (228, 233) dan peningkatan fungsi mikrovaskular serebral (231), memulihkan autophagy dalam astrosit (234) atau penghambatan peradangan mikroglial yang dimediasi TL4-(229). Aktivasi GPER dengan G-1 juga menunjukkan efek antidepresan dan ansiolitik (81, 235), didukung oleh penelitian pada tikus GPER KO (236). Kognisi, pembelajaran, memori, dan efek perilaku lainnya (misalnya, lordosis) juga terkait dengan GPER melalui tindakan G-1 (222, 224, 237–241).

KESIMPULAN DAN ARAH KE DEPAN
Sejak ulasan terakhir kami tentang farmakologi GPER pada tahun 2015 (7), kemajuan signifikan telah dibuat dalam memahami fungsi GPER dan aplikasi potensial dari ligan yang ditargetkan GPER (baik agonis maupun antagonis). Senyawa alami dan sintetis baru telah diidentifikasi sebagai agonis dan antagonis GPER, menunjukkan peran GPER dalam efek menguntungkan fitoestrogen serta efek berbahaya dari pengganggu endokrin. Identifikasi berkelanjutan dari tindakan dan aplikasi GPER baru, sering ditunjukkan melalui penggunaan ligan yang ditargetkan GPER, di hampir setiap sistem tubuh, menandakan peluang untuk pengembangan terapeutik dari ligan yang ditargetkan tersebut dan perlunya menilai efek GPER dari obat saat ini dan yang sedang berkembang. . Dengan kemajuan uji klinis G-1 ke Fase I/II pada tahun 2020 untuk kanker stadium lanjut (https://clinicaltrials.gov/ct2/show/NCT04130516), dan peluang menarik dalam gangguan metabolisme dan kardiovaskular, ginjal, dan penyakit hepatobilier, belum lagi penyakit kekebalan, neurologis, gastrointestinal, dan infeksi, senyawa yang ditargetkan GPER dapat digunakan secara luas dalam farmakope.
PERNYATAAN PENGUNGKAPAN
Penulis adalah penemu paten AS terkait senyawa selektif GPER (7.875.721 dan 8.487.100) dan aplikasinya (10.251.870; 10.471.047; 10.561.648; 10.682.341; dan 10.980.785), yang telah dilisensikan kepada Sandia Biotech, GPER G{{22} } Pengembangan Grup, dan Terapi Linnaeus. Penulis berhak atas royalti sebagaimana diatur oleh kebijakan universitas untuk penemu tetapi tidak memiliki kepentingan ekuitas di perusahaan lisensi mana pun.
UCAPAN TERIMA KASIH
Kami mengucapkan terima kasih kepada semua pihak yang telah menyumbangkan ilmunya dalam bidang ini dan mohon maaf kepada pihak-pihak yang karyanya tidak dapat dikutip karena keterbatasan panjang. Para penulis didukung oleh hibah National Institutes of Health R01 CA127731, CA163890, dan CA194496; Klinik Dialisis Inc.; Pusat Keunggulan Penelitian Biomedis dalam Autophagy, Peradangan, dan Metabolisme (P20 GM121176); dan Pusat Kanker Komprehensif Universitas New Mexico (P30 CA118100).
DAFTAR PUSTAKA
1. Santoro N, Epperson CN, Mathews SB. 2015.Gejala menopause dan penatalaksanaannya.Endocrinol. Metab. Klinik. Am Utara. 44:497–515
2. Mehta J, Kling JM, Manson JE. 2021. Risiko, manfaat, dan modalitas pengobatan terapi hormon menopause: konsep terkini. Depan. Endokrinol. 12:564781
3. Am Utara. Menopause Soc. Hormon Ada. Pernyataan Posisi Advis. Panel. 2018. Pernyataan posisi terapi hormon 2017 dari The North American Menopause Society. Menopause 25:1362–87
4. McDonnell DP, Wardell SE, Chang CY, Norris JD. 2021. Terapi endokrin generasi selanjutnya untuk kanker payudara. J.Clin. Oncol. 39:1383–88
5. Haines CN, Wardell SE, McDonnell DP. 2021. Terapi bertarget reseptor estrogen saat ini dan yang sedang berkembang untuk pengobatan kanker payudara. Esai Biokimia. 65:985–1001
6. Dahlman-Wright K, Cavailles V, Fuqua SA, Jordan VC, Katzenellenbogen JA, dkk. 2006. Persatuan Farmakologi Internasional. LXIV. Reseptor estrogen. Pharmacol. Wahyu 58:773–81
7. Prossnitz ER, Arterburn JB. 2015. Persatuan Internasional Farmakologi Dasar dan Klinis. XCVII. Reseptor estrogen berpasangan protein G dan modulator farmakologisnya. Pharmacol. Wahyu 67:505–40
8. Fruzzetti F, Fidecicchi T, Montt Guevara MM, Simoncini T. 2021. Estetrol: pilihan baru untuk kontrasepsi. J.Clin. Kedokteran 10:5625
9. Diamanti-Kandarakis E, Bourguignon JP, Giudice LC, Hauser R, Prins GS, dkk. 2009. Bahan kimia pengganggu endokrin: pernyataan ilmiah Masyarakat Endokrin. Endokr. Wahyu 30:293–342
10. Lorand T, Vigh E, Garai J. 2010. Tindakan hormonal senyawa estrogenik non-steroid yang berasal dari tumbuhan dan antropogenik: fitoestrogen dan xenoestrogen. Kur. Kedokteran kimia 17:3542–74
11. Frye CA, Bo E, Calamandrei G, Calza L, Dessi-Fulgheri F, dkk. 2012. Pengganggu endokrin: tinjauan beberapa sumber, efek, dan mekanisme aksi pada perilaku dan sistem neuroendokrin. J.Neuroendokrinol. 24:144–59
12. Song S, Guo Y, Yang Y, Fu D. 2022. Kemajuan dalam patogenesis dan strategi terapeutik untuk osteoporosis. Pharmacol. Ada. 237:108168
13. Yang F, Li N, Gaman MA, Wang N. 2021. Raloxifene memiliki efek menguntungkan pada profil lipid pada wanita yang menjelaskan efek menguntungkannya pada risiko kardiovaskular: meta-analisis uji coba terkontrol secara acak. Pharmacol. Res. 166:105512
14. Nabieva N, Fasching PA. 2021. Perawatan endokrin untuk pasien kanker payudara ditinjau kembali—sejarah, standar perawatan, dan kemungkinan perbaikan. Kanker 13:5643
15. Wehling M. 1994. Tindakan nongenomik hormon steroid. Tren Endokrinol. Metab. 5:347–53
For more information:1950477648nn@gmail.com


